明亮光线为何能减轻抓挠?从视网膜追到臂旁核的止痒路线
小鼠研究追踪视网膜感光节细胞经外侧膝状体通向外侧臂旁核的通路,揭示明亮光照压低痒觉相关神经元活动与厌恶反应的环路基础。
强光治疗(bright light treatment)作为一种安全、非侵入性的物理干预手段,已被证实能够广泛调节情绪、空间记忆、睡眠及疼痛感知等多种脑功能,并在临床初步观察中展现出缓解慢性肝病相关瘙痒的潜力。然而,外界环境中的强光信号究竟如何跨越视觉系统,精准抑制中枢痒觉信息处理并减少搔抓行为,其背后的跨核团神经环路机制一直悬而未决。2024年6月,暨南大学附属第一医院、粤港澳中枢神经再生研究院任超然、陶倩、黄鲁团队在《Cell Reports》发表研究论文,首次在小鼠中完整解析了一条由视网膜M4型自感光视网膜神经节细胞(mRGCs)起始、经腹侧外侧膝状体与膝状体间小叶(vLGN/IGL)GABA能神经元中继、直接抑制外侧臂旁核(LPBN)CaMKIIα阳性兴奋性神经元的“视网膜—vLGN/IGL—LPBN”三级抗痒神经环路。研究证实,3,000 lux以上的强光照射能够通过激活这一非成像视觉通路,显著压制致痒剂诱发的LPBN神经元钙信号亢进,进而减轻组胺及非组胺依赖性急性搔抓行为并消除瘙痒伴随的厌恶情绪记忆。
强光(≥3,000 lux)通过激活视网膜ON型SMI-32阳性(M4型)神经节细胞,驱动腹侧外侧膝状体/膝状体间小叶(vLGN/IGL)GABA能神经元单突触抑制外侧臂旁核(LPBN)CaMKIIα阳性神经元,从而阻断致痒剂诱发的LPBN过度激活并缓解急性瘙痒与厌恶行为。
阅读目录 · 6个部分
视觉丘脑vLGN/IGL的GABA能神经元直接抑制外侧臂旁核兴奋性神经元
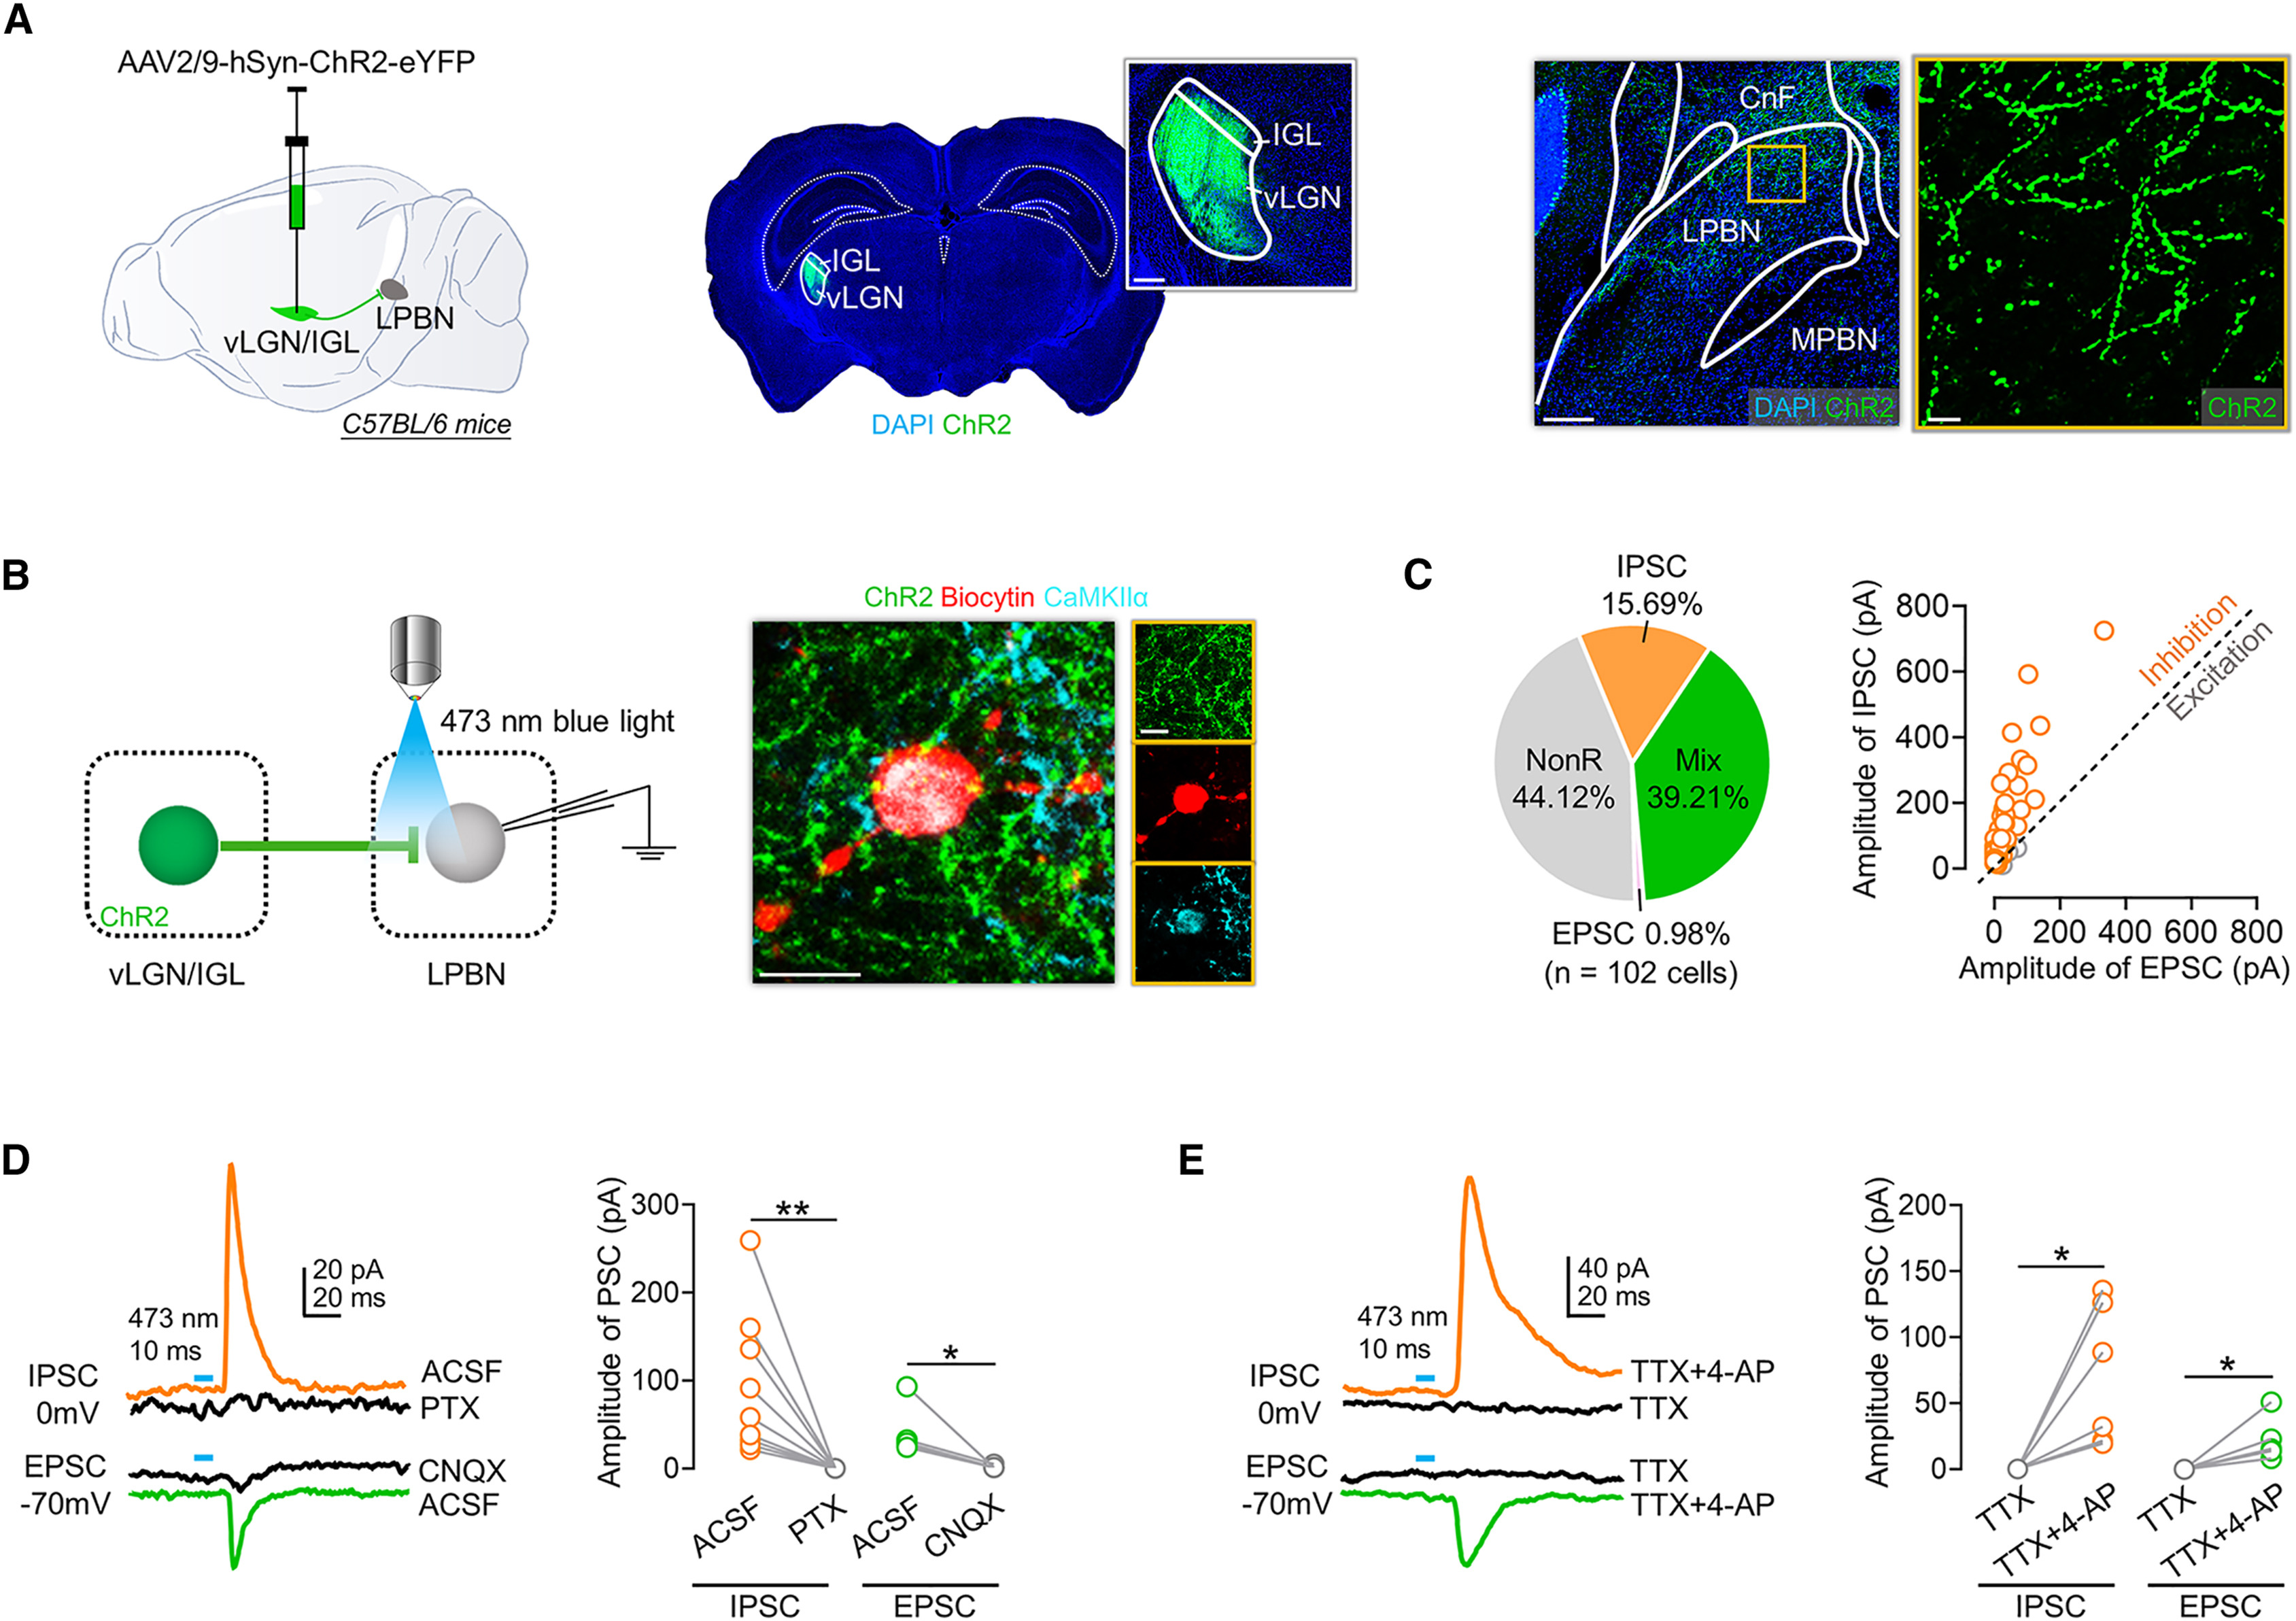
外侧臂旁核(LPBN)是接收脊髓上行痒觉信号并向全脑分发痒觉与厌恶信息的关键中枢枢纽。研究团队首先利用顺行与逆行跨突触病毒示踪技术,精细描绘了视觉丘脑腹侧外侧膝状体/膝状体间小叶(vLGN/IGL)向臂旁核投射的解剖学特征。在C57BL/6小鼠vLGN/IGL注射AAV2/9-hSyn-ChR2-eYFP后,其轴突末梢密集投射至LPBN,而在内侧臂旁核(MPBN)分布极少;通过倾斜角度避开楔形核(CnF)向LPBN注射逆行病毒rAAV2/2-Retro-Cre并在vLGN/IGL注射AAV2/9-DIO-eYFP发现,投射至LPBN的神经元主要分布于vLGN内侧部与IGL,其中高达97.38%为GABA免疫阳性抑制性神经元。反之,在vLGN/IGL注射顺行跨单突触病毒AAV2/1-Cre并在LPBN注射AAV2/9-DIO-mCherry证实,接收vLGN/IGL直接输入的LPBN神经元主要位于背侧LPBN(dLPBN),其中约96.05%表达兴奋性神经元标志物CaMKIIα,且进一步投射至中央内侧丘脑核(CM)、中央杏仁核(CeA)、中脑导水管周围灰质外侧/腹外侧区(l/vlPAG)及延髓头端腹内侧区(RVM)等痒觉调控脑区。
离体脑片全细胞膜片钳记录进一步验证了该通路的突触传递性质:蓝光(473 nm)光遗传学激活vLGN/IGL投射至LPBN的ChR2轴突末梢,在102个记录的LPBN神经元中,15.69%仅诱发出抑制性突触后电流(IPSCs),39.21%同时诱发出IPSCs和兴奋性突触后电流(EPSCs),且IPSC的绝对幅值显著高于EPSC(仅0.98%表现为纯EPSC)。药理学实验证实,光诱发IPSCs和EPSCs分别可被GABAA受体拮抗剂印防己毒素(PTX)和AMPA/海人藻酸受体拮抗剂CNQX完全阻断;同时,电压门控钠通道阻断剂河豚毒素(TTX)可消除这些突触后电流,而在加入钾通道阻断剂4-氨基吡啶(TTX + 4-AP)后电流得以恢复。这证明vLGN/IGL通过单突触直接连接向LPBN CaMKIIα阳性神经元传递以抑制作用为主导的神经输入。
来源: et al. · Cell Reports · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
激活vLGN/IGL–LPBN通路压制致痒剂诱发的LPBN钙爆发并缓解搔抓与厌恶
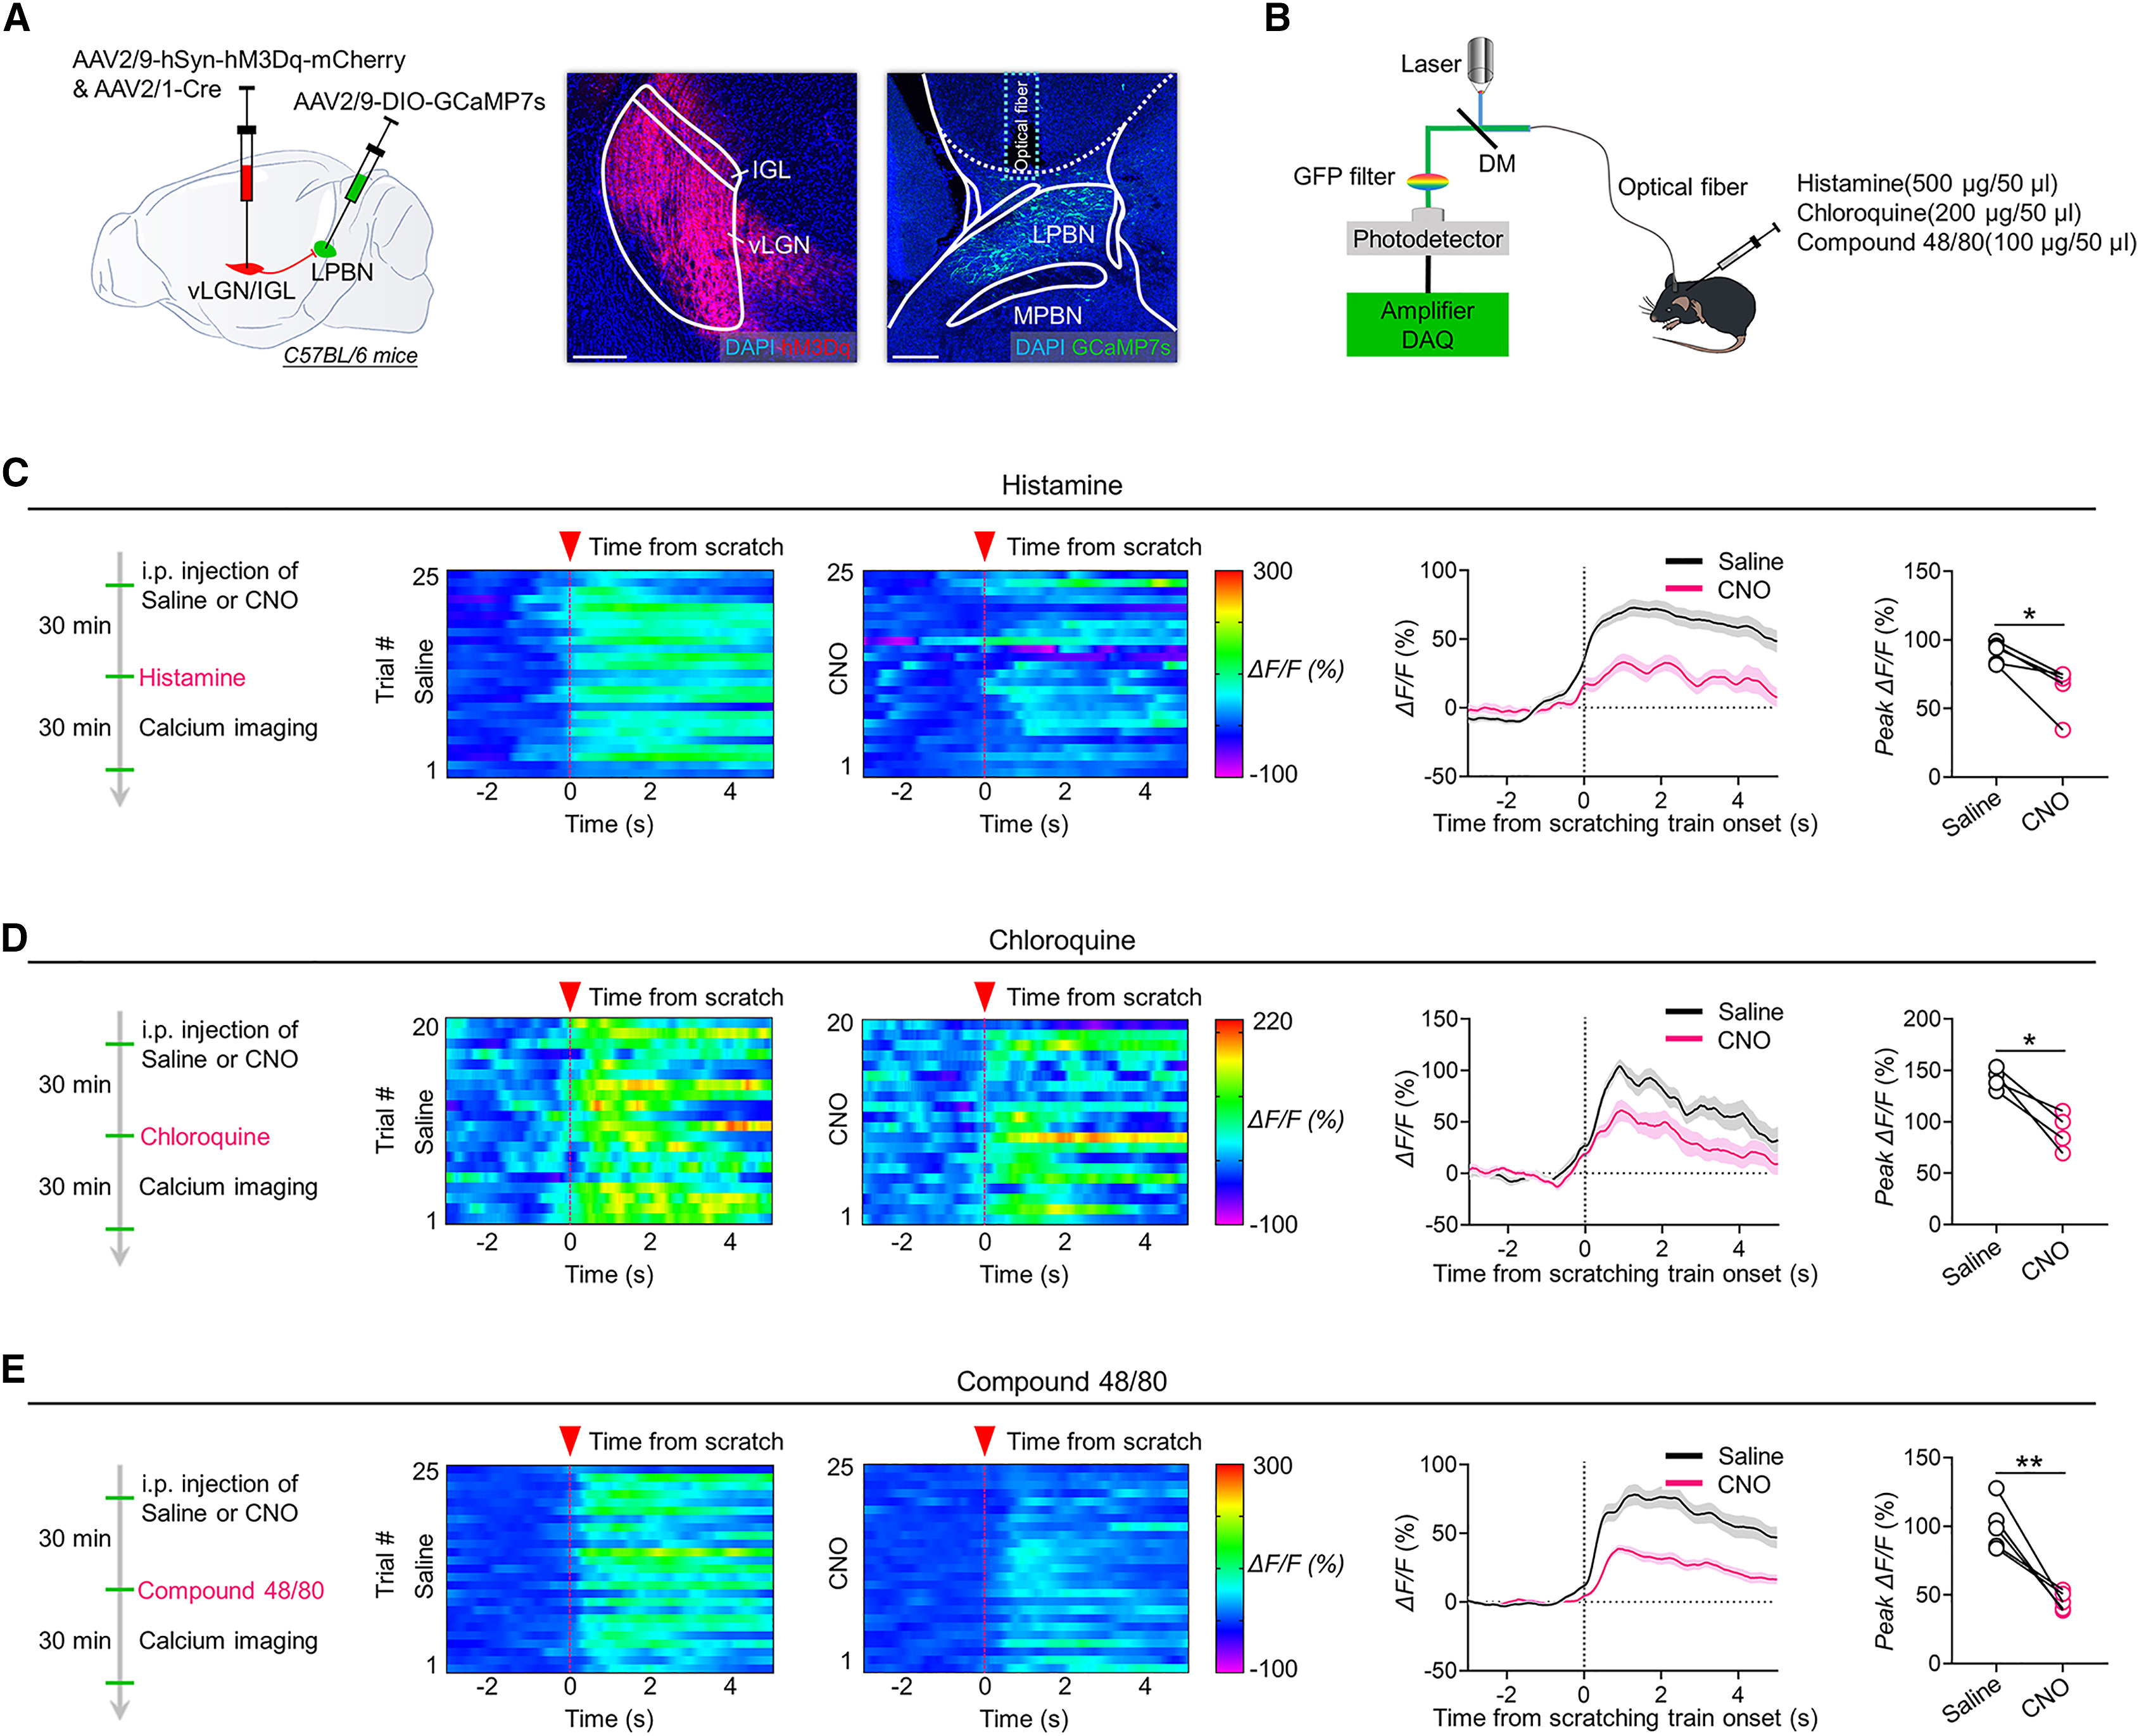
为了在自由活动动物中检验vLGN/IGL输入能否抑制致痒刺激对LPBN神经元的激活,研究团队在小鼠vLGN/IGL注射顺行跨突触AAV2/1-Cre与化学遗传学激活病毒AAV2/9-hSyn-hM3Dq-mCherry,同时在LPBN注射Cre依赖性钙指示剂AAV2/9-DIO-GCaMP7s,并利用光纤记录系统(470 nm激发光与410 nm等吸收参考光)监测接收vLGN/IGL直接输入的LPBN突触后神经元钙信号。结果显示,在颈背部皮内注射组胺(histamine)、氯喹(chloroquine)或化合物48/80(compound 48/80)三种经典致痒剂后,每当小鼠发生搔抓行为的起始时刻,LPBN突触后神经元的钙信号(ΔF/F)均出现显著跃升;而腹腔注射CNO(1 mg/kg)化学遗传学激活vLGN/IGL神经元后,这三种致痒剂诱发的LPBN神经元钙信号升高幅度均被大幅削弱。
行为学操控进一步确立了该通路的特异性止痒功能:双侧光遗传学激活vLGN/IGL投射至LPBN的轴突末梢,可显著减少组胺诱发的搔抓次数,且不影响旷场与高架十字迷宫中的焦虑样行为;作为对照,光遗传学激活vLGN/IGL投射至l/vlPAG的轴突末梢(该通路此前被证实介导强光镇痛)则完全不改变组胺诱发的搔抓行为,揭示了痛觉与痒觉调控在vLGN/IGL下游环路上的精细分流。此外,利用LPBN逆行Cre配合vLGN/IGL的DIO-hM3Dq及双侧LPBN套管微注CNO,特异性激活vLGN/IGL–LPBN通路不仅显著减少了组胺、氯喹和化合物48/80诱发的搔抓次数与总时长,还在组胺诱导的条件性位置厌恶(CPA)范式中显著降低了小鼠对组胺配对箱体的回避得分,说明激活该通路既能止痒,又能缓解瘙痒带来的负性情绪体验。
来源: et al. · Cell Reports · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
视网膜M4型自感光神经节细胞跨双突触支配LPBN并抑制痒觉行为
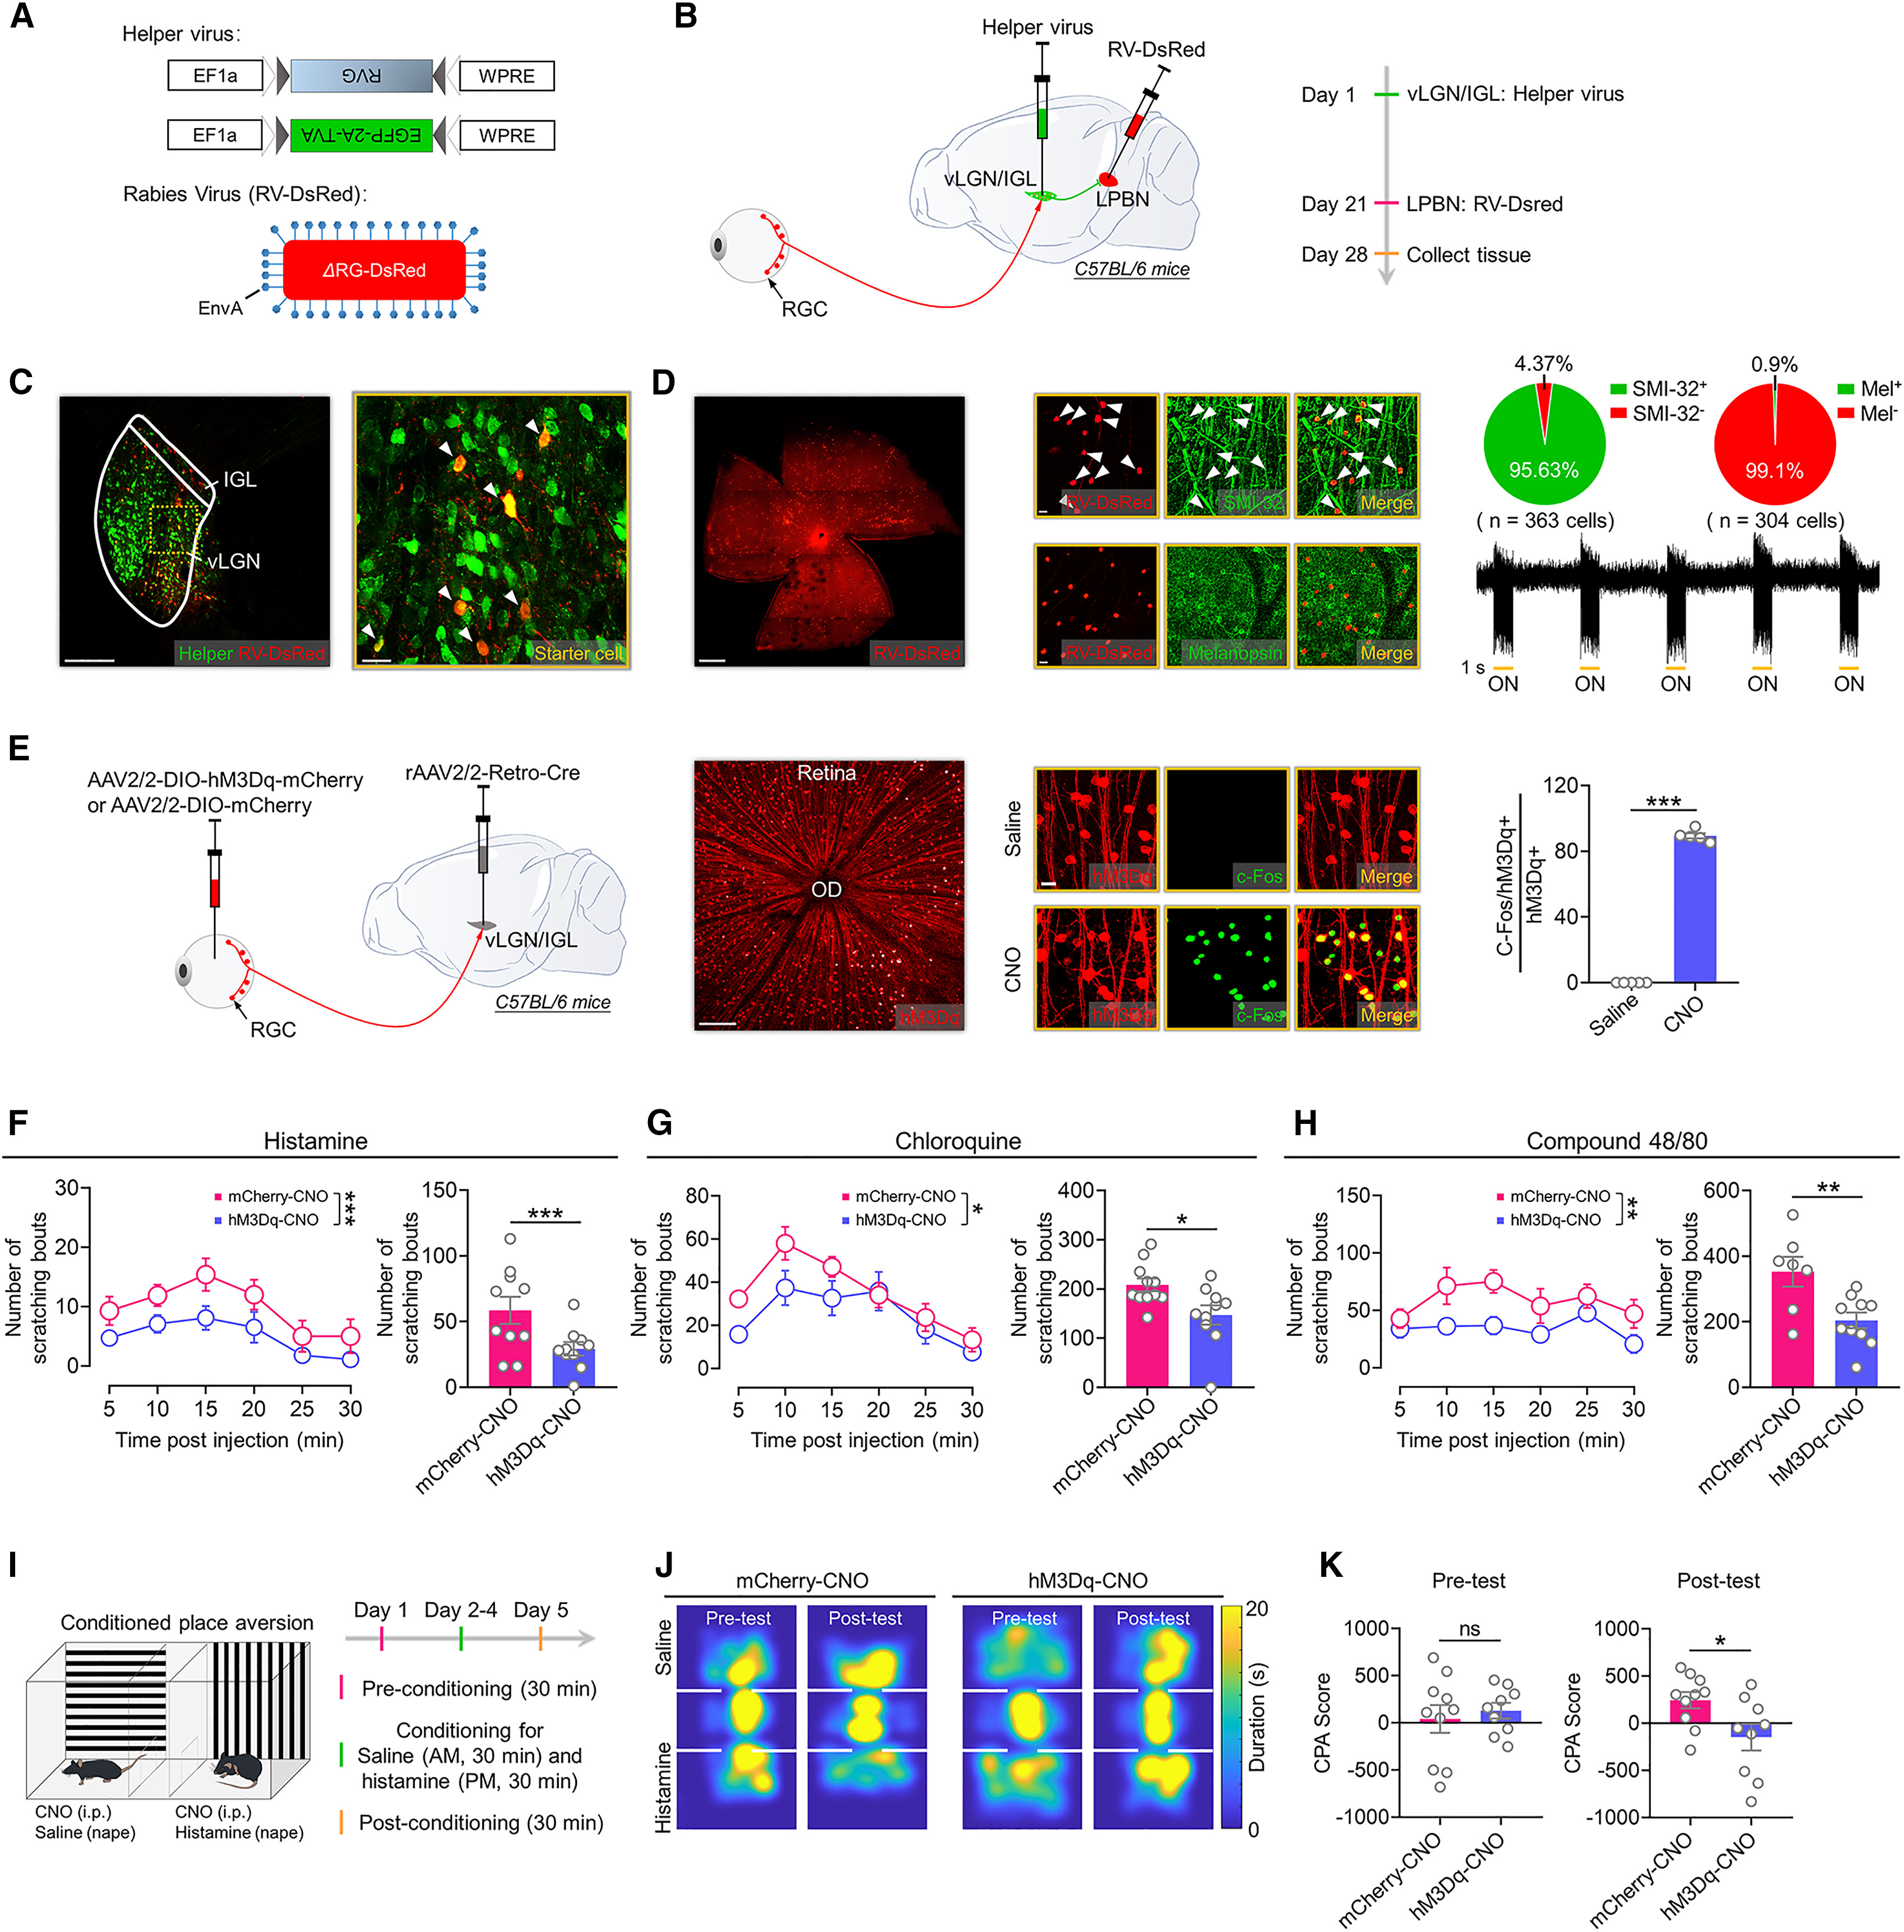
既然vLGN/IGL是接收视网膜直接投射的主要非成像视觉核团,那么投射至LPBN的vLGN/IGL神经元究竟接收哪一类视网膜神经节细胞(RGCs)的输入?研究团队采用改良的狂犬病病毒跨双突触逆行示踪策略:先在vLGN/IGL注射辅助病毒(表达狂犬病病毒糖蛋白RVG与TVA),3周后向LPBN注射包膜假型缺陷型狂犬病病毒SAD-ΔG-DsRed(EnvA)。双感染的vLGN/IGL起始细胞(starter cells)逆行跨突触在每片视网膜中标记出617 ± 28个RGCs。全视网膜铺片免疫荧光与电生理分析显示,约95.63%的标记RGCs表达大胞体α-RGC标志物SMI-32,且在离体视网膜细胞外记录中全部对1秒光斑刺激表现出持续去极化的给光反应(sustained ON-type light responses);在Opn4-Cre小鼠中开展同样的双突触示踪进一步证实,约81.3%的狂犬病病毒标记RGCs与表达Cre的视黑素(melanopsin)自感光神经节细胞(mRGCs)共标,符合M4型mRGCs的形态学与生理学特征。
由于RGCs在轴突末梢释放兴奋性神经递质谷氨酸,研究团队推断特异性激活这群投射至vLGN/IGL的RGCs应当能激活vLGN/IGL抑制性神经元并发挥止痒效应。通过在双侧vLGN/IGL注射rAAV2/2-Retro-Cre并向双侧玻璃体腔内注射AAV2/2-DIO-hM3Dq-mCherry,腹腔注射CNO(1 mg/kg)特异性激活投射至vLGN/IGL的RGCs,不仅显著减少了组胺、氯喹和化合物48/80诱发的急性搔抓次数与持续时间,还显著逆转了组胺诱导的条件性位置厌恶(CPA)。这直接确立了从视网膜感光节细胞到中枢抗痒环路的功能连通性。
来源: et al. · Cell Reports · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
3,000 lux强光照射抑制LPBN神经元兴奋并缓解多种急性瘙痒
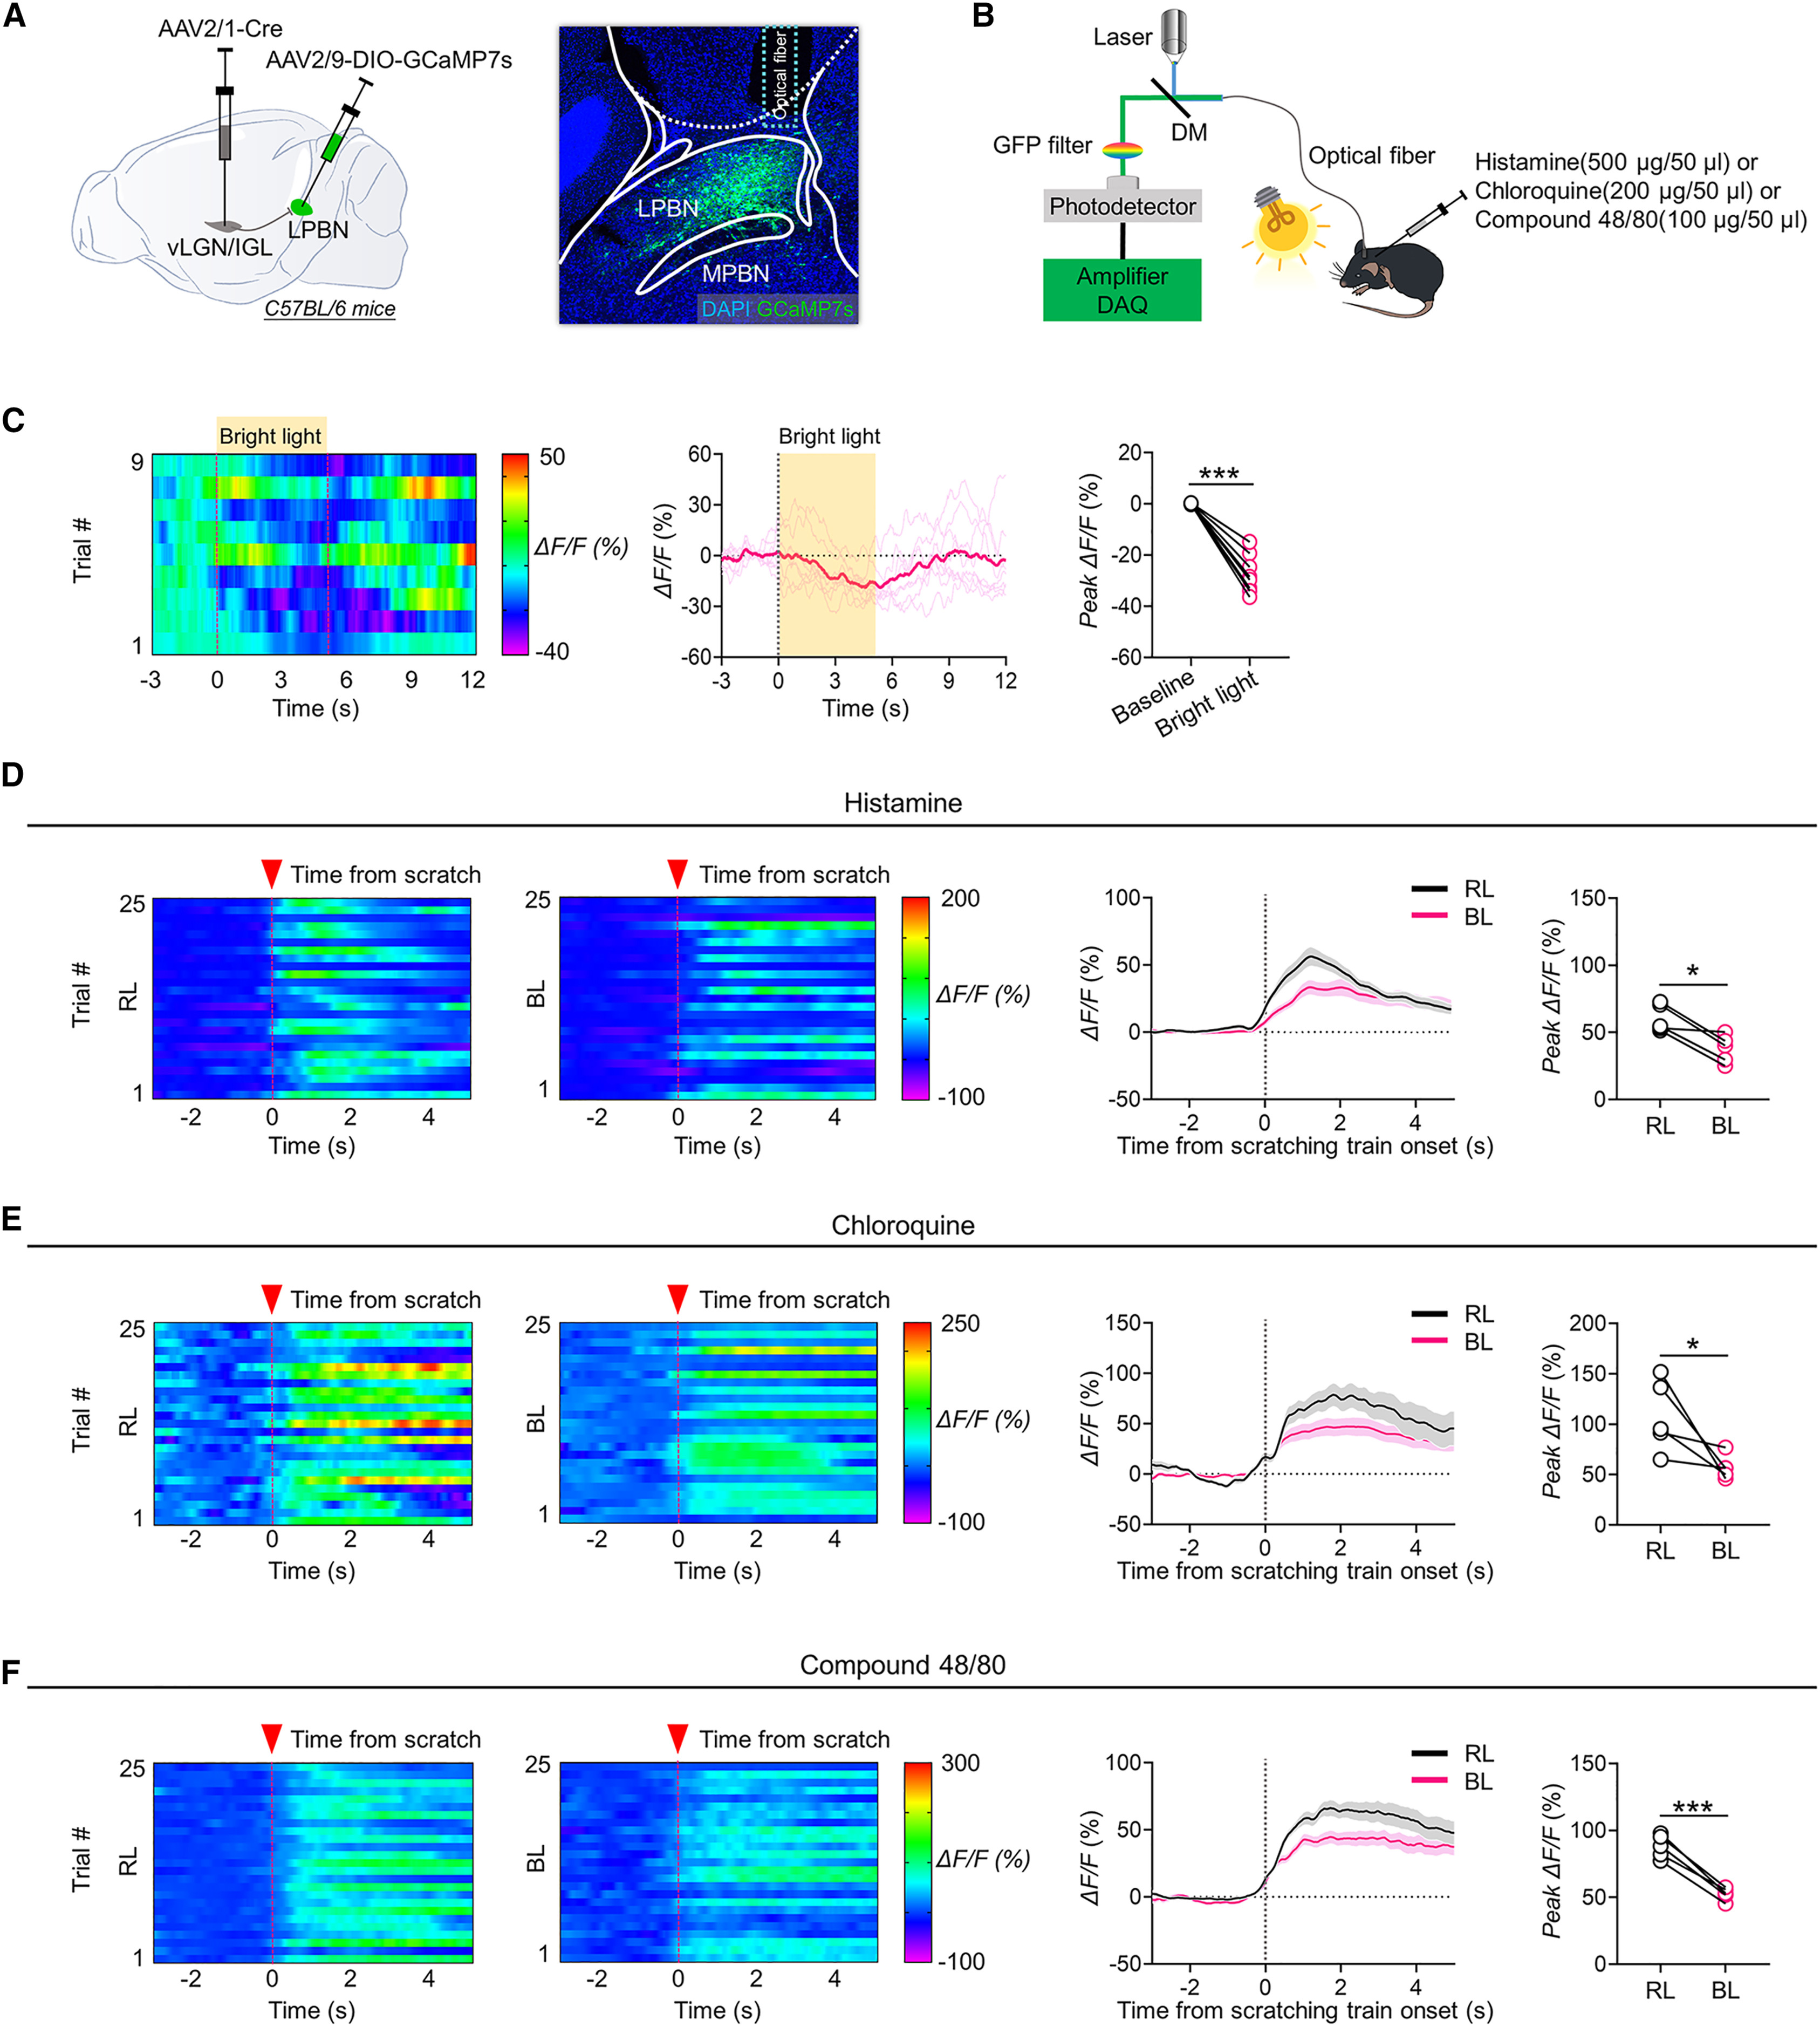
既然“视网膜—vLGN/IGL—LPBN”通路直接接收ON型感光RGCs输入,那么直接增强环境光照是否足以模拟病毒激活的止痒效果?在体光纤记录首先给出了肯定的神经活动证据:在表达GCaMP7s的vLGN/IGL突触后LPBN神经元中,将环境光照从普通室内照度(200 lux)切换为无紫外线的冷光源强光(3,000 lux),不仅直接降低了这些LPBN神经元的基线钙信号幅值,而且在同一批小鼠自身对照记录中,显著压低了组胺、氯喹和化合物48/80诱发的搔抓相关LPBN钙信号峰值。
为了确定强光止痒的光照强度阈值,研究团队系统比较了0、200、1,000、3,000和5,000 lux五种光强对组胺诱发搔抓行为的影响。结果显示,光照对搔抓行为具有显著的强度依赖性缓解作用,其中至少需要达到3,000 lux的光照强度才能产生具有统计学显著性的止痒效应(5,000 lux同样有效,而1,000 lux及以下无显著差异)。进一步测试表明,3,000 lux强光照射同样能显著减少氯喹和化合物48/80诱发的急性搔抓次数与持续时间,并显著降低组胺诱导的条件性位置厌恶(CPA)得分,且不改变旷场与高架十字迷宫中的焦虑水平。值得注意的是,在二硝基氟苯(DNFB)反复涂抹建立的4周慢性瘙痒模型中,单次3,000 lux强光照射未能显著减少自发搔抓行为,提示急性与慢性瘙痒在LPBN神经元亚群或环路可塑性上可能存在差异。
来源: et al. · Cell Reports · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
逐级阻断视网膜—vLGN/IGL—LPBN通路可消除强光治疗的止痒效应
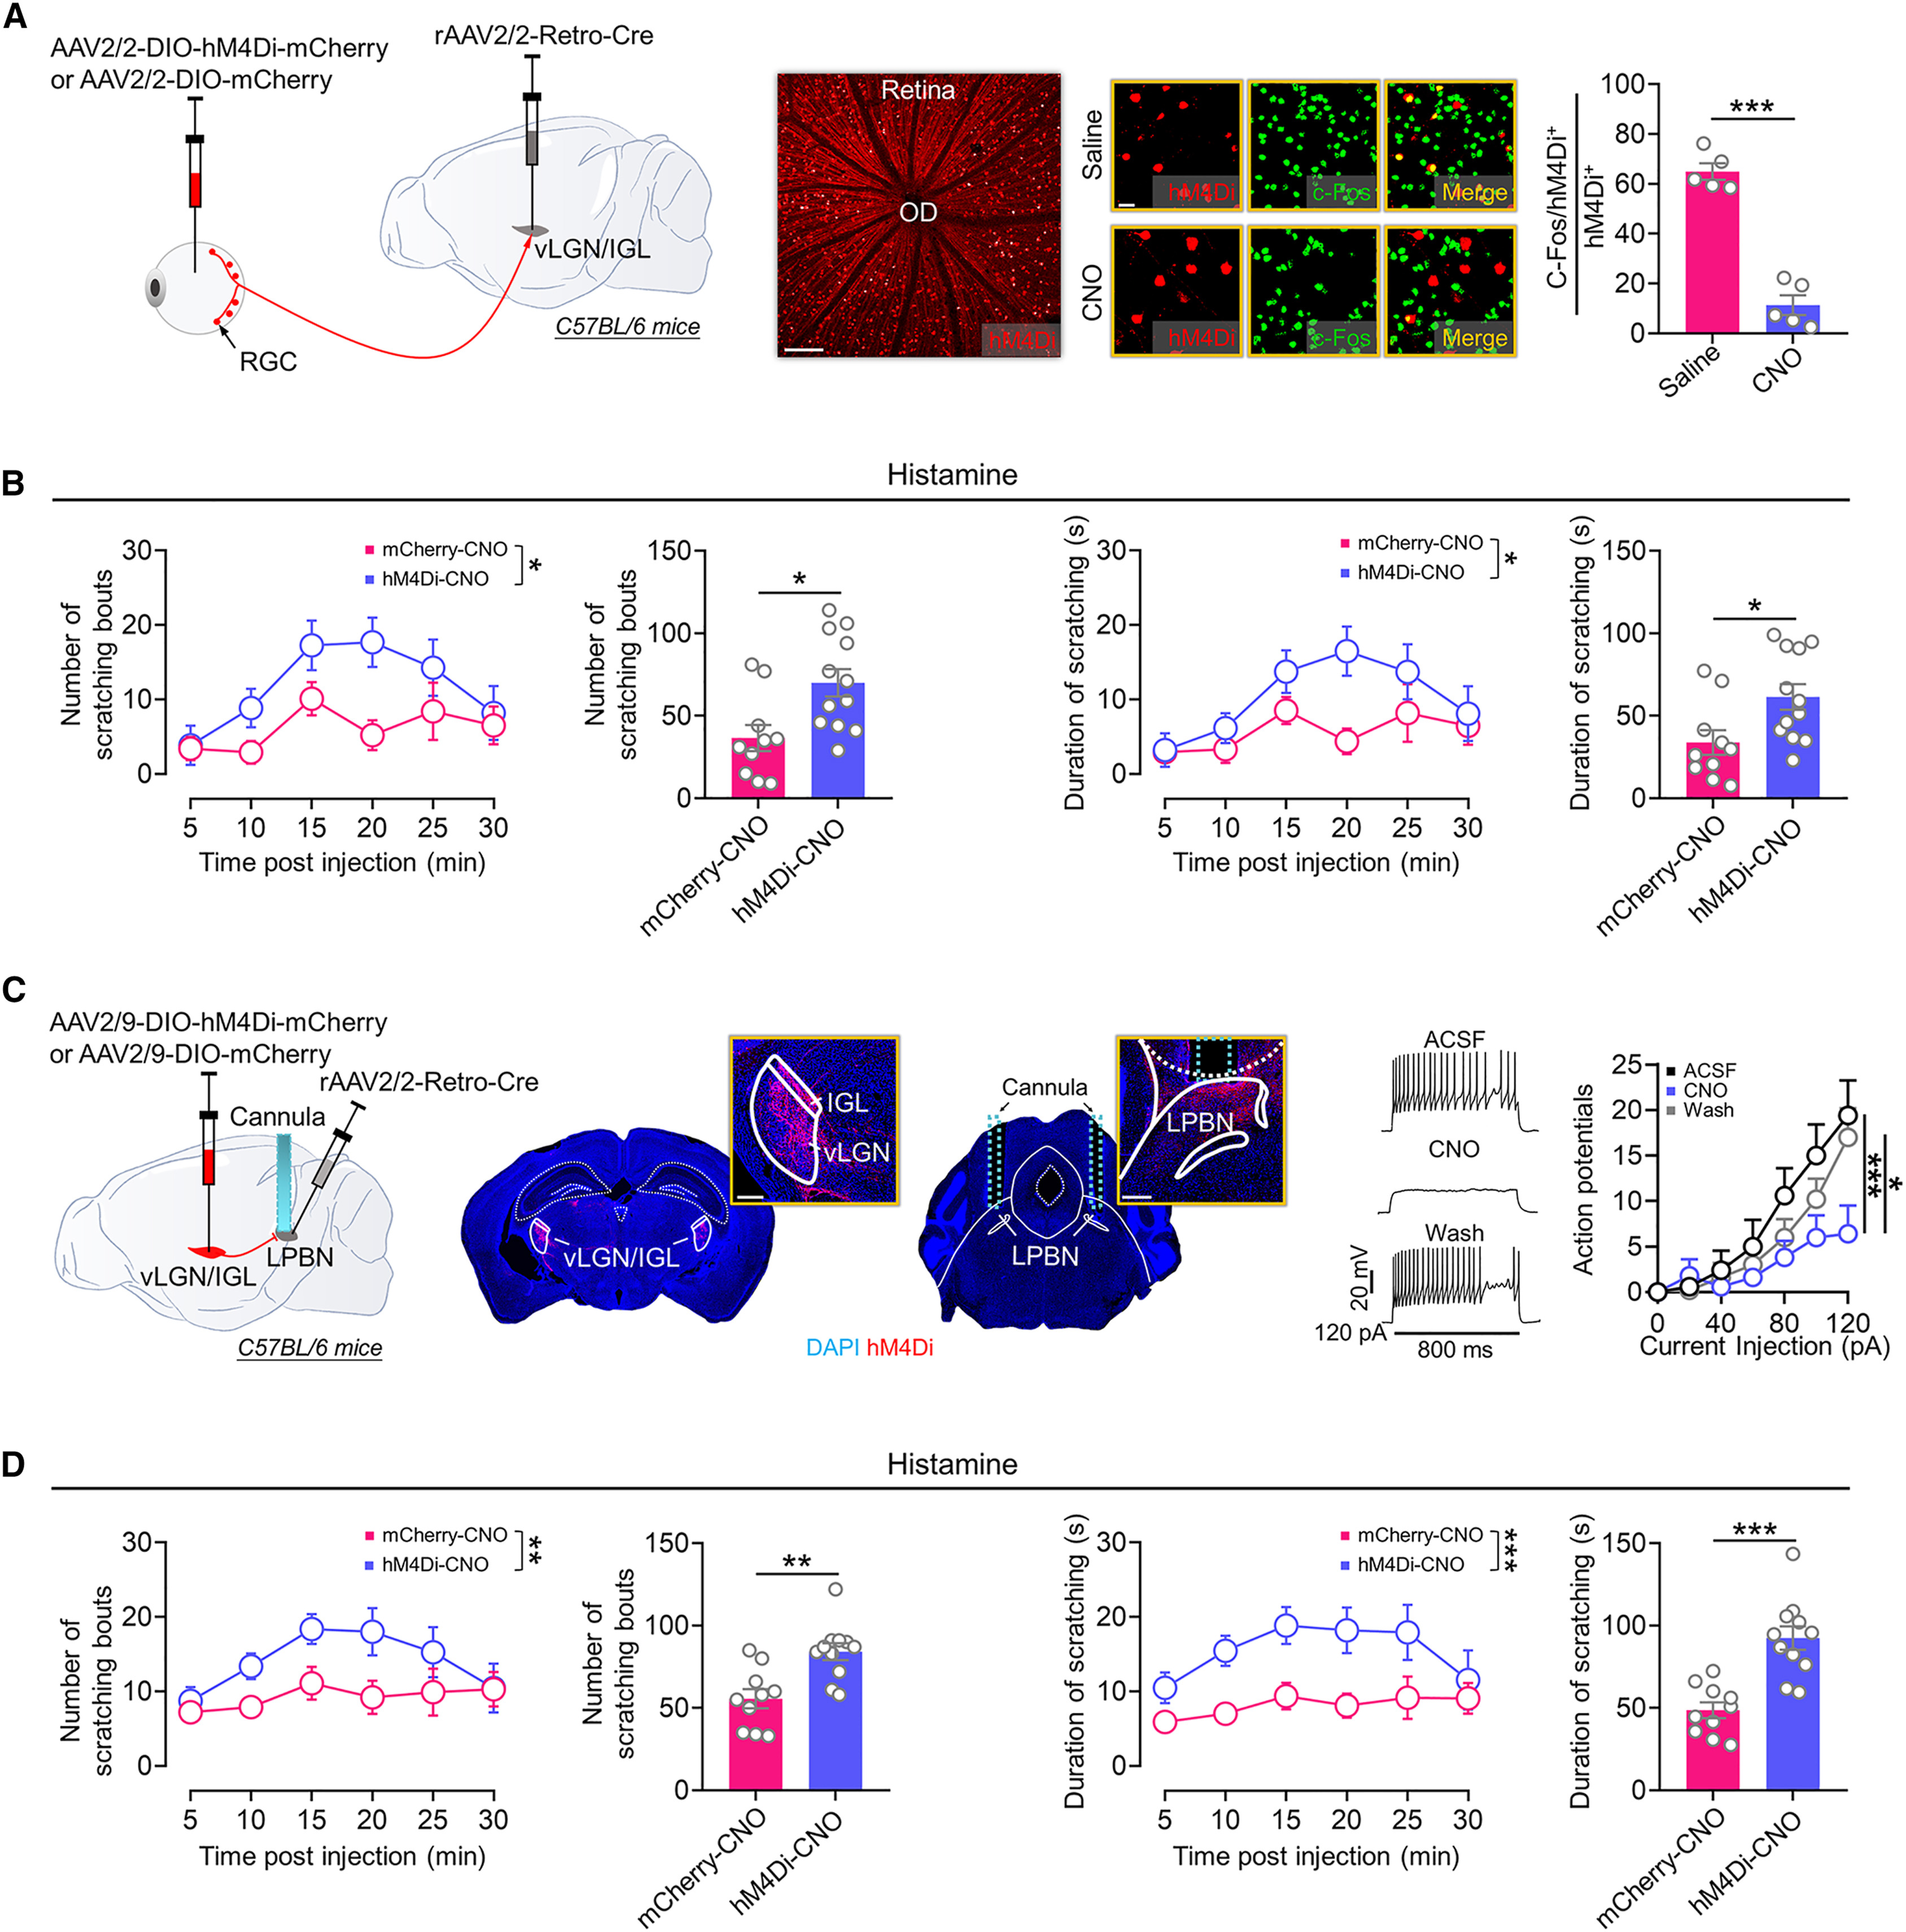
为了严格检验“视网膜—vLGN/IGL—LPBN”三级通路是否为强光止痒所必需,研究团队在3,000 lux强光干预的同时,对通路的三个关键节点进行了逐级功能阻断或逆转实验。首先,在双侧vLGN/IGL注射rAAV2/2-Retro-Cre并向眼内注射抑制性化学遗传学病毒AAV2/2-DIO-hM4Di-mCherry,腹腔注射CNO特异性抑制投射至vLGN/IGL的RGCs后,3,000 lux强光诱导的RGC c-Fos激活被显著压低,强光对组胺搔抓行为的缓解效应也随之被彻底消除(而在200 lux室内光下抑制这群RGCs则不影响基础搔抓水平)。
其次,在双侧LPBN注射rAAV2/2-Retro-Cre、双侧vLGN/IGL注射AAV2/9-DIO-hM4Di-mCherry,并通过LPBN预埋套管局部微注CNO以特异性抑制vLGN/IGL向LPBN的投射末梢,同样使3,000 lux强光丧失了对组胺搔抓行为的抑制作用。第三,若在vLGN/IGL注射顺行跨突触AAV2/1-Cre并在LPBN注射兴奋性AAV2/9-DIO-hM3Dq-mCherry,在强光照射期间人为激活LPBN突触后神经元以对抗上游抑制输入,强光的止痒效应亦被显著破坏。此外,补充实验显示激活vLGN/IGL–LPBN通路还能提高野生型小鼠的热痛阈值,并压制夹尾、足底电击和热刺激诱发的LPBN钙反应。三级节点的正反因果验证完整锁定了“视网膜—vLGN/IGL—LPBN”通路在介导强光止痒中的核心地位。
来源: et al. · Cell Reports · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
非成像视觉系统并行调控多维躯体感觉的环路设计法则
将本研究与团队此前关于强光镇痛、抗抑郁及改善睡眠的系列工作联系起来,可以清晰看到非成像视觉系统在调控躯体感觉与情绪时的模块化环路设计:视网膜M4型自感光神经节细胞(SMI-32阳性ON型RGCs)将环境高照度光信号汇入视觉丘脑vLGN/IGL这一关键抑制性枢纽后,通过不同的下游投射分支实现功能分流——vLGN/IGL投射至l/vlPAG的通路专门介导强光镇痛而不影响组胺瘙痒,而本研究鉴定的vLGN/IGL投射至LPBN的GABA能通路则直接压制LPBN兴奋性痒觉神经元,从而主导强光止痒并兼顾热痛调控。
由于视觉丘脑与臂旁核在包括人类在内的哺乳动物中高度保守,这一“视网膜—vLGN/IGL—LPBN”通路的阐明,不仅拓展了人们对光感知非成像生理功能的认识,也为临床开发基于特定光照强度与光谱参数的无创光疗方案、辅助缓解急性皮肤瘙痒及相关负性情绪提供了坚实的神经生物学依据。