经历如何放大逃跑?一段抑制连接被“松开”
雄性小鼠研究发现,先前威胁经历借助前额叶输入和内源性大麻素,减弱脑桥到下丘脑的抑制,让逃跑反应增强。
逃跑可以是先天反应,强度却会被经历改变。反复经历一种威胁气味后,小鼠面对后来的大鼠或二氧化碳挑战,逃跑更快,尝试也更多。2025 年 5 月 27 日发表于《Nature Communications》的研究发现,这种增强与下丘脑背侧乳头前核(PMd)的 CCK 细胞有关。核心变化落在来自脑桥 Gudden 腹侧被盖核(VTg)的抑制连接上。前额叶输入与内源性大麻素共同参与,把过去的威胁经历接入当下的防御动作。
学习后的逃跑增强伴随 VTg 抑制性末梢活动下降和局部内源性大麻素升高;减少 VTg PV 细胞的 CB1 受体信号,削弱这种额外增强。
阅读目录 · 7个部分
一种气味经历,影响后来的逃跑
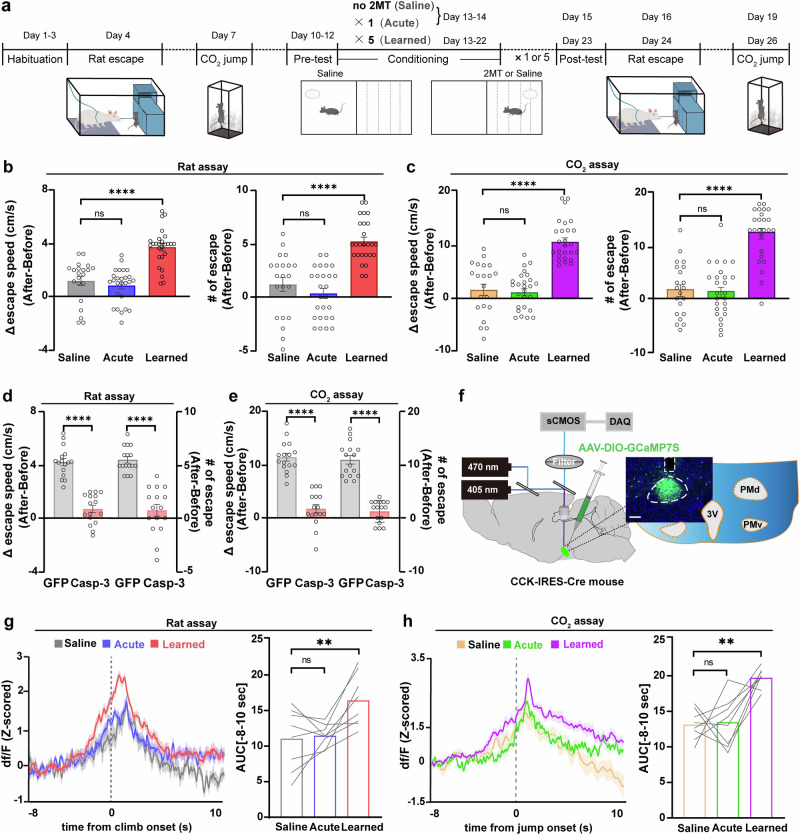
研究先让小鼠反复经历威胁气味。随后,它们减少在气味曾出现的空间停留,显示形成了可测量的位置回避。单次或较少次数的经历,没有产生同样明显的记忆与逃跑增强。
更有意思的是,变化跨到了另一种情境。面对大鼠时,小鼠更快爬离、逃跑次数增加;二氧化碳挑战中,跳跃速度和次数也增加。经历没有只是改变对原气味的反应,而是影响了后续不同威胁下的动作强度。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
PMd 接收多条与防御有关的输入
逃跑开始时,PMd CCK 细胞本就活跃;经历过反复威胁后,活动增加得更明显。清除这群细胞既削弱基础逃跑,也妨碍经历带来的额外增强,提示它们是这类防御动作的重要组成部分。
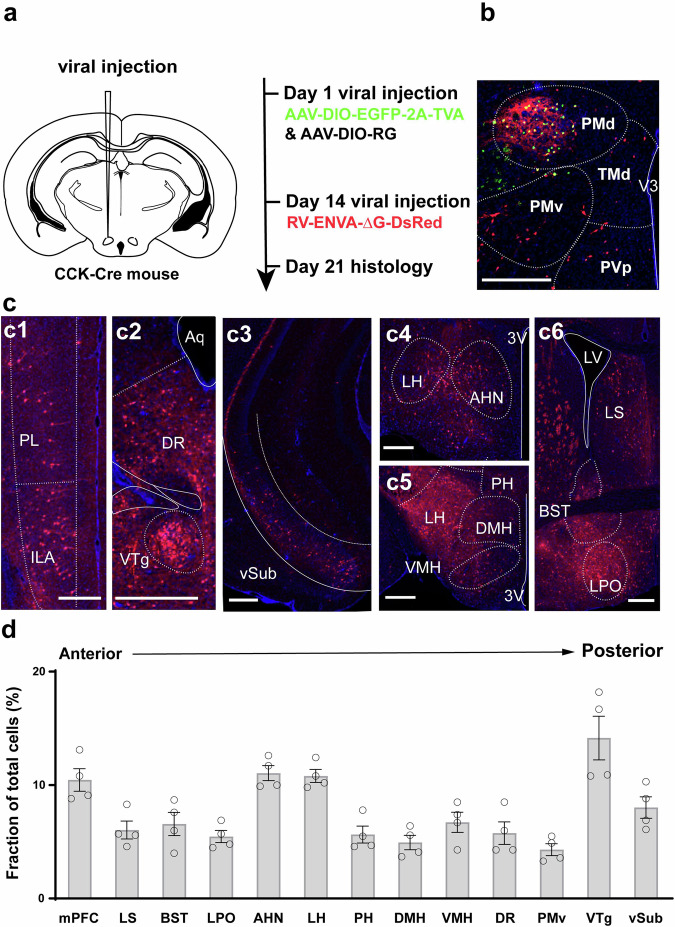
追踪上游连接发现,PMd 接收来自前额叶、腹侧下托及多个下丘脑区域的输入,VTg 则是一个尤为密集的来源。这个节点既接入与经历相关的信息,也受到脑桥输入的调节,为研究提供了两条可追踪的线路。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
VTg 的 PV 细胞直接压低 PMd
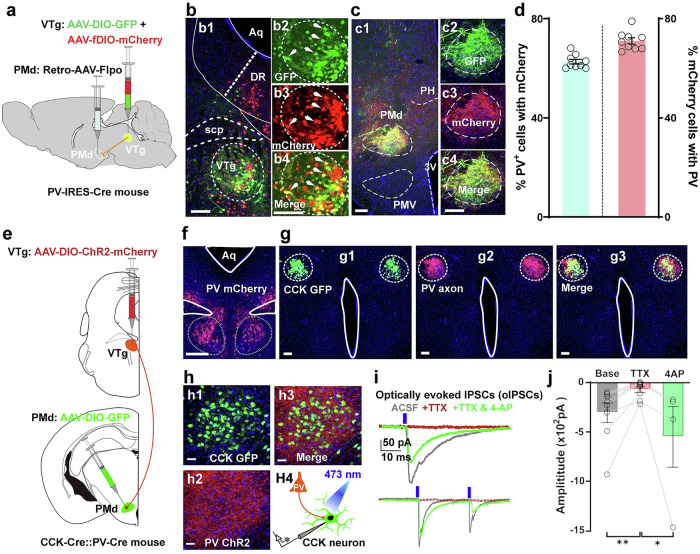
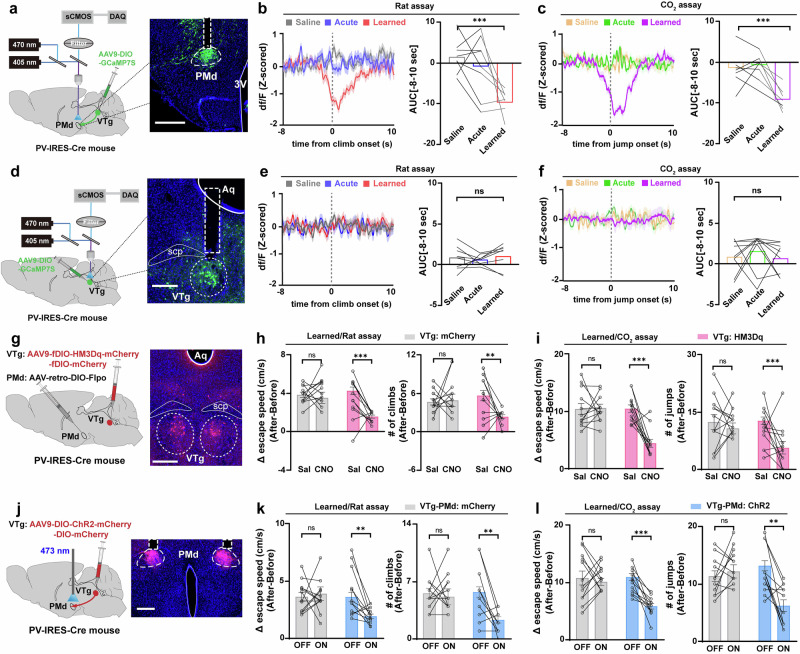
进一步观察发现,投向 PMd 的 VTg 细胞以 PV 类为主,它们的末梢密集包围 PMd CCK 细胞。脑片电流记录支持,这是一段直接的抑制性连接:增强 VTg 末梢,可在 PMd 细胞中产生抑制反应。
行为调节也与这个方向一致。增强这段连接,小鼠逃跑更慢、次数更少;压低连接,则逃跑增强。抑制性输入因此像一处控制动作强度的刹车。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
经历增强逃跑时,局部刹车减弱
在经历过反复威胁的小鼠中,逃跑开始时 VTg 在 PMd 的末梢钙信号明显下降。未经学习或只经历单次威胁的小鼠,没有同样模式。重新增强这段连接,可以削弱学习后的逃跑增强。
与此同时,VTg 胞体的钙信号没有对应下降,诱发放电数量也基本相近。变化更多指向轴突末梢附近的调节,而不是整群 VTg 细胞整体沉默。这一区别引出了研究的下一步:局部是否存在能压低末梢传递的信号?
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
内源性大麻素松开抑制
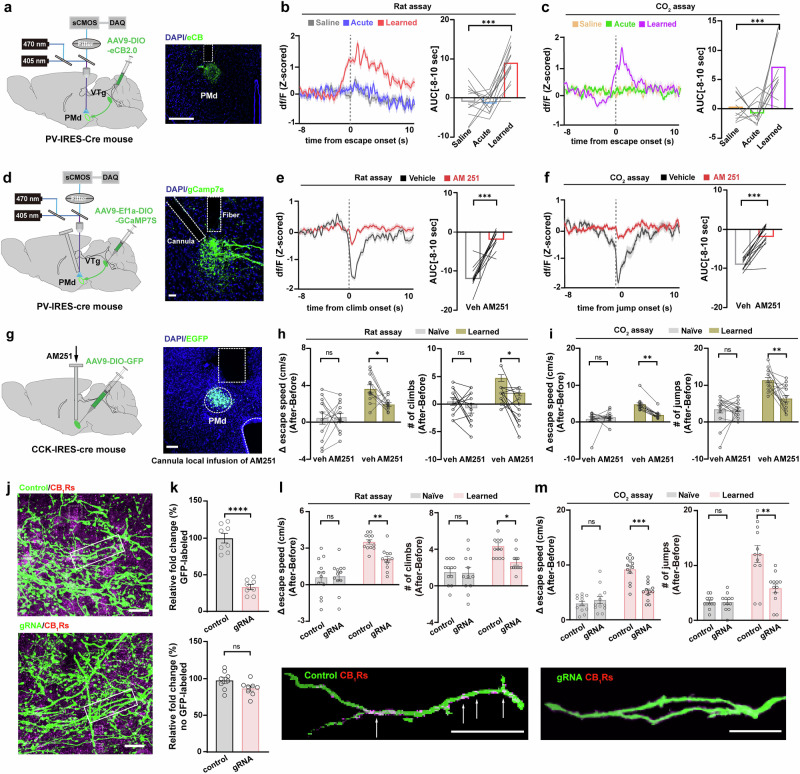
研究发现,学习后逃跑开始时,PMd 附近的内源性大麻素信号上升。这类脑内产生的脂质可以通过 CB1 受体减少突触前递质释放。作用在抑制性末梢时,减少传递的结果恰好是让下游细胞更容易活跃。这里的“去抑制”包含两步:局部脂质信号压低刹车,原先被刹车限制的输出就更容易启动。同一种突触调节,因连接本身的性质而带出不同方向。
阻断局部 CB1 信号,使末梢下降的变化减弱,也削弱额外逃跑。进一步减少 VTg PV 细胞中的 CB1 受体,同样降低学习带来的增强,而基础逃跑及原气味相关回避基本不变。脂质信号参与的是经历如何调节反应强度。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
来自经历的调节抵达局部突触
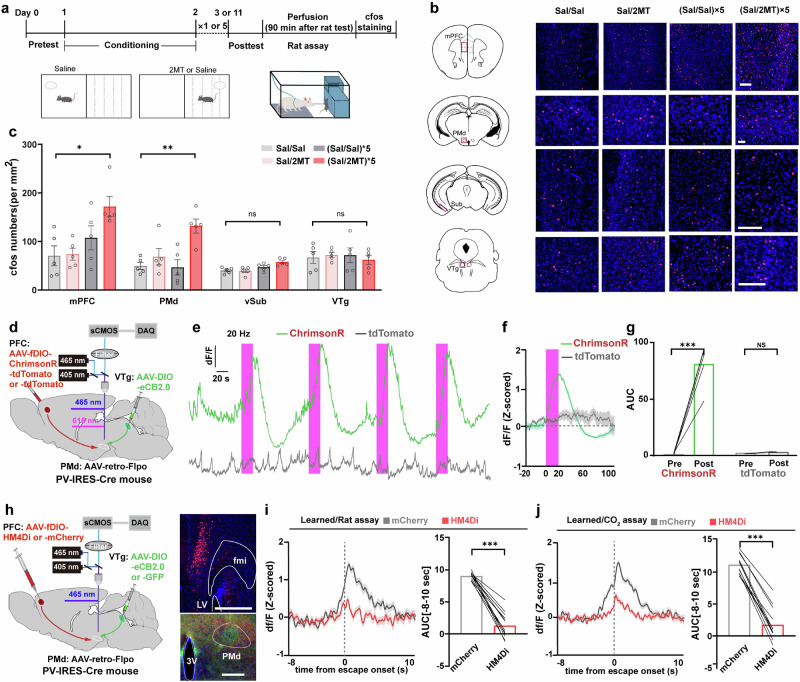
反复威胁经历后,前额叶和 PMd 的活动相关标记增强,腹侧下托与 VTg 没有出现同样变化。研究继续追踪前额叶通往 PMd 的输入,发现增强这段输入能提高局部内源性大麻素信号。
压低这段输入,则学习后逃跑时的脂质信号增加受到削弱。前额叶并不需要直接让 VTg 胞体沉默,而是可以借助另一段突触附近的信号,改变脑桥输入对下丘脑的抑制。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗
前额叶线路在两个阶段都参与
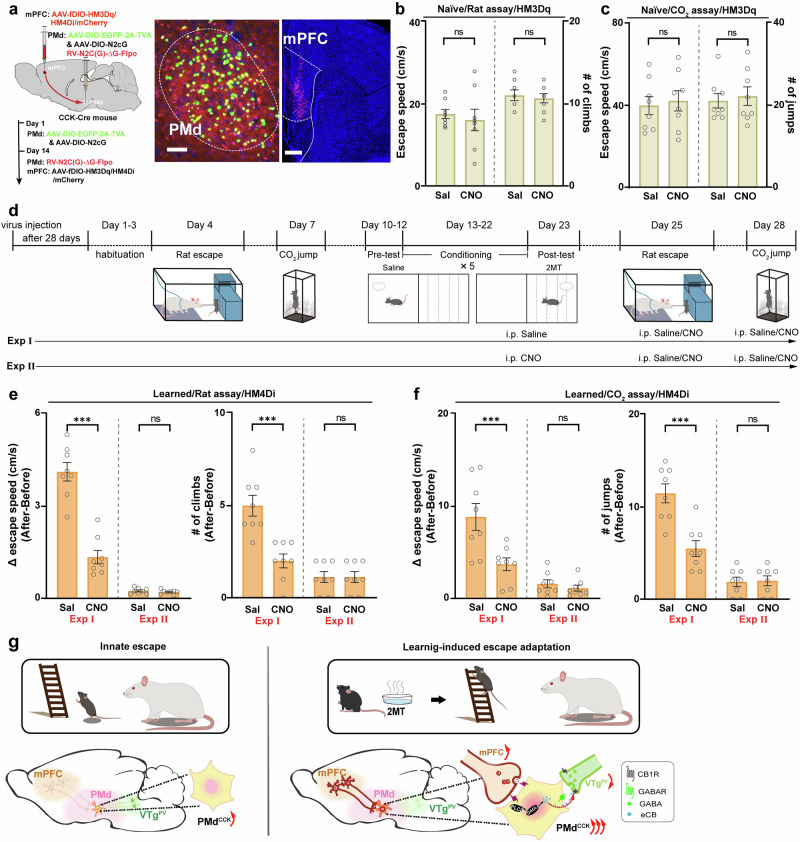
在威胁经历阶段抑制这段前额叶输入,后来的逃跑增强不再明显;已经形成经历后,在测试阶段抑制,也会削弱增强。它既参与学习过程,也参与随后把经历转化为更强动作。
但在未经相关学习的小鼠中,单独增强前额叶输入没有提高逃跑速度或次数。成年雄性小鼠的这些结果说明,先天逃跑可以被经历重新调节,前额叶、局部脂质反馈和抑制性连接共同决定这次反应会有多强。
来源:Chai R et al. · Nature communications · CC BY-NC-ND
查看原图与英文图注 ↗