温和电针为何能稳住心律?从运动皮层追向脑干的护心回路
小鼠研究围绕心梗后室性早搏模型,发现神门穴低强度电针通过调节初级运动皮层至未定带与延髓通路,下调交感神经张力。
心肌梗死(MI)后常伴发高频室性早搏(PVCs),这种室性心律失常不仅加重心肌缺血与心室重构,还显著增加心源性猝死风险。交感神经过度激活是驱动心梗后室性早搏的核心机制之一,而临床与实验研究提示针刺手少阴心经原穴“神门穴”(HT7)可改善心肌缺血与心律失常,但其如何通过中枢神经环路跨器官调控心脏自主神经张力仍不清楚。2025年12月18日,安徽中医药大学余情、蔡荣林团队与中国科学技术大学张智团队合作在《Cell Reports》发表题为“Electroacupuncture suppresses premature ventricular complexes occurring post-myocardial infarction through corticothalamic circuit”的研究论文(第一作者为张帆)。研究团队结合跨突触病毒示踪、在体多通道电生理、光纤钙信号记录、自由活动微型显微镜单细胞钙成像及光/化学遗传学操控,揭示0.5 mA低强度电针神门穴通过抑制初级运动皮层第5层谷氨酸能神经元(M1L5Glu)向未定带(ZI)的兴奋性输入,解除对腹侧未定带GABA能神经元(ZIvGABA)的微环路抑制,进而增强ZIvGABA对延髓头端腹外侧核(RVLM)交感前运动神经元的抑制作用,最终降低心脏交感张力并抑制心梗后室性早搏。
0.5 mA低强度(而非3 mA高强度)电针神门穴可抑制心梗诱发的M1L5谷氨酸能神经元过度激活,通过“M1L5Glu → 背侧未定带非GABA能神经元(ZIdnon-GABA)→ 腹侧未定带GABA能神经元(ZIvGABA)→ 延髓头端腹外侧核(RVLM)”环路下调心脏交感神经活性与去甲肾上腺素水平,从而减少室性早搏并改善心梗后存活率。
阅读目录 · 5个部分
0.5 mA低强度电针神门穴显著降低心梗小鼠交感张力并减少室性早搏
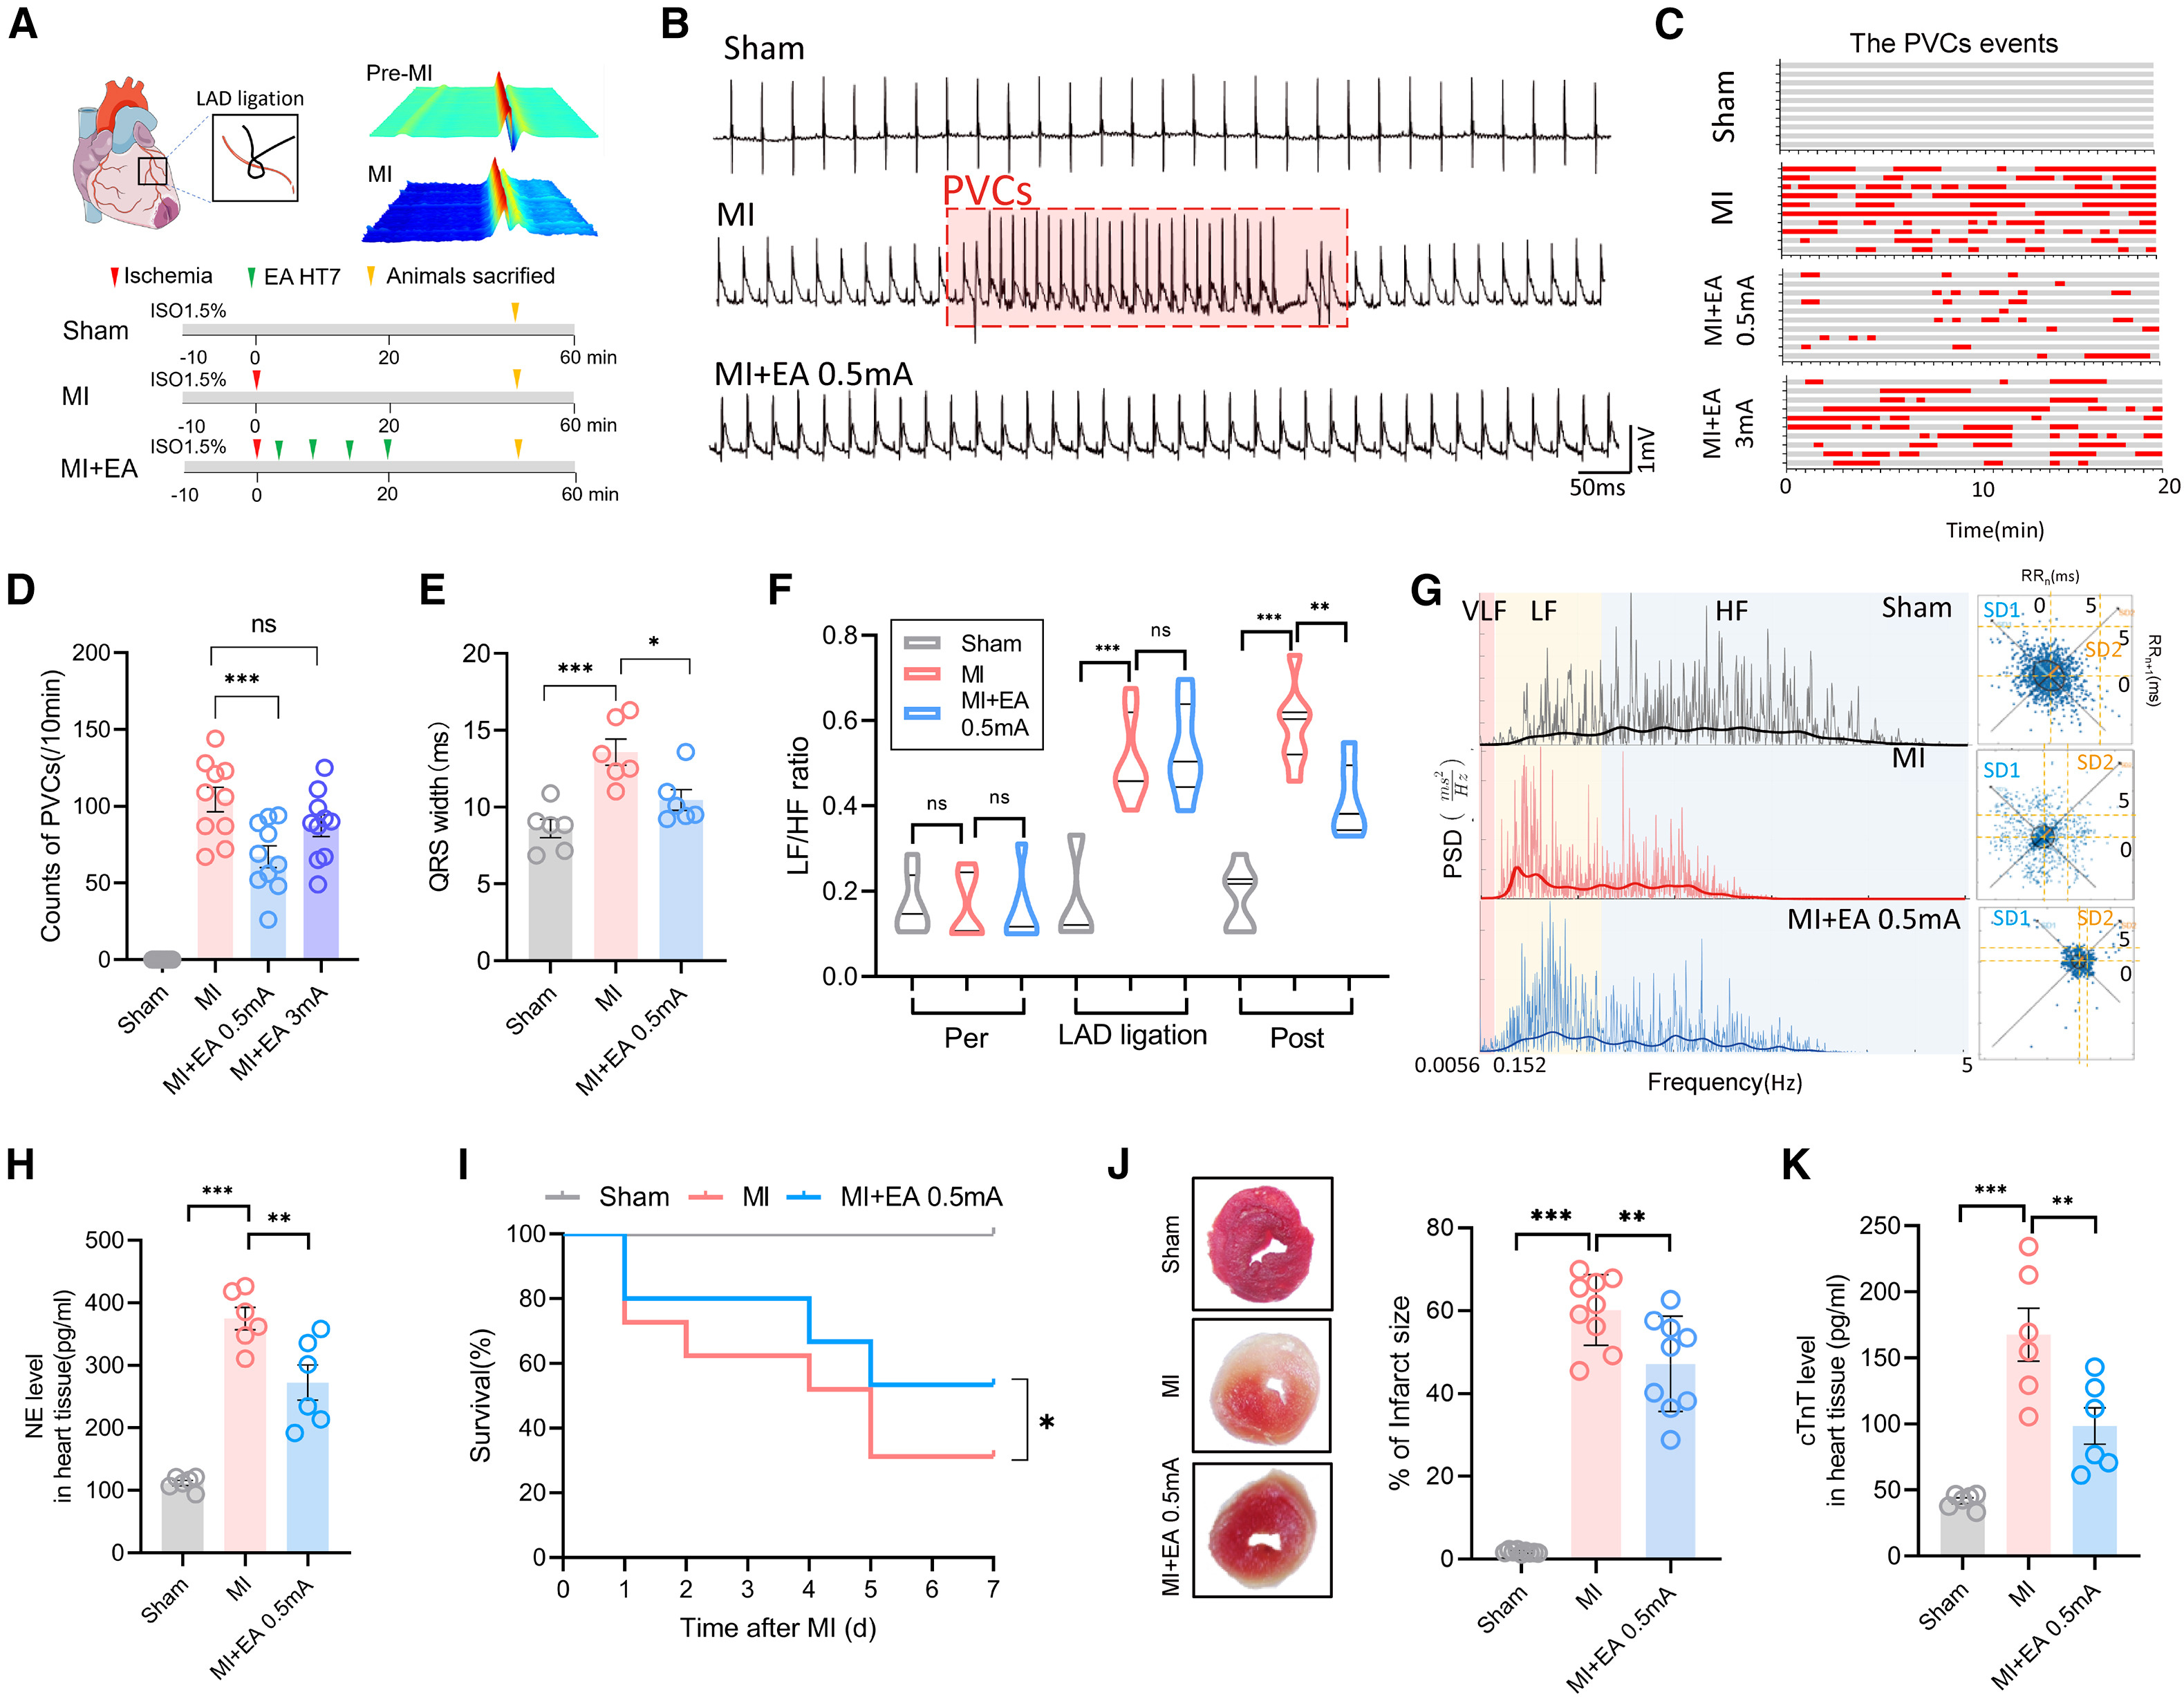
研究团队首先在左冠状动脉前降支(LAD)结扎构建的小鼠急性心肌梗死(MI)模型中,系统评估了神门穴(HT7,位于前肢掌侧腕横纹尺侧、尺侧腕屈肌腱桡侧凹陷处,紧邻尺神经)电针刺激(2 Hz)对室性早搏及心脏自主神经功能的影响。急性实验范式(图1A)中,小鼠在LAD结扎后即刻接受单次20分钟(0–20 min)电针干预并于造模后50分钟取材,存活率队列则连续观察7天。心电图(ECG)监测显示,LAD结扎诱发频发室性早搏(PVCs)与QRS波群增宽;给予0.5 mA低强度电针刺激后,心梗小鼠每10分钟室性早搏发生频次与比例显著下降、QRS波群时程明显恢复,而假电针(Sham EA,针刺入神门穴但不通电)或3 mA高强度电针均未能有效抑制室性早搏。
心率变异性(HRV)功率谱密度与庞加莱散点图(Poincaré plot,SD1/SD2)分析表明,心梗小鼠反映交感与迷走神经平衡的低频/高频功率比(LF/HF)及心肌组织去甲肾上腺素(NE)含量显著升高;0.5 mA神门穴电针可有效下调LF/HF比值、降低心肌NE水平并改善收缩压(附图S1F)。在7天观察期内,0.5 mA电针将心梗小鼠第1–3天存活率维持在80.0%,并将第7天存活率从心梗对照组的约31%提升至53.3%,同时显著缩小心肌梗死面积(TTC染色)并降低心肌损伤标志物心肌肌钙蛋白T(cTnT)水平。
来源:Fan Zhang et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
逆行与顺行跨突触示踪锁定初级运动皮层第5层谷氨酸能神经元
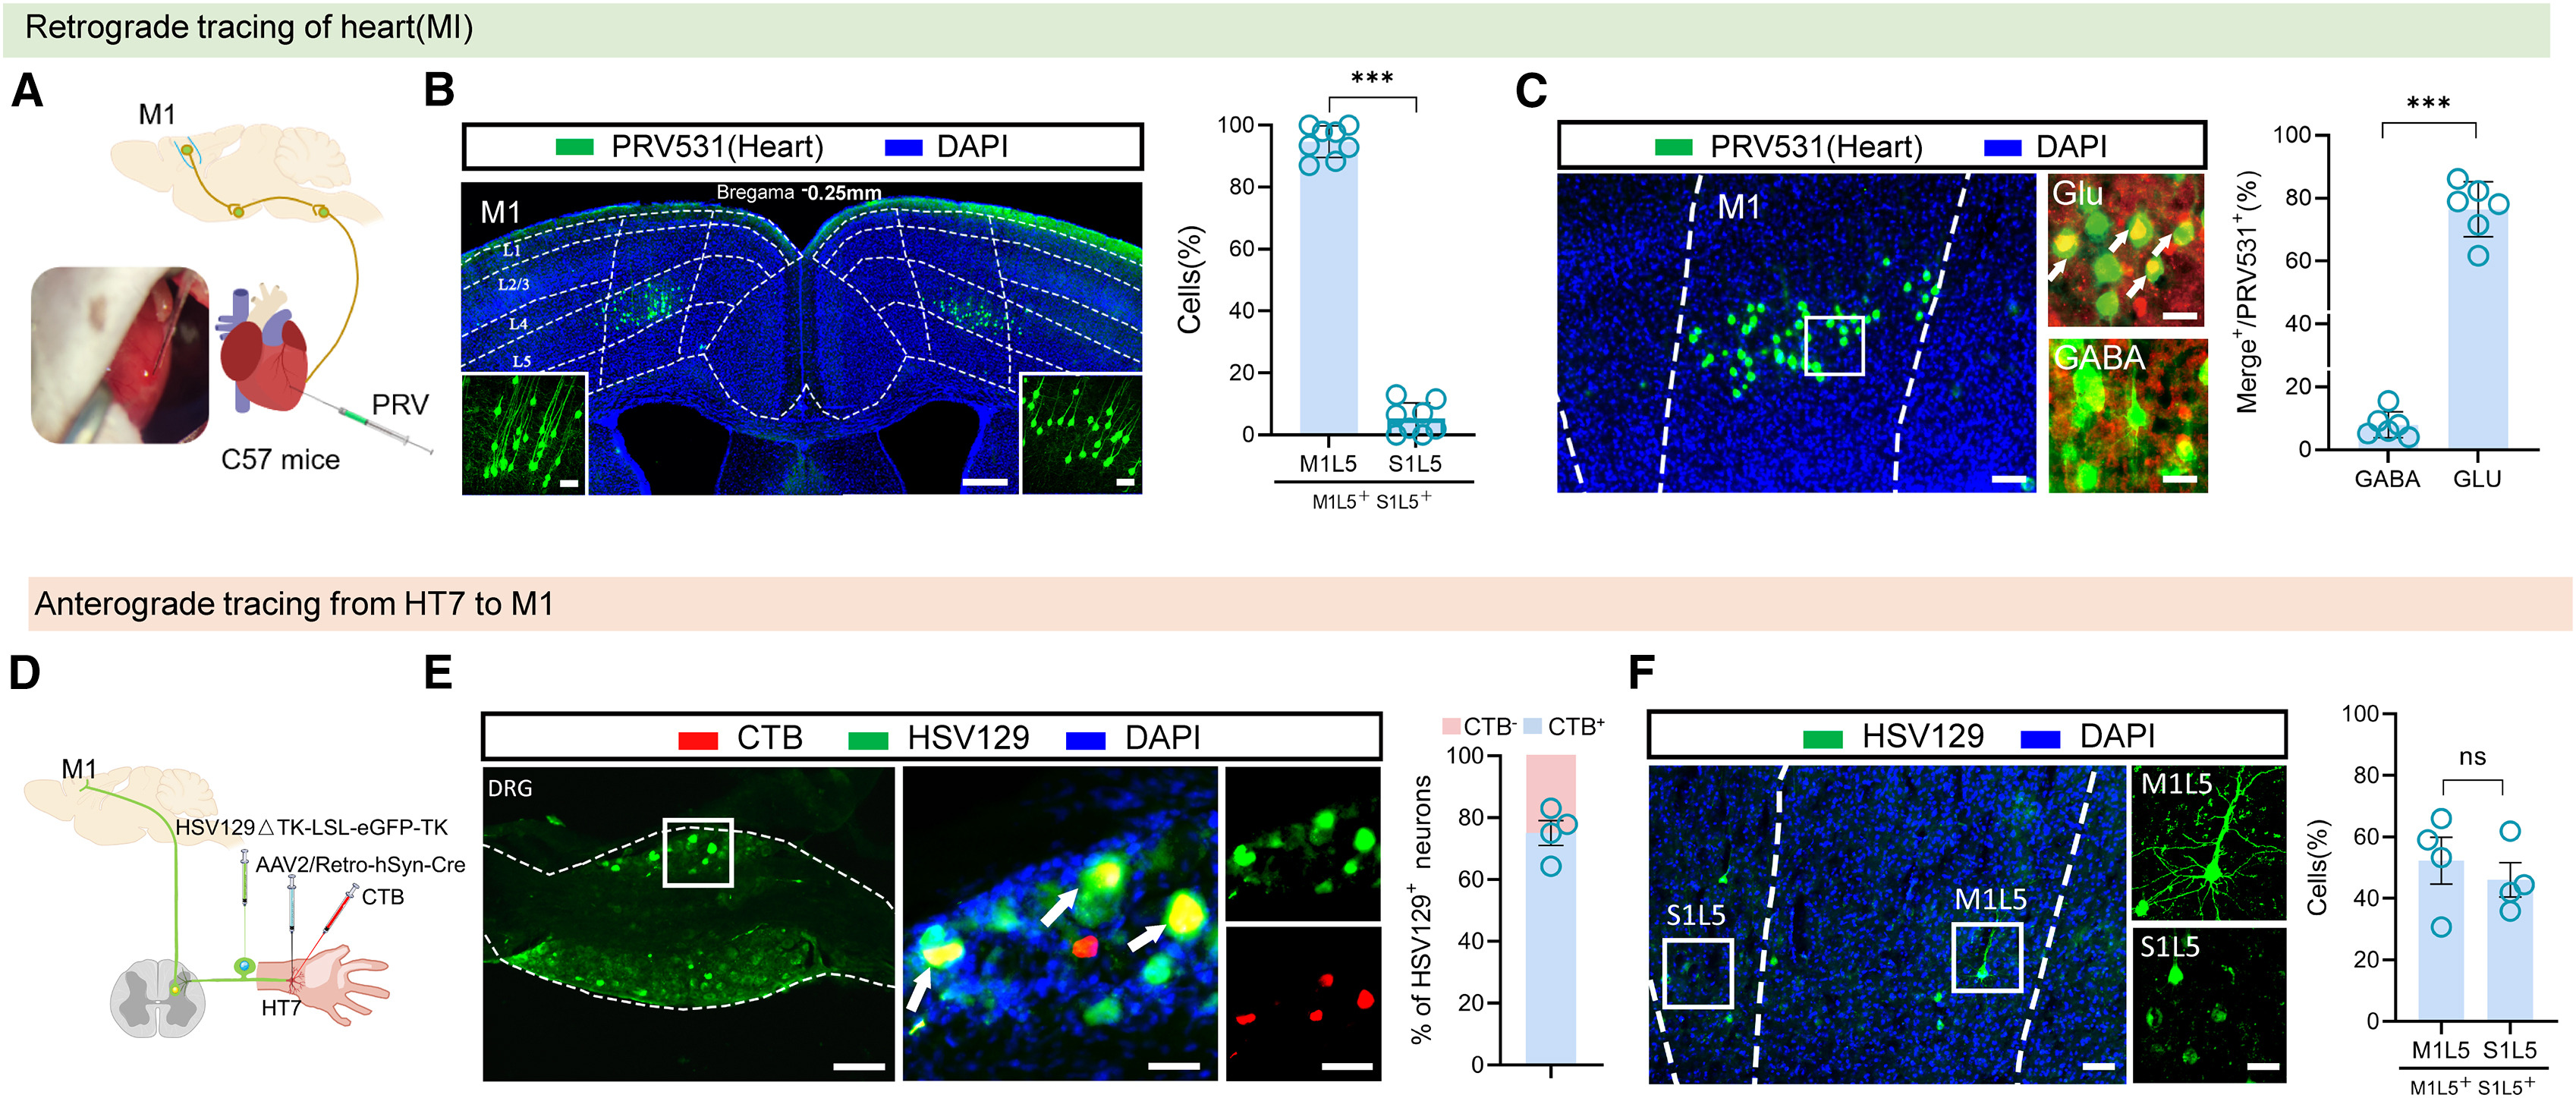
为了寻找介导神门穴电针调控心脏活动的皮层中枢,研究人员在小鼠左心室壁注射逆行跨多突触伪狂犬病毒(PRV531-EGFP)。注射后第6天全脑筛查发现,除了延髓头端腹外侧核(RVLM)、孤束核(NTS)、室旁核(PVN)及中脑导水管周围灰质(PAG)等经典自主神经核团外,大脑皮层中双侧初级运动皮层(M1)出现了密集的EGFP标记神经元,其数量显著高于初级躯体感觉皮层(S1),且约95%集中分布于M1第5层(M1L5)。三维形态重建与免疫荧光共标证实,这群心脏上游M1L5神经元呈典型锥体细胞形态,主要与谷氨酸(Glu)共标,而极少与GABA共标。
与此同时,团队追踪了神门穴向中枢传递的顺行通路:在神门穴注射霍乱毒素B亚单位(CTB)主要标记脊髓T3节段背角(I–IV层)及T3背根神经节(DRG)神经元;进一步在神门穴注射逆行AAV2/retro-hSyn-Cre,并在T3 DRG注射Cre依赖的顺行跨多突触单纯疱疹病毒(HSV129ΔTK-LSL-EGFP-TK),在M1L5与S1L5中同样观察到接收神门穴感觉传入的锥体神经元。这表明M1L5谷氨酸能神经元兼具接收神门穴上行信息与发出心脏下行调控指令的解剖学基础。
来源:Fan Zhang et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
电针通过抑制心梗诱发的M1L5谷氨酸能神经元亢进发挥抗早搏作用
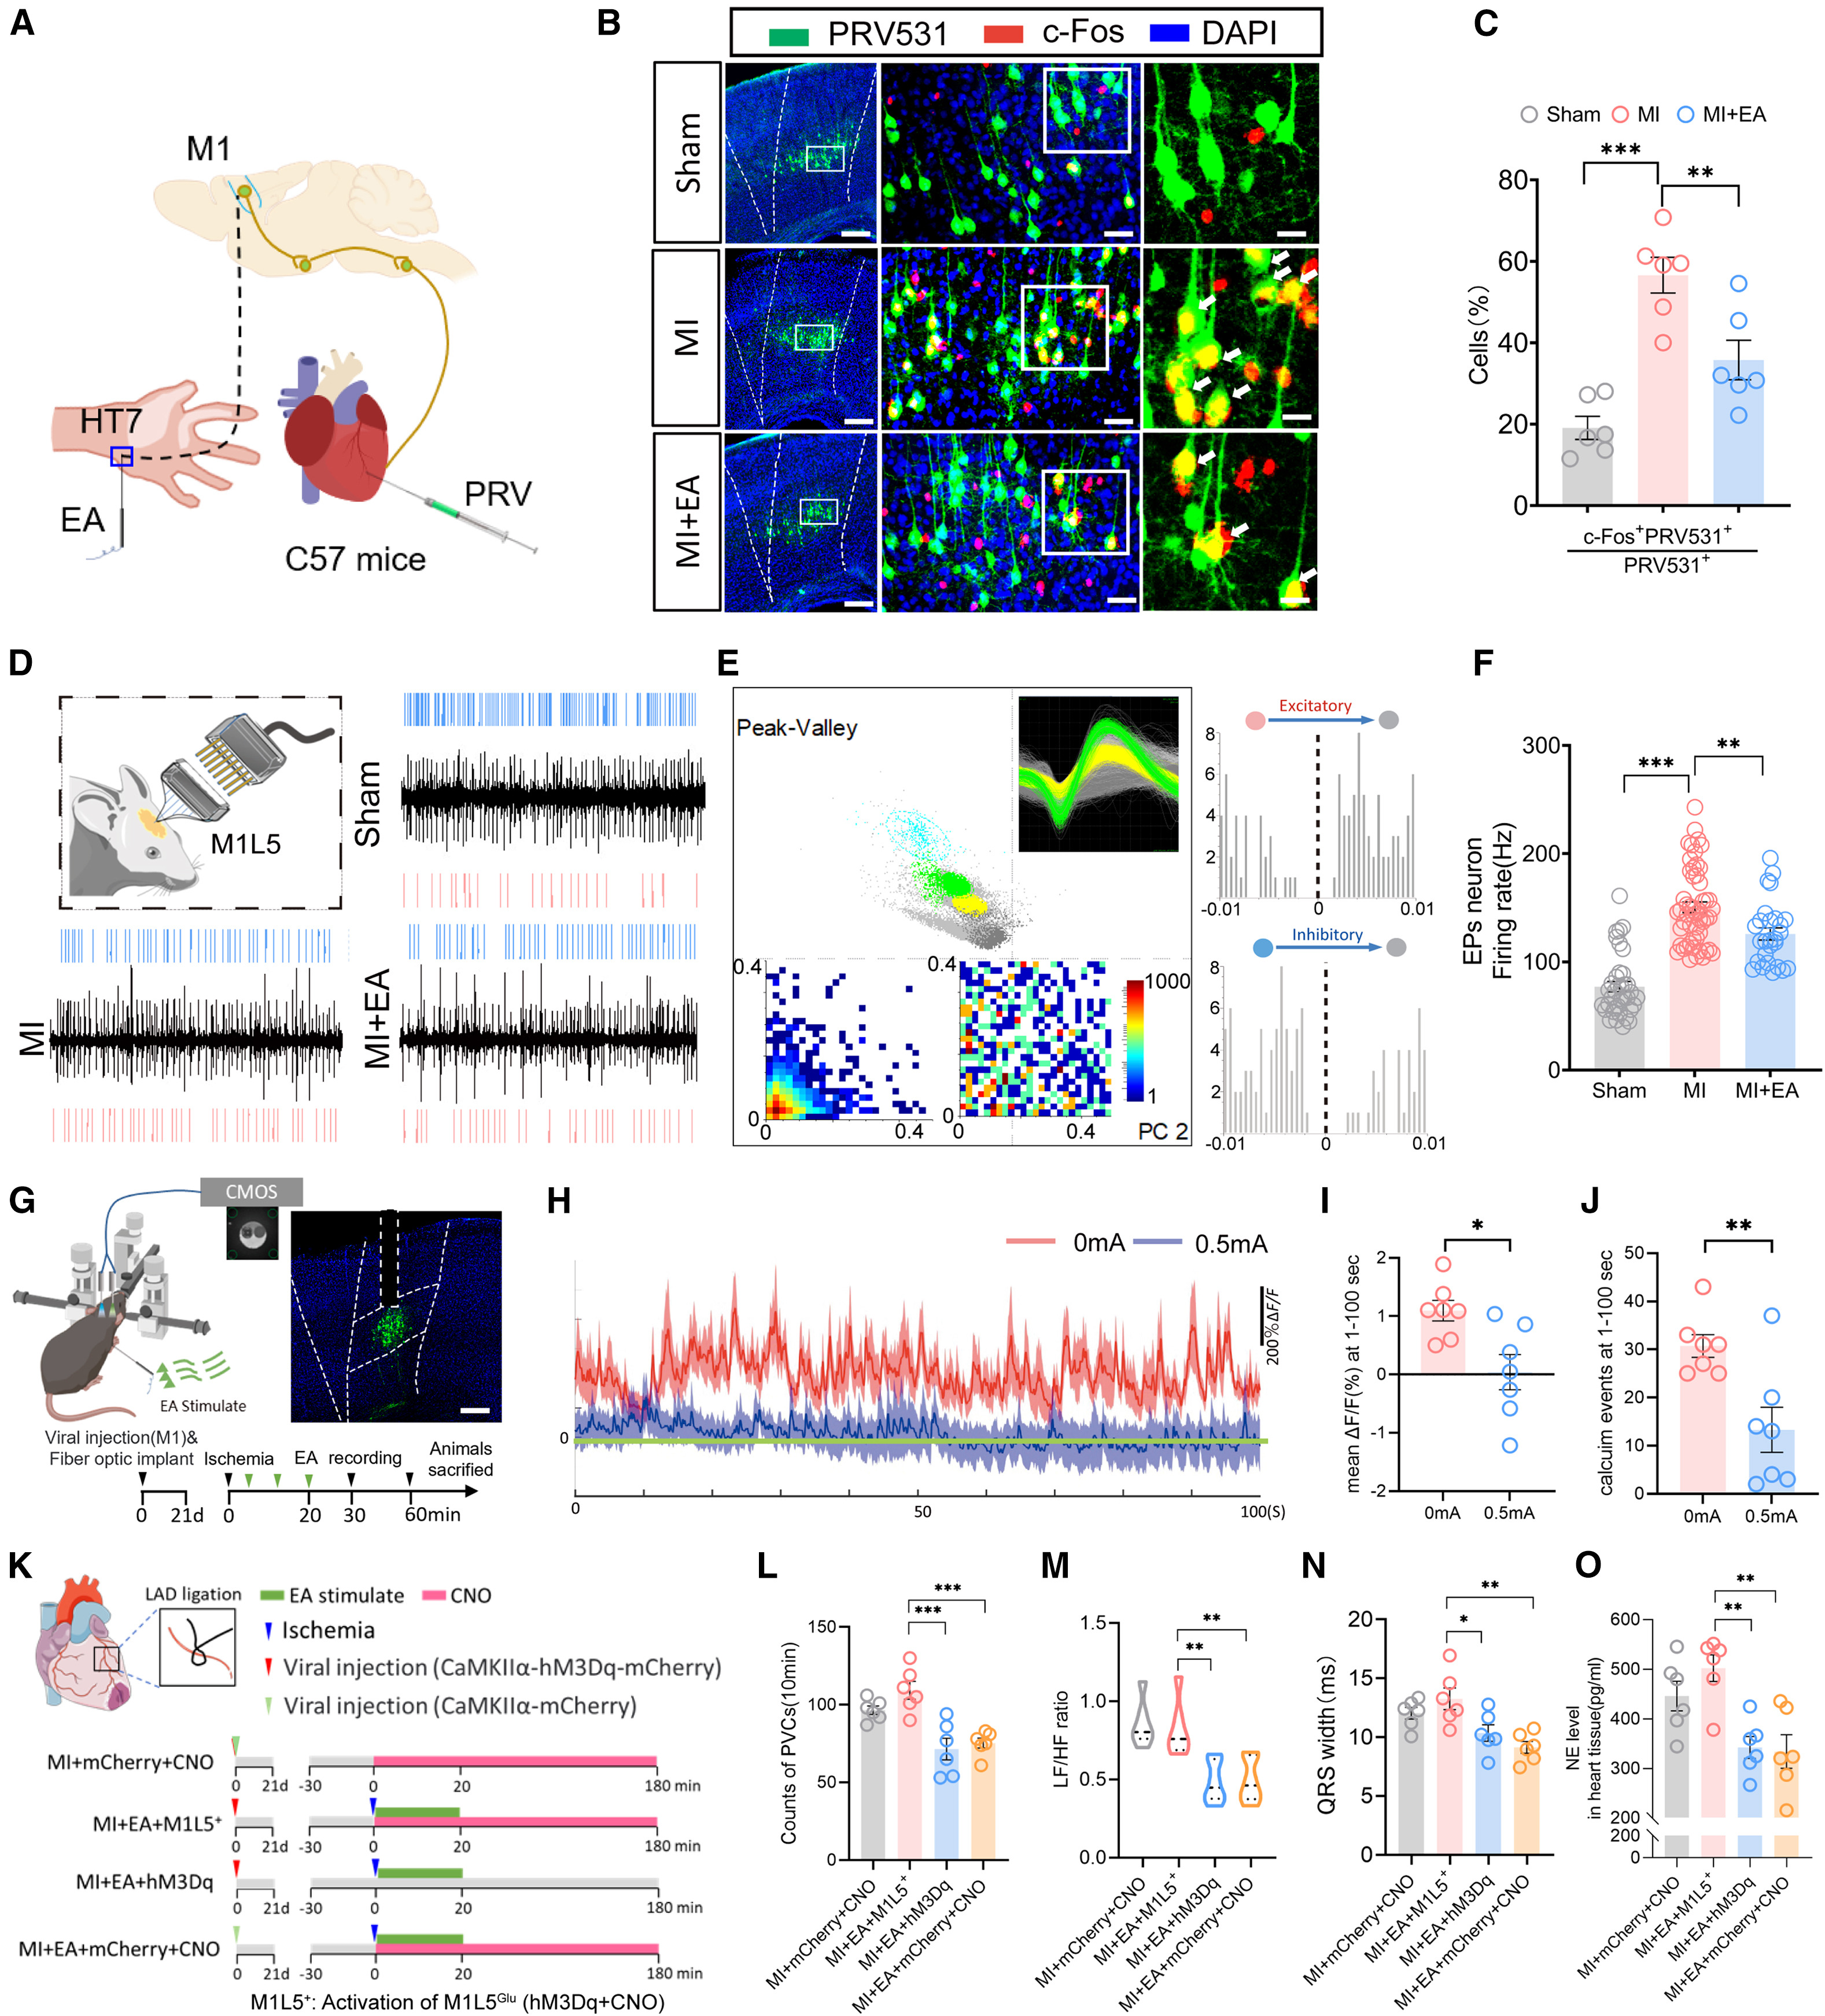
进一步实验显示,心梗小鼠延髓头端腹外侧核(RVLM)内酪氨酸羟化酶阳性(TH+)交感前运动神经元的c-Fos表达显著升高,而0.5 mA神门穴电针可逆转这一激活;在正常小鼠中,无论以化学遗传学(hM3Dq)还是光遗传学(ChR2,20 Hz)激活M1L5谷氨酸能神经元(M1L5Glu),均会显著增加RVLM神经元c-Fos表达,推高心率、LF/HF比值与心肌NE含量(原论文Figure 3)。在心梗小鼠中,心脏逆行PRV531标记的M1L5神经元c-Fos共标率显著上升;在体多通道电生理记录(无监督聚类分离出154个M1L5推定兴奋性锥体神经元Eps)与AAV-CaMKIIα-GCaMP6m光纤钙信号记录一致证实,心梗后M1L5Glu神经元的放电频率和钙信号事件显著增强,而0.5 mA(而非3 mA)神门穴电针能显著抑制M1L5Glu神经元的放电与钙活动。
为检验抑制M1L5Glu神经元是否为电针抗心律失常所必需,研究团队在双侧M1L5注射AAV-CaMKIIα-hM3Dq-mCherry,在进行0.5 mA神门穴电针前腹腔注射CNO以维持M1L5Glu神经元兴奋。结果显示,化学遗传学激活M1L5Glu神经元完全抵消了0.5 mA神门穴电针对心梗小鼠室性早搏频次、LF/HF比值、QRS波群宽度以及心肌去甲肾上腺素水平的改善效应,证明电针必须通过下调M1L5Glu神经元兴奋性才能抑制心梗后室性早搏。
来源:Fan Zhang et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
M1L5谷氨酸能投射经背侧未定带非GABA能神经元抑制腹侧未定带GABA能神经元
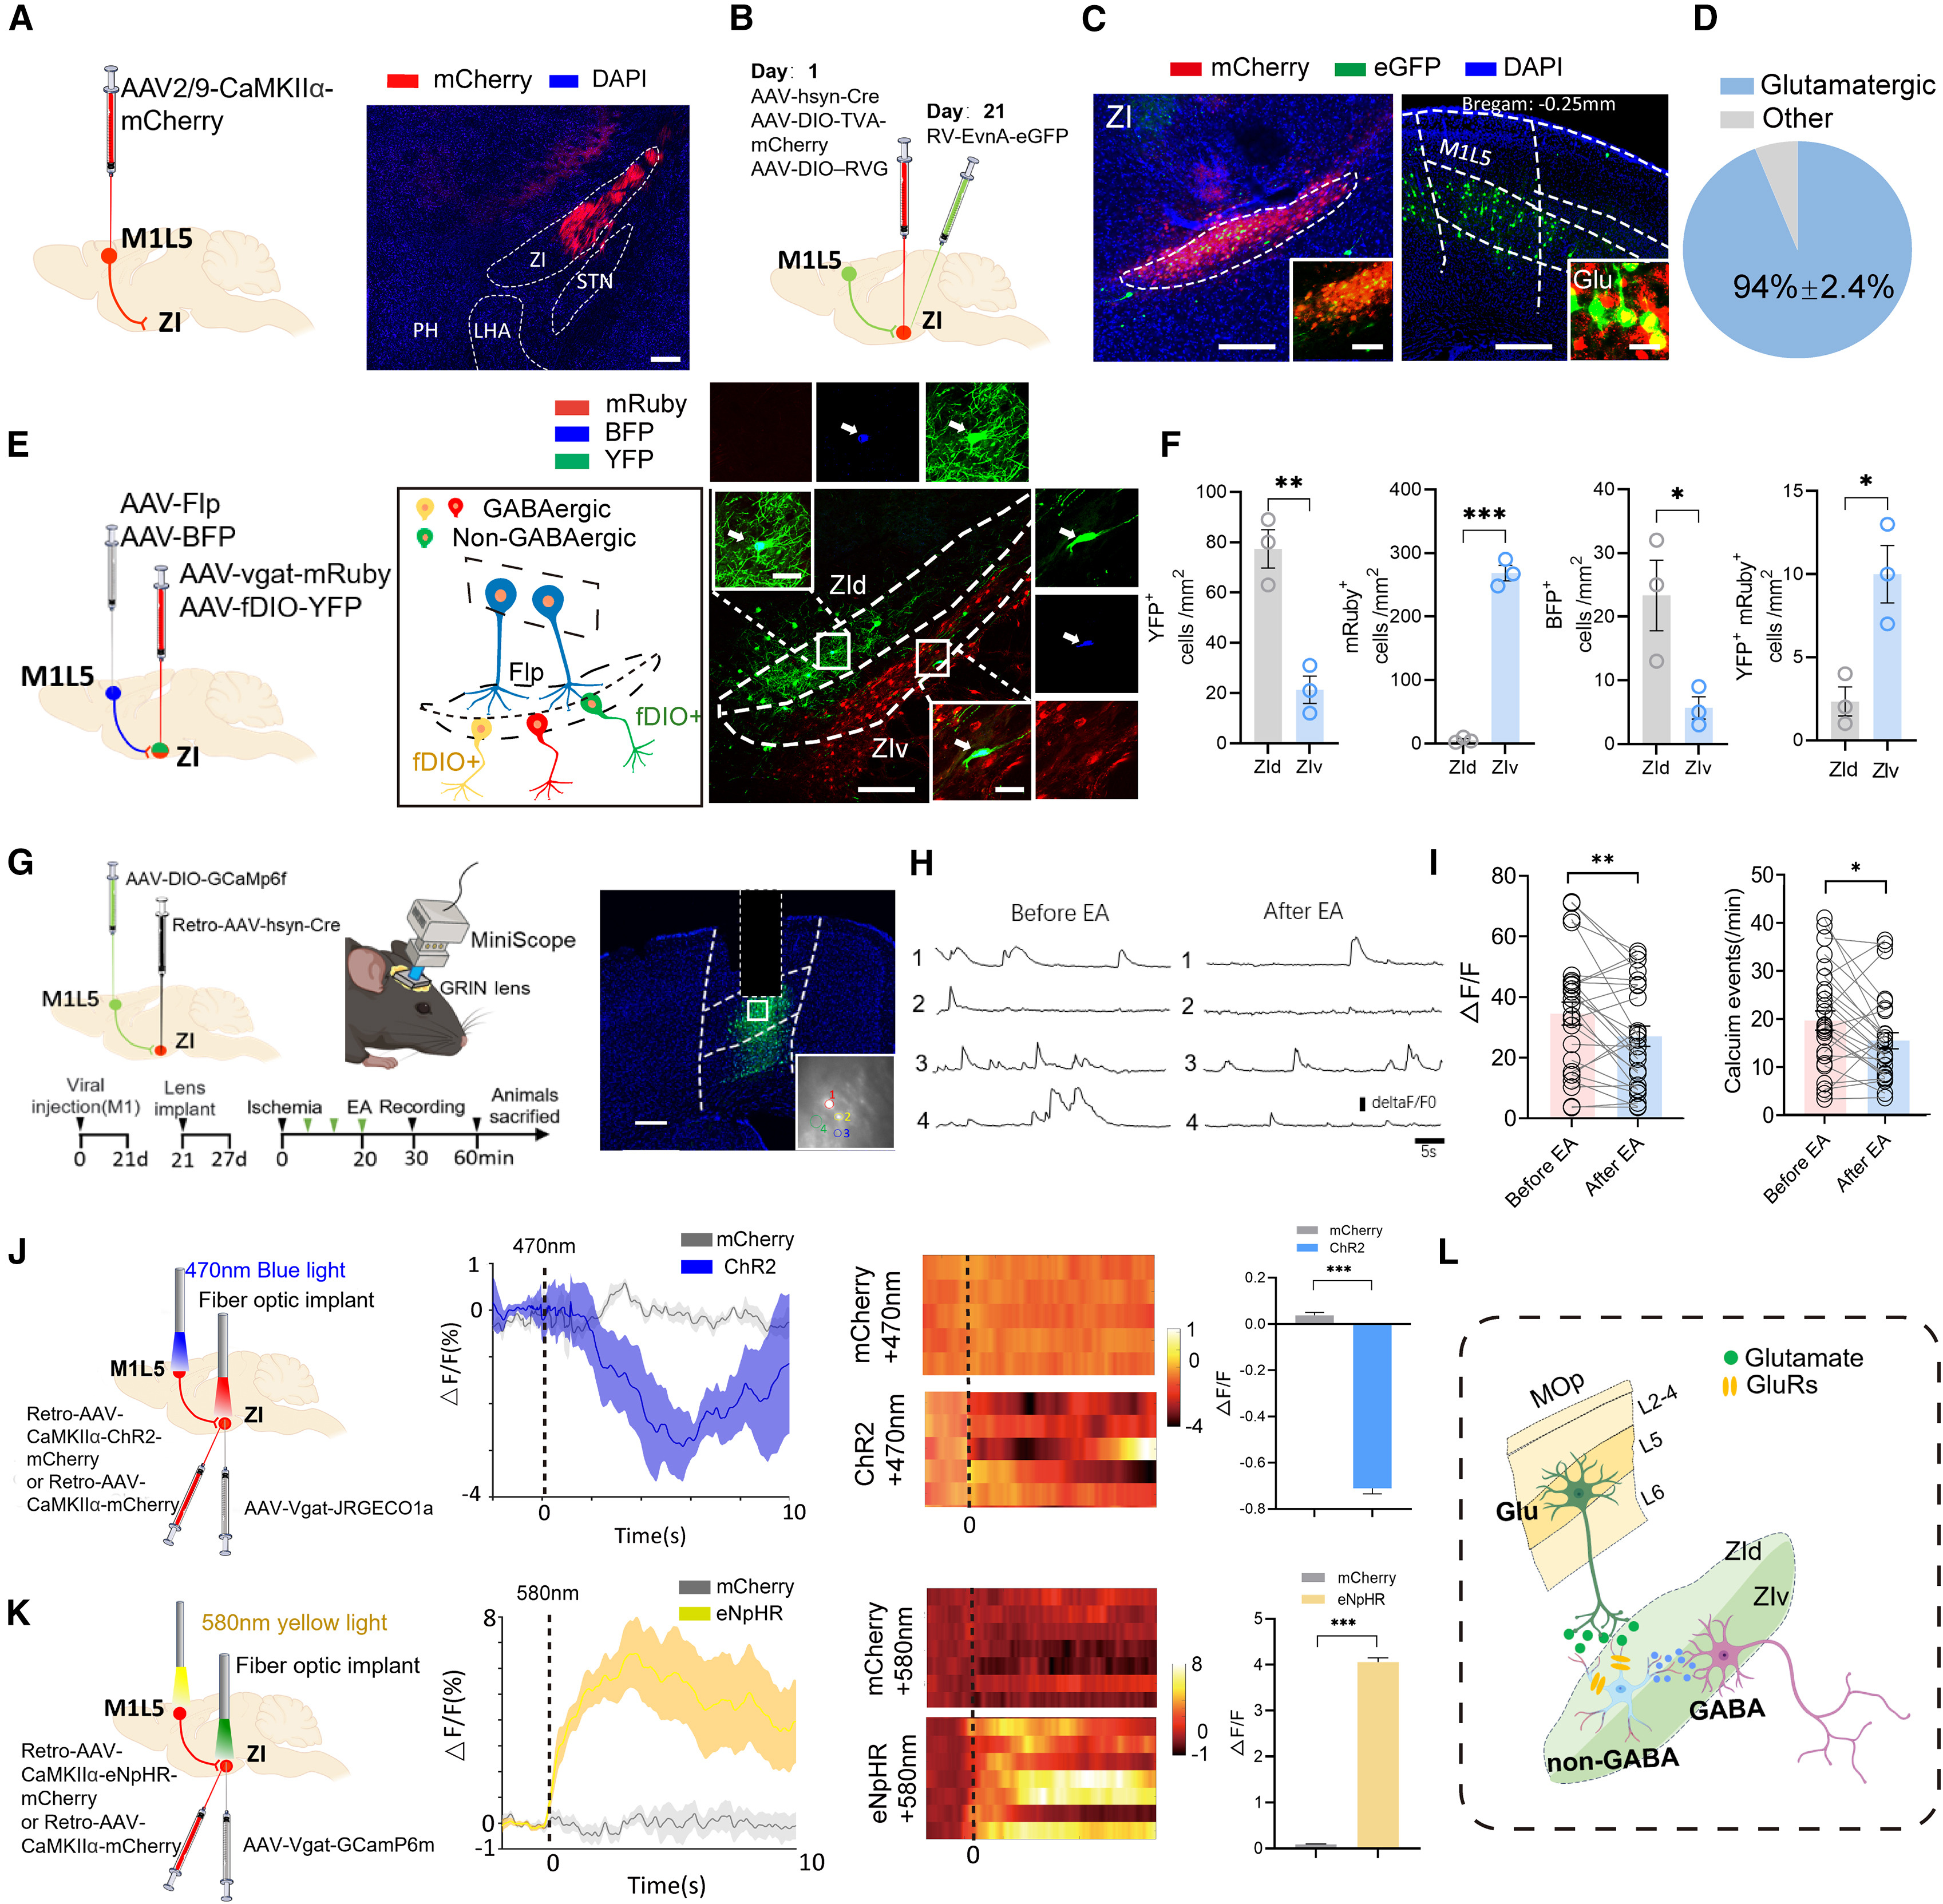
M1L5Glu神经元如何调控延髓RVLM?顺行示踪(AAV-CaMKIIα-ChR2-mCherry)与单突触狂犬病病毒逆行示踪(RV-EnvA-ΔG-EGFP)表明,M1L5Glu并不直接投射至RVLM,而是密集投射至底丘脑的未定带(ZI)及中脑腹外侧导水管周围灰质(vlPAG)。功能筛查显示,光遗传学激活M1L5Glu→ZI投射(而非M1L5Glu→vlPAG投射)可显著升高RVLM的c-Fos表达、心脏LF/HF比值及心肌去甲肾上腺素水平(图5A–C)。
解剖学上未定带分为以非GABA能神经元为主的背侧部(ZId)和富含GABA能神经元的腹侧部(ZIv)。单突触狂犬病病毒逆行示踪与跨突触顺行标记(M1L5注射AAV1-hSyn-Flpo,ZI注射AAV-fDIO-EGFP与GABA能特异的AAV-mDlx-mCherry)证实,M1L5Glu轴突主要支配ZId非GABA能神经元(ZIdnon-GABA),再由ZIdnon-GABA神经元向邻近ZIvGABA神经元发出局部投射(图5D–F)。自由活动小鼠微型显微镜(Miniscope)单细胞钙成像(追踪26个投射至ZI的M1L5神经元)显示,心梗后该群投射神经元钙活动显著增强,而0.5 mA神门穴电针可有效抑制其单细胞钙活动(图5G–I);同时,光纤记录证实光激活(ChR2)M1L5Glu→ZI末梢会抑制ZIvGABA神经元的JRGECO1a钙信号,而光抑制(eNpHR,580 nm)M1L5Glu→ZI末梢则去抑制并增强ZIvGABA神经元的GCaMP6m钙信号(图5J–L)。
来源:Fan Zhang et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
未定带GABA能神经元直投RVLM并在M1L5Glu激活时挽救电针抗早搏效应
顺行跨单突触病毒(HSV129-ΔTK)与RVLM逆行单突触狂犬病病毒示踪显示,腹侧未定带GABA能神经元(ZIvGABA)直接投射至延髓RVLM。光纤钙信号记录(AAV-Vgat-GCaMP6m)与活性依赖的Fos-TRAP标记(87.77% ± 2.97%的mCherry+激活细胞与GABA共标)证实,0.5 mA神门穴电针可显著激活心梗小鼠的ZIvGABA神经元;化学遗传学抑制ZIvGABA神经元会阻断电针的抗室性早搏作用,而直接激活ZIvGABA→RVLM通路即可模拟电针的心脏保护效应(原论文Figure 6)。
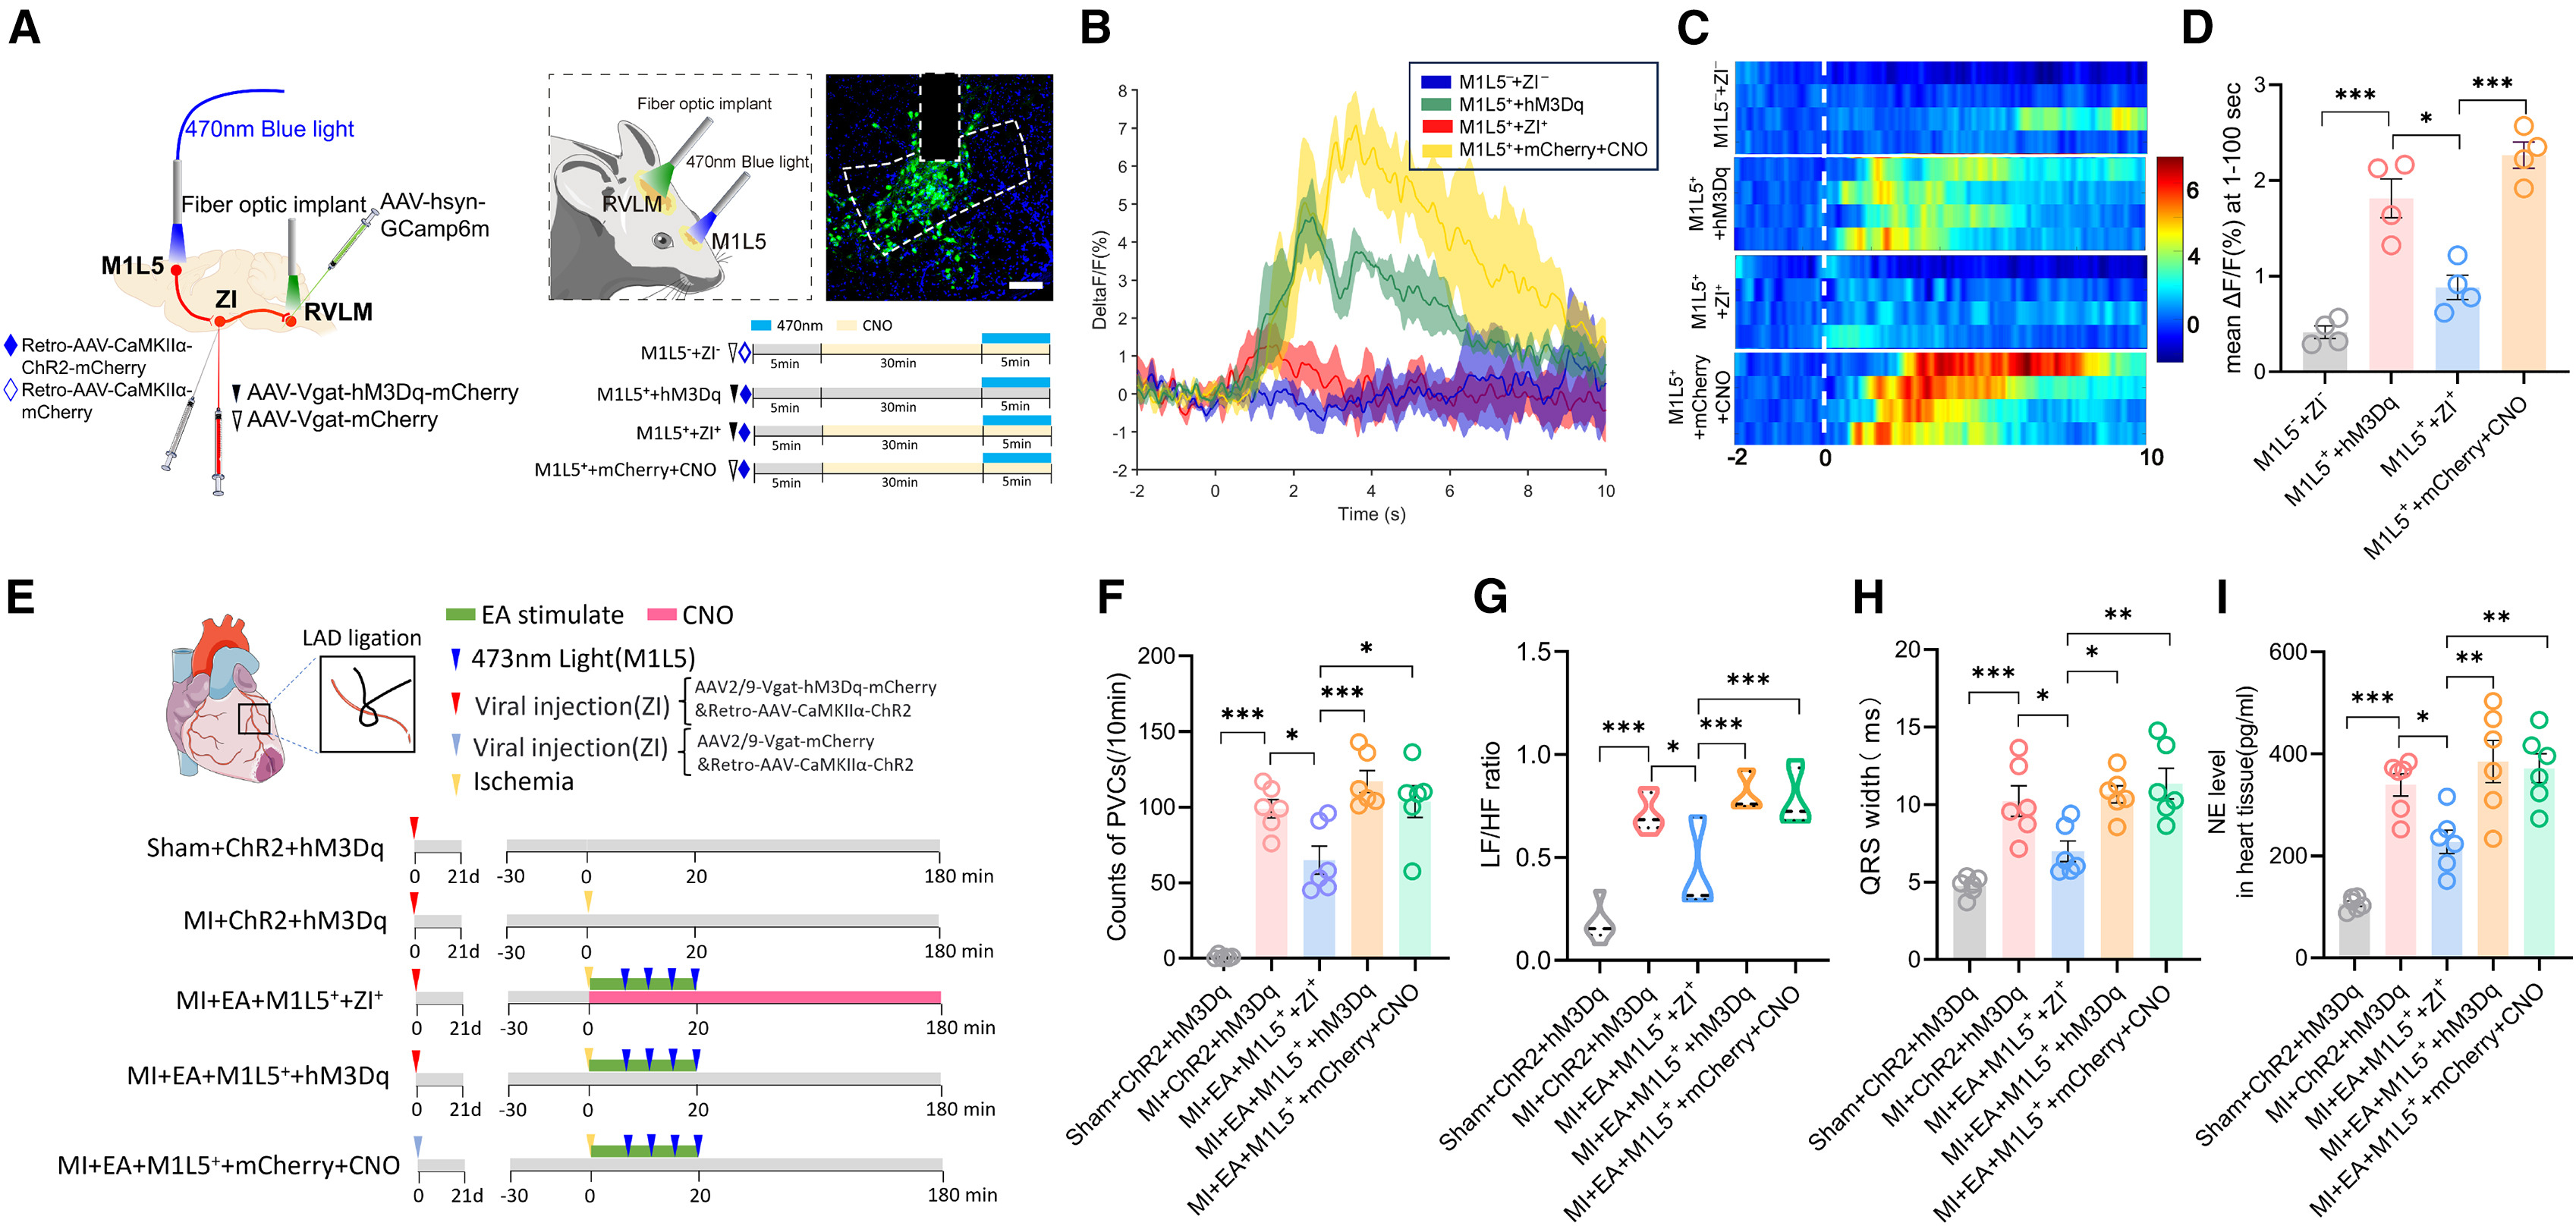
为了在完整三级环路层面验证因果关系,研究团队在心梗小鼠M1L5表达ChR2、在ZI植入光纤,同时在ZIvGABA神经元中表达兴奋性受体hM3Dq,并在RVLM记录GCaMP6m钙信号。实验表明,光遗传学激活M1L5Glu→ZI投射不仅增强了RVLM交感前运动神经元的钙活动,还完全阻断了0.5 mA神门穴电针对室性早搏、LF/HF比值、QRS宽度和心肌去甲肾上腺素的抑制作用;而在此基础上通过腹腔注射CNO同步化学遗传学激活ZIGABA神经元,则重新压低了RVLM钙信号,并恢复了电针减少室性早搏和降低交感张力的疗效。这一结果完整确立了“神门穴低强度电针 → 抑制M1L5Glu → 去抑制ZIvGABA → 抑制RVLM交感输出 → 减少心梗后室性早搏”的中枢神经环路机制。
来源:Fan Zhang et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗