压力过后为何多梦易醒?外侧缰核里那群只在快速眼动期活跃的细胞
小鼠研究区分外侧缰核通向不同下游的两条睡眠调节通路,发现一群在快速眼动睡眠期活跃的神经元在慢性应激后兴奋性增强。
快速眼动(REM)睡眠总量增多、潜伏期缩短及θ振荡增强是抑郁症患者与慢性应激动物模型最典型且高度保守的睡眠电生理内表型之一。外侧缰核(lateral habenula, LHb)作为公认的“反奖赏”与抑郁核心核团,虽已知其簇状放电(burst firing)参与抑郁样行为,但LHb神经元在生理性非快速眼动(NREM)与REM睡眠中的精确调控分工,以及它如何将慢性应激转化为病理性REM睡眠过多与抑郁情绪,仍缺乏系统的环路解释。 2024年6月28日,吉林大学基础医学院赵华教授团队与陆军军医大学基础医学院任栓成教授、胡志安教授团队合作(第一作者为张泽慧)在《Current Biology》发表题为“The lateral habenula regulates physiological sleep and mediates chronic stress-induced REM sleep disorder and depressive-like behaviors”的研究论文。研究团队结合多导睡眠脑电/肌电(EEG/EMG)监测、在体光纤光度钙成像、在体多通道四极子(tetrode)单细胞记录、活动依赖性遗传捕获(TRAP2)、离体脑片膜片钳及投射特异性化学/光遗传操控,发现LHb谷氨酸能神经元通过投射至脚间核尾侧被盖区(RMTg)促进NREM睡眠,而通过一群特异投射至腹侧被盖区(VTA)的REM睡眠活跃型神经元促进REM睡眠;慢性束缚应激(CRS)通过诱导该群神经元超极化及簇状放电重塑,共同驱动了病理性REM睡眠增多与抑郁样行为。
本研究阐明了外侧缰核(LHb)通过LHb–RMTg和LHb–VTA两条独立通路分别调控生理性NREM睡眠与REM睡眠,并鉴定出一群特异投射至VTA的REM睡眠活跃型LHb谷氨酸能神经元;慢性应激通过诱导该亚群超极化与簇状放电增强,共同驱动了病理性REM睡眠过多与抑郁样行为。
阅读目录 · 7个部分
外侧缰核谷氨酸能神经元双向调控生理性NREM与REM睡眠
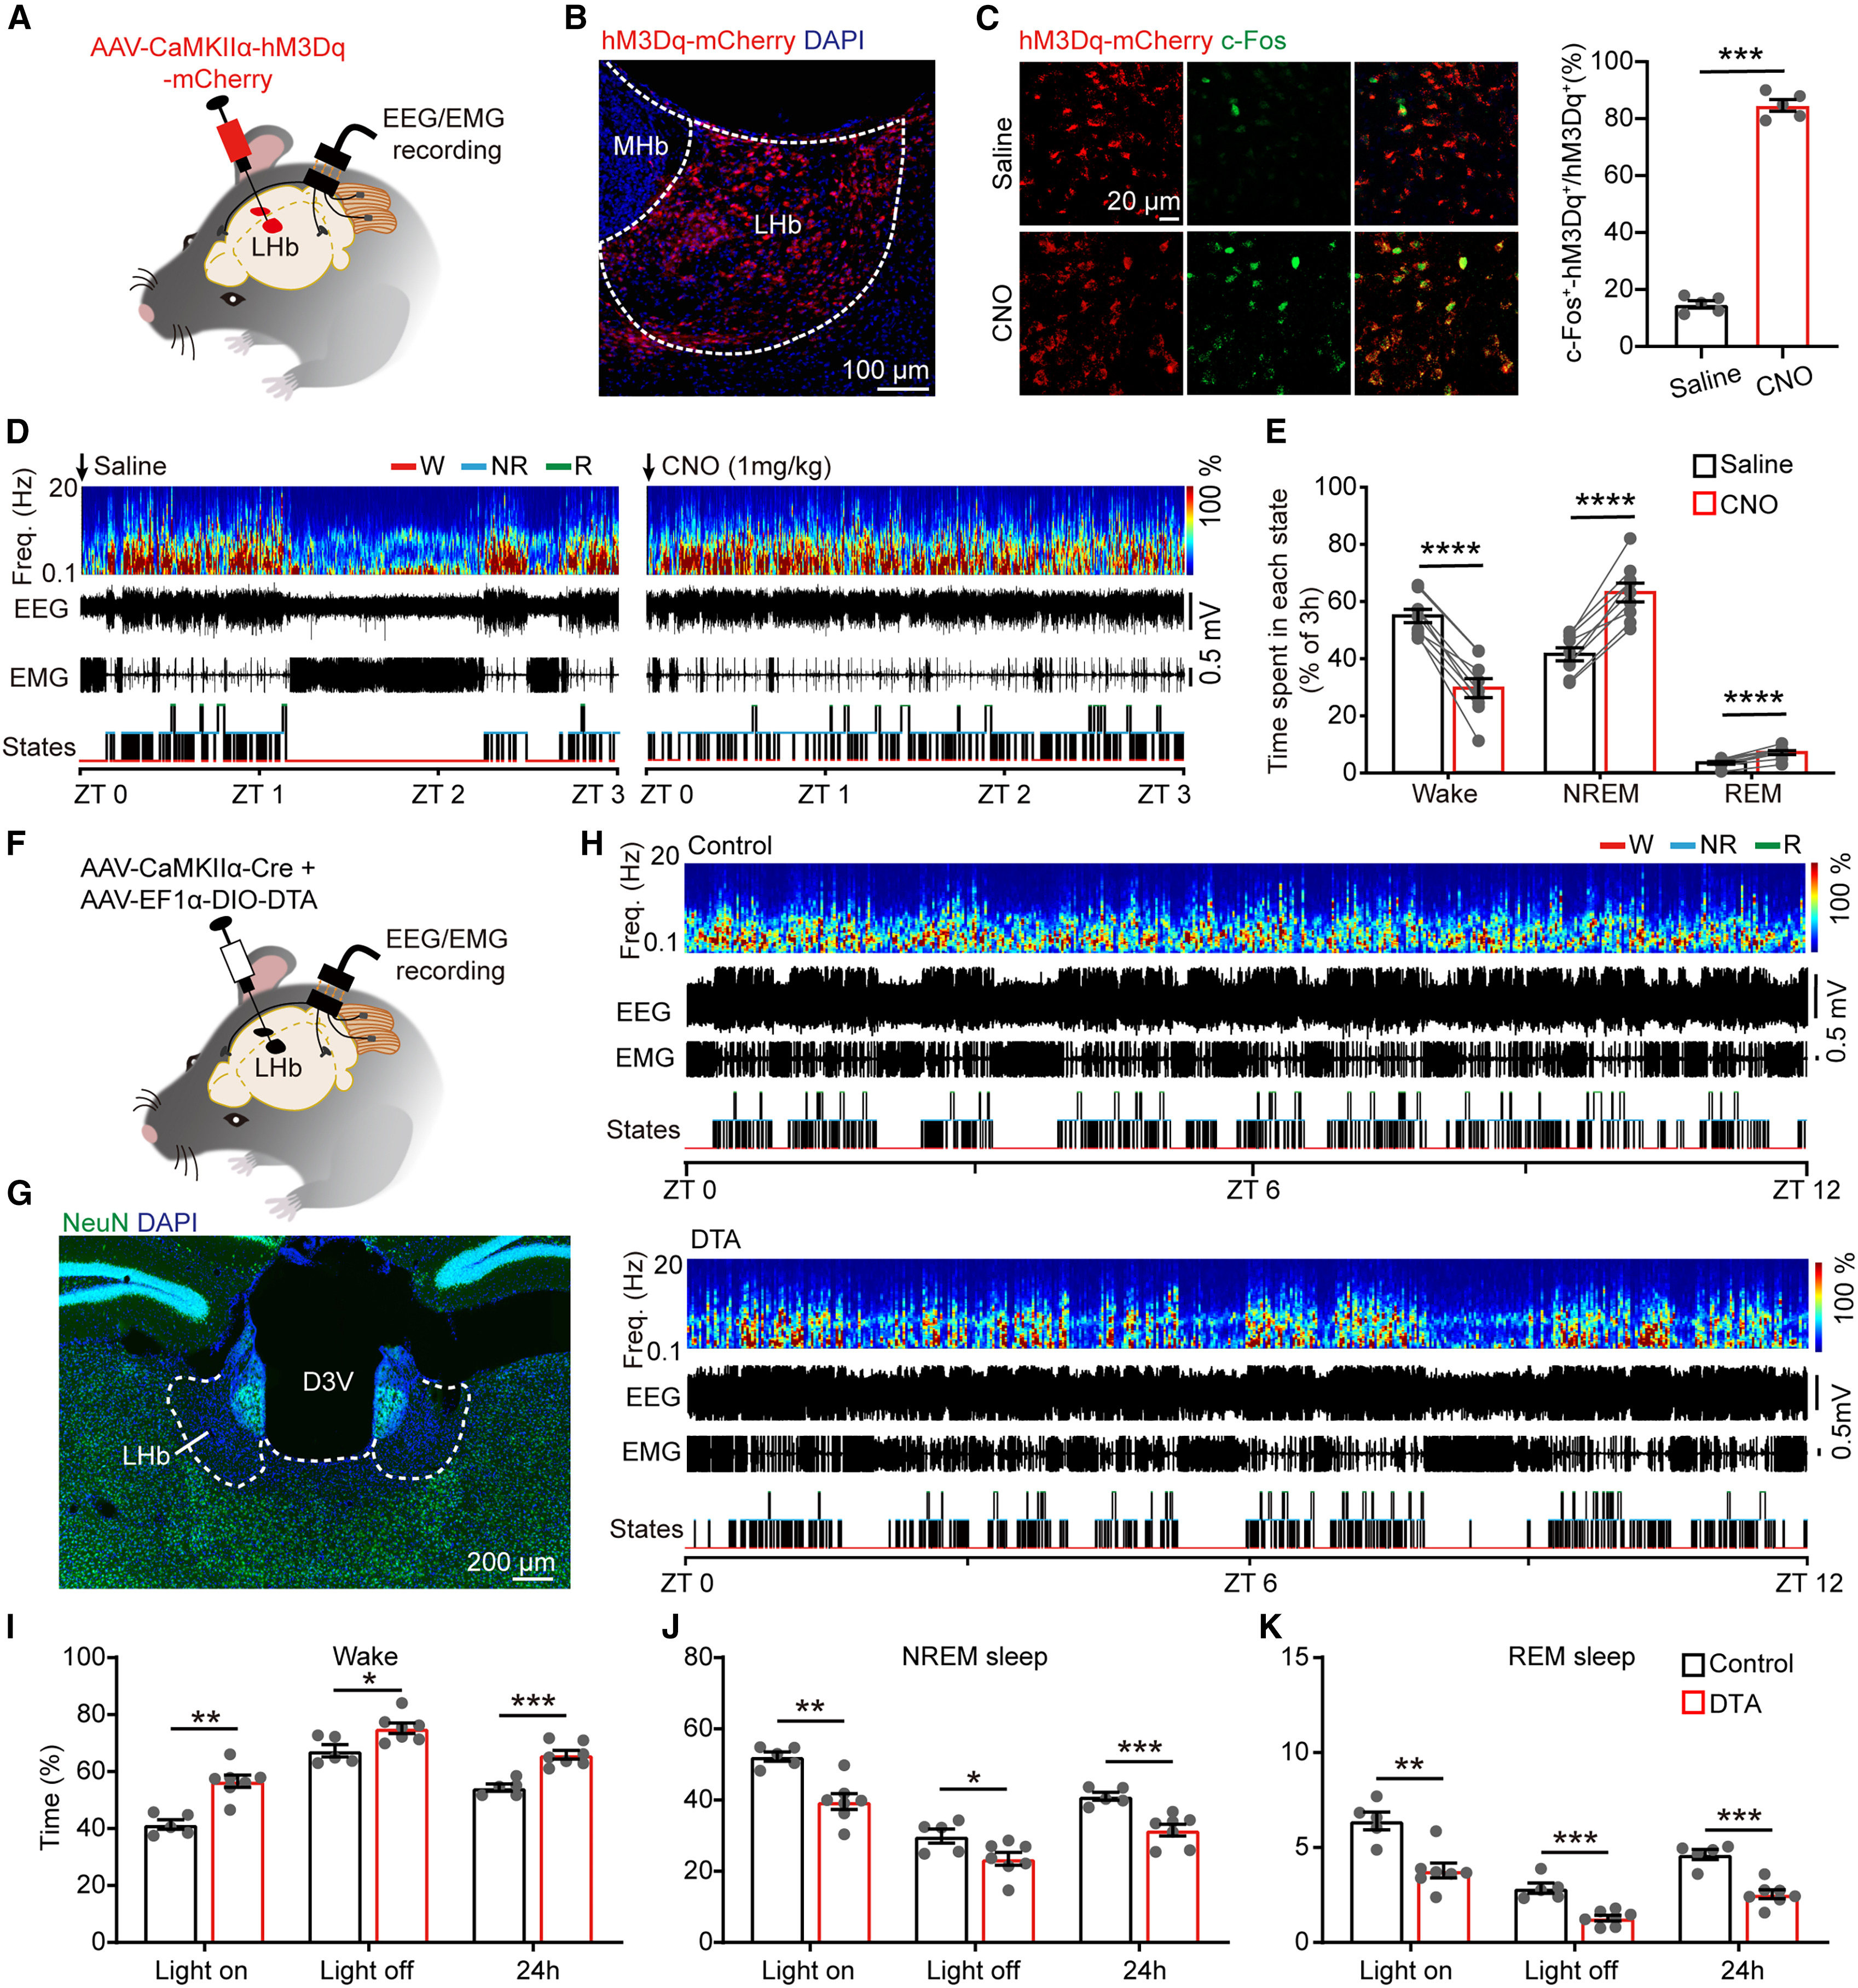
研究团队首先在成年雄性C57BL/6小鼠双侧LHb注射AAV-CaMKIIα-hM3Dq-mCherry,分别在光照期起始(ZT 0)或暗期起始(ZT 12)腹腔注射CNO(1 mg/kg)。24小时EEG/EMG监测表明,化学遗传学激活LHb谷氨酸能神经元在两个时相均显著增加NREM睡眠与REM睡眠的发作次数和总时长,并相应减少觉醒时间。
反之,利用AAV-CaMKIIα-hM4Di-mCherry化学遗传学抑制LHb神经元、共注射AAV-CaMKIIα-Cre与AAV-EF1α-DIO-DTA进行慢性遗传学消融,或在NREM睡眠期间通过AAV-CaMKIIα-ArchT-EGFP施加590 nm黄光急性光遗传抑制,均一致地减少NREM与REM睡眠时长并延长觉醒时间,证明LHb谷氨酸能神经元在生理状态下对NREM和REM睡眠均具有双向促进作用。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
在体钙信号与单细胞电生理揭示LHb神经元在REM睡眠期高度活跃
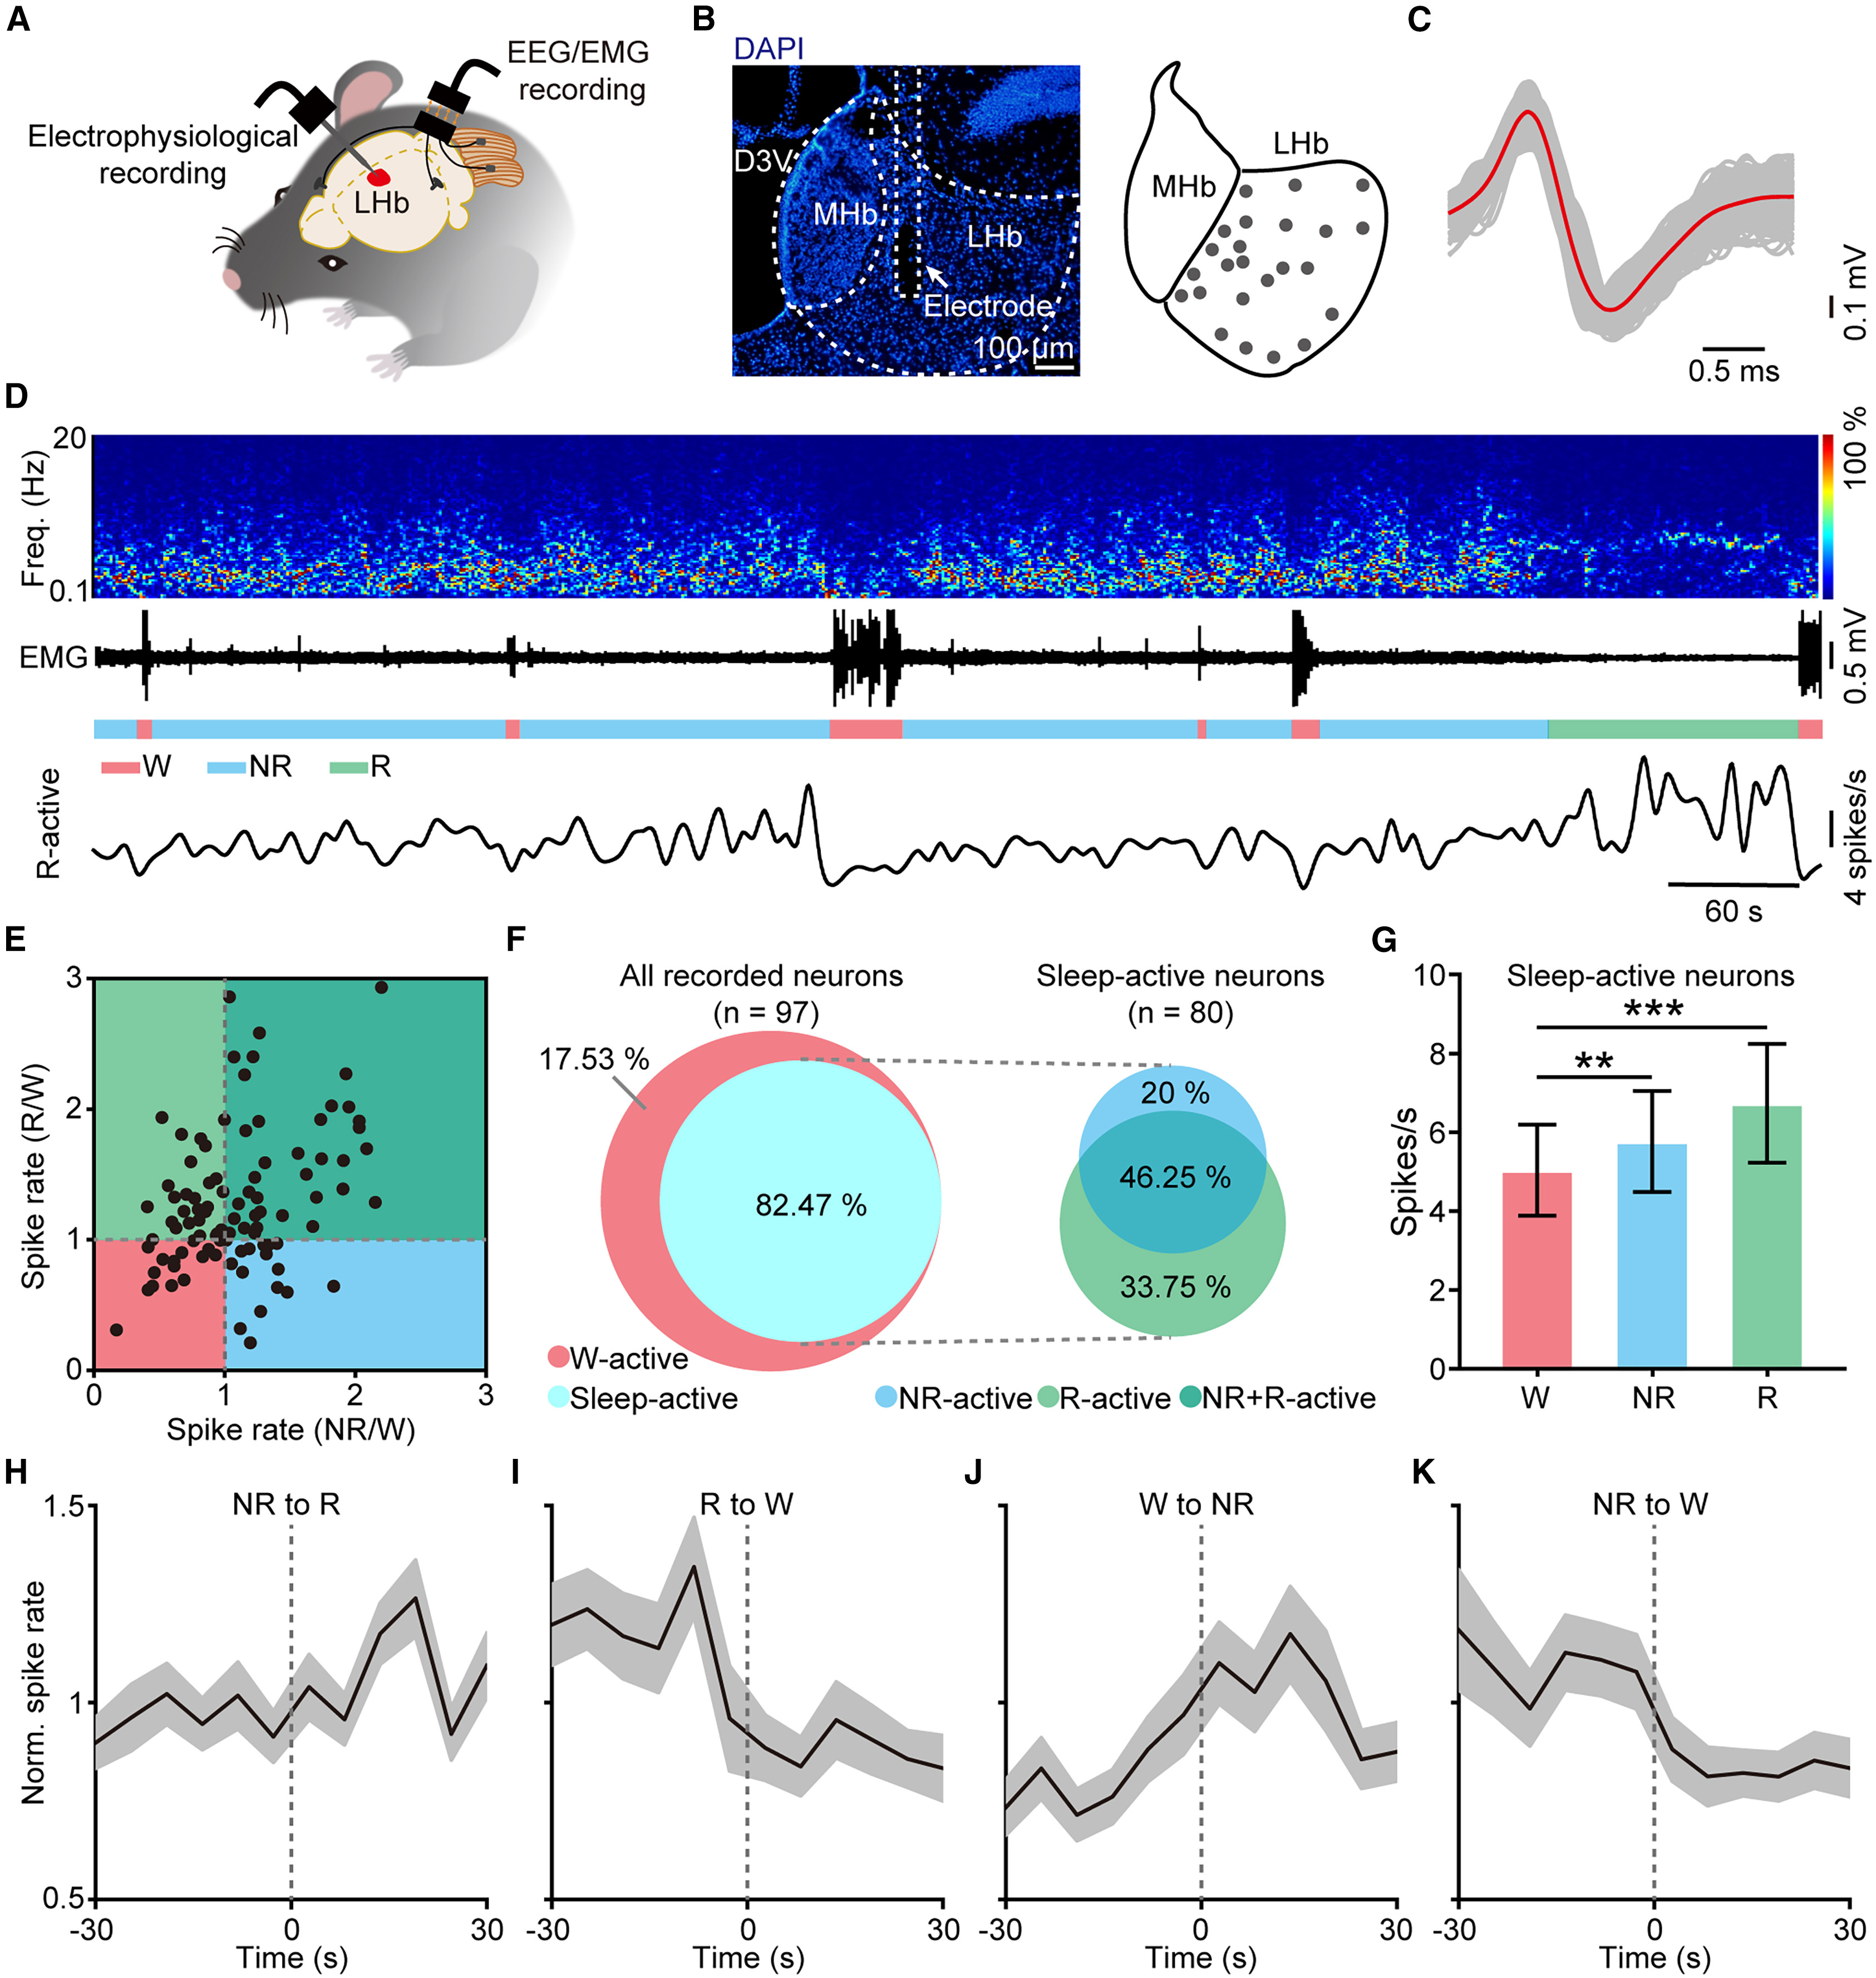
为刻画LHb神经元在自然睡眠-觉醒周期中的动态活动,研究团队在小鼠LHb注射AAV-CaMKIIα-GCaMP6s并植入陶瓷光纤插芯,使用双波长光纤记录系统(470 nm钙信号激发光与410 nm等吸收参考光)同步记录自由活动小鼠的钙信号与EEG/EMG。结果显示,LHb群体钙信号在REM睡眠期达到最高水平,并在NREM向REM睡眠转换(NREM→REM)时出现显著上升,而在REM向觉醒转换(REM→Wake)时迅速回落。
由于群体钙信号难以区分功能异质性亚群,研究者进一步在14只小鼠的LHb中植入微驱动四极子(tetrode)电极,成功记录到97个单神经元。聚类分析显示,高达82.5%(80/97)的LHb神经元为睡眠活跃型神经元,其中33.75%(27/80)为选择性在REM期高放电的R-active神经元,46.25%(37/80)为在NREM与REM期均高放电的NR+R-active神经元,其余20%(16/80)为NR-active神经元,从单细胞层面揭示了LHb内存在特异编码REM睡眠的神经元亚群。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
遗传捕获REM睡眠活跃型LHb神经元并证实其选择性调控REM睡眠
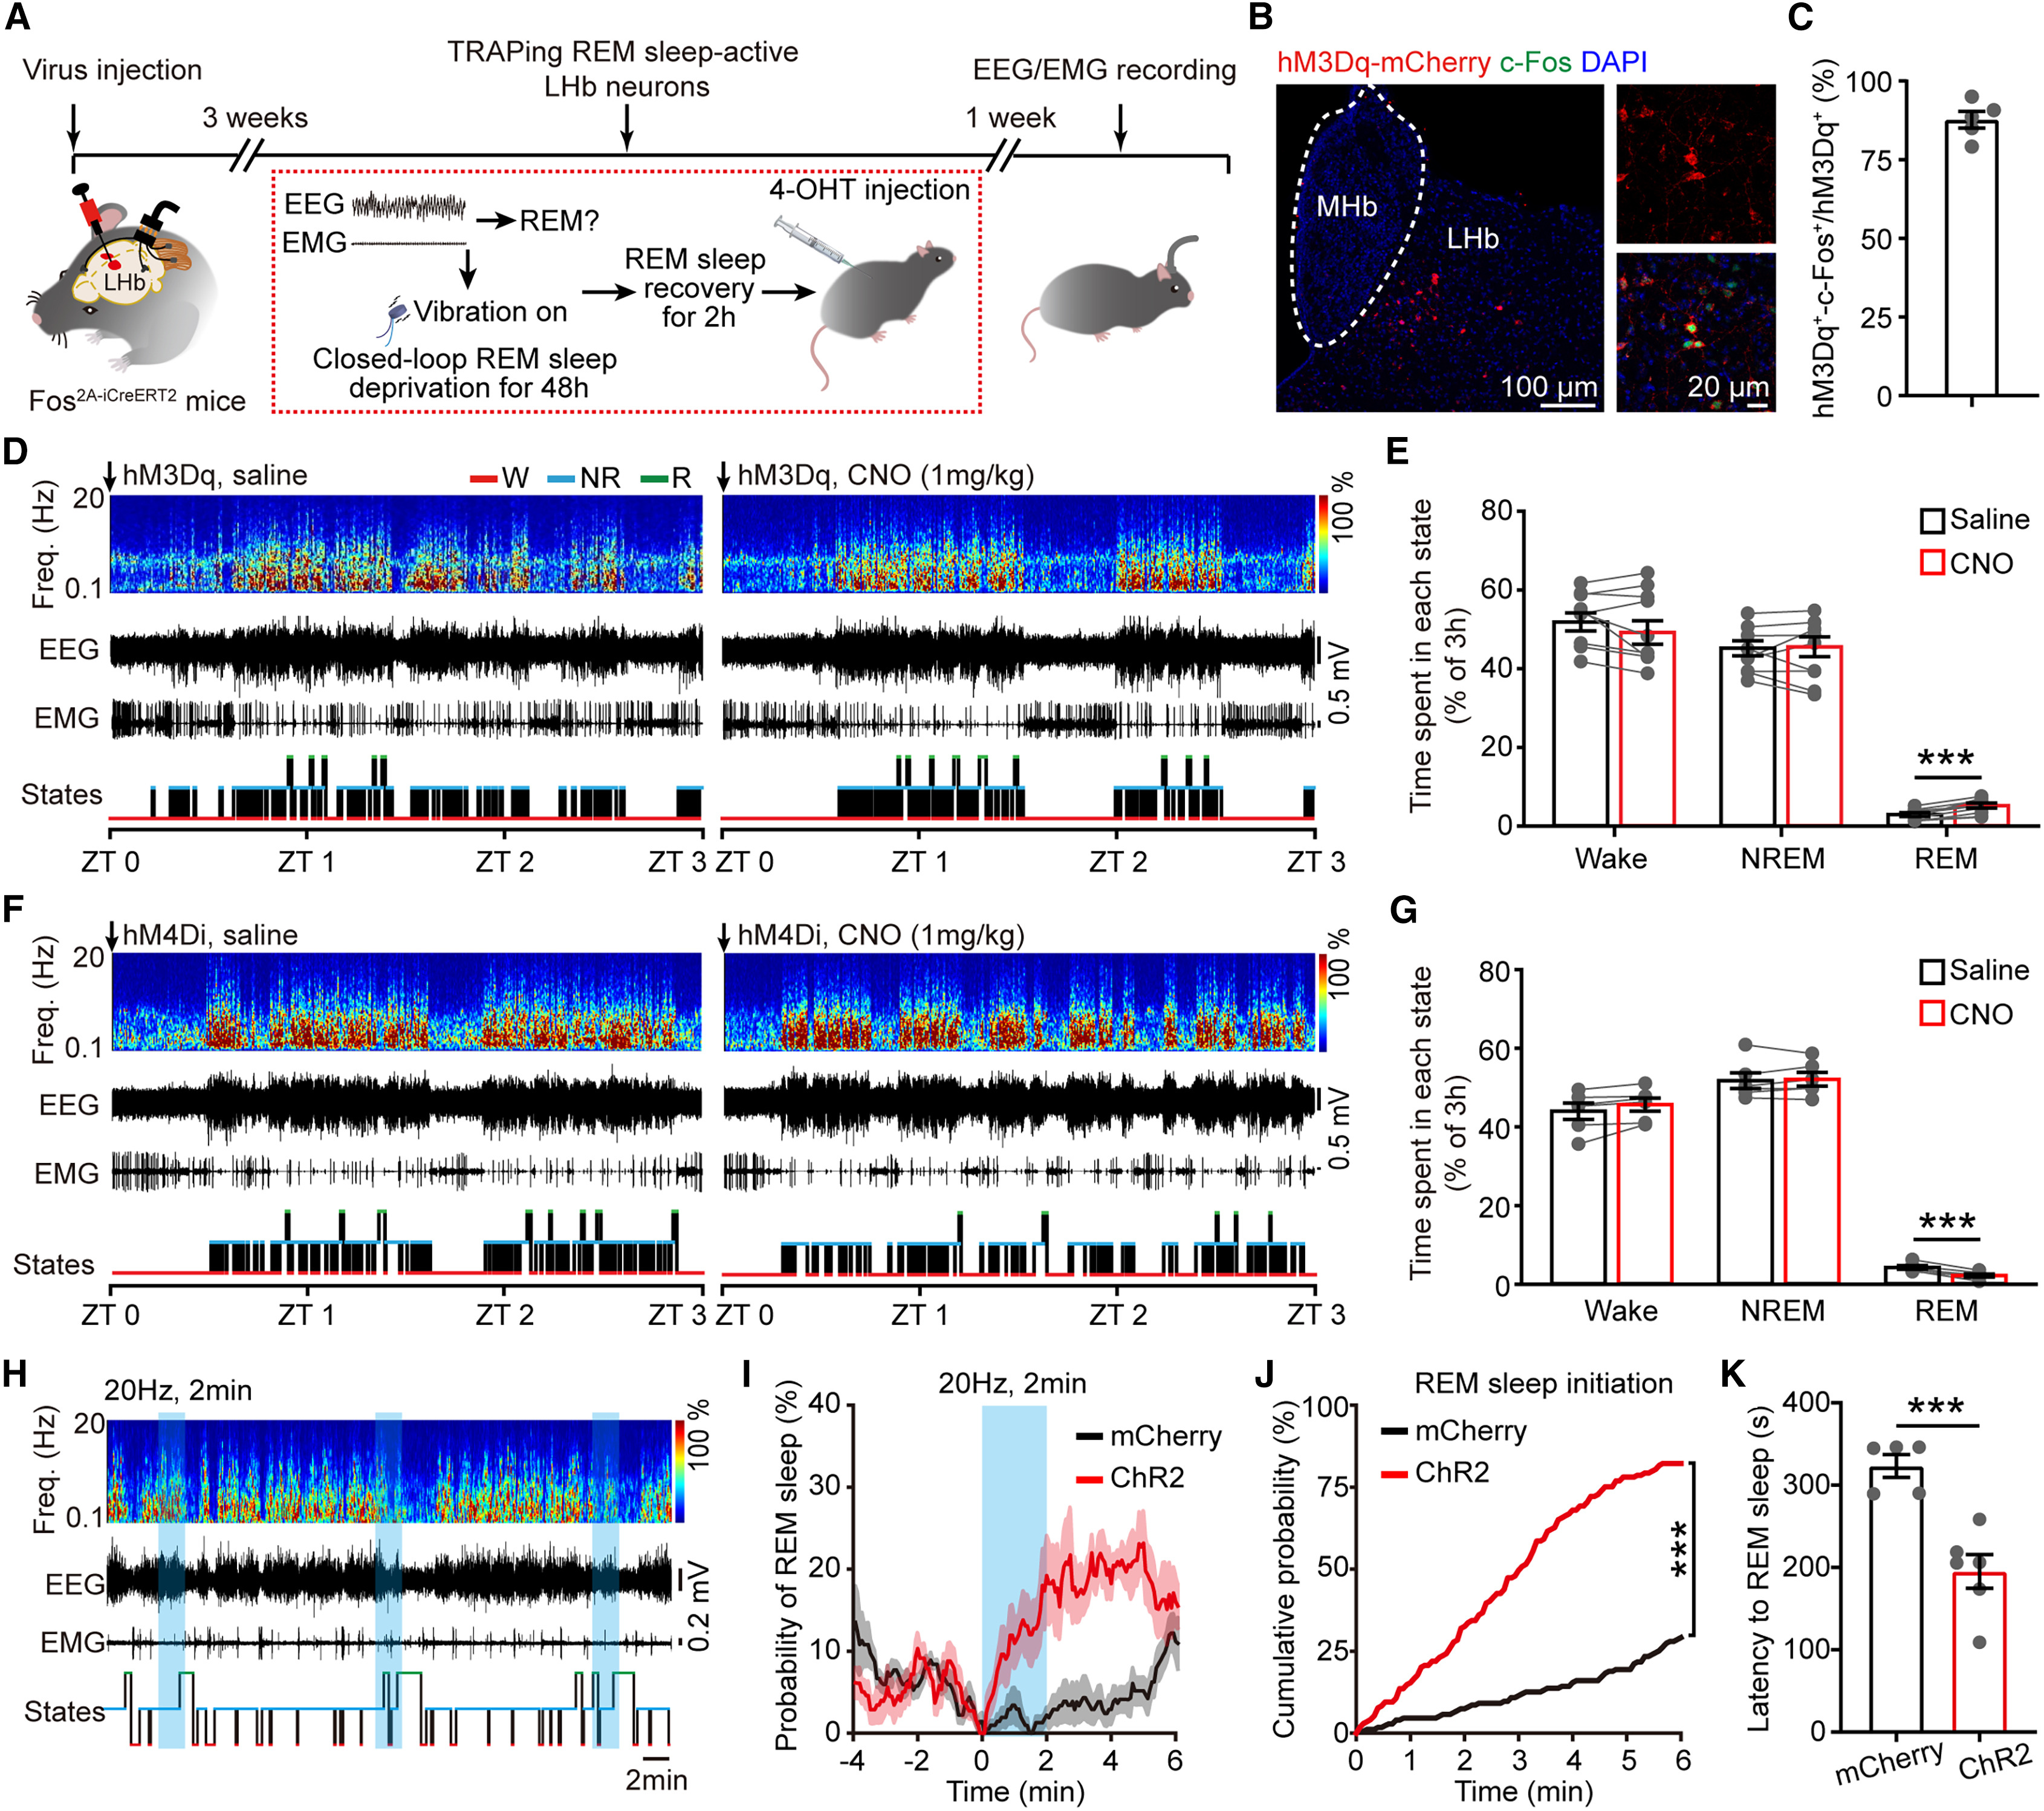
为特异性操控REM睡眠活跃型LHb神经元,研究团队利用实时EEG/EMG闭环监测驱动的振动装置对小鼠实施48小时选择性REM睡眠剥夺(RSD),使其在随后2小时恢复期内产生强烈的REM睡眠反弹(REM睡眠占比大幅升高),并在Fos2A-iCreERT2(TRAP2)小鼠反弹期腹腔注射4-OHT(50 mg/kg)以遗传捕获这群REM活跃神经元。原位杂交验证显示,被TRAP标记的mCherry阳性神经元约88%与二次REM反弹诱发的c-Fos共定位,且几乎全部为Vglut2阳性谷氨酸能神经元。
在TRAP2小鼠双侧LHb分别表达AAV-EF1α-DIO-hM3Dq-mCherry或AAV-EF1α-DIO-hM4Di-mCherry后,CNO激活被捕获的REM活跃型LHb神经元仅特异性增加REM睡眠时长与发作次数,而不影响NREM睡眠或觉醒时长;反之,CNO抑制该亚群则选择性减少REM睡眠。进一步表达AAV-EF1α-DIO-ChR2-mCherry并在NREM睡眠进入稳定期后给予20 Hz蓝光刺激,可显著缩短进入REM睡眠的潜伏期并提高REM转换概率。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
LHb–RMTg通路调控NREM睡眠而LHb–VTA通路选择性调控REM睡眠
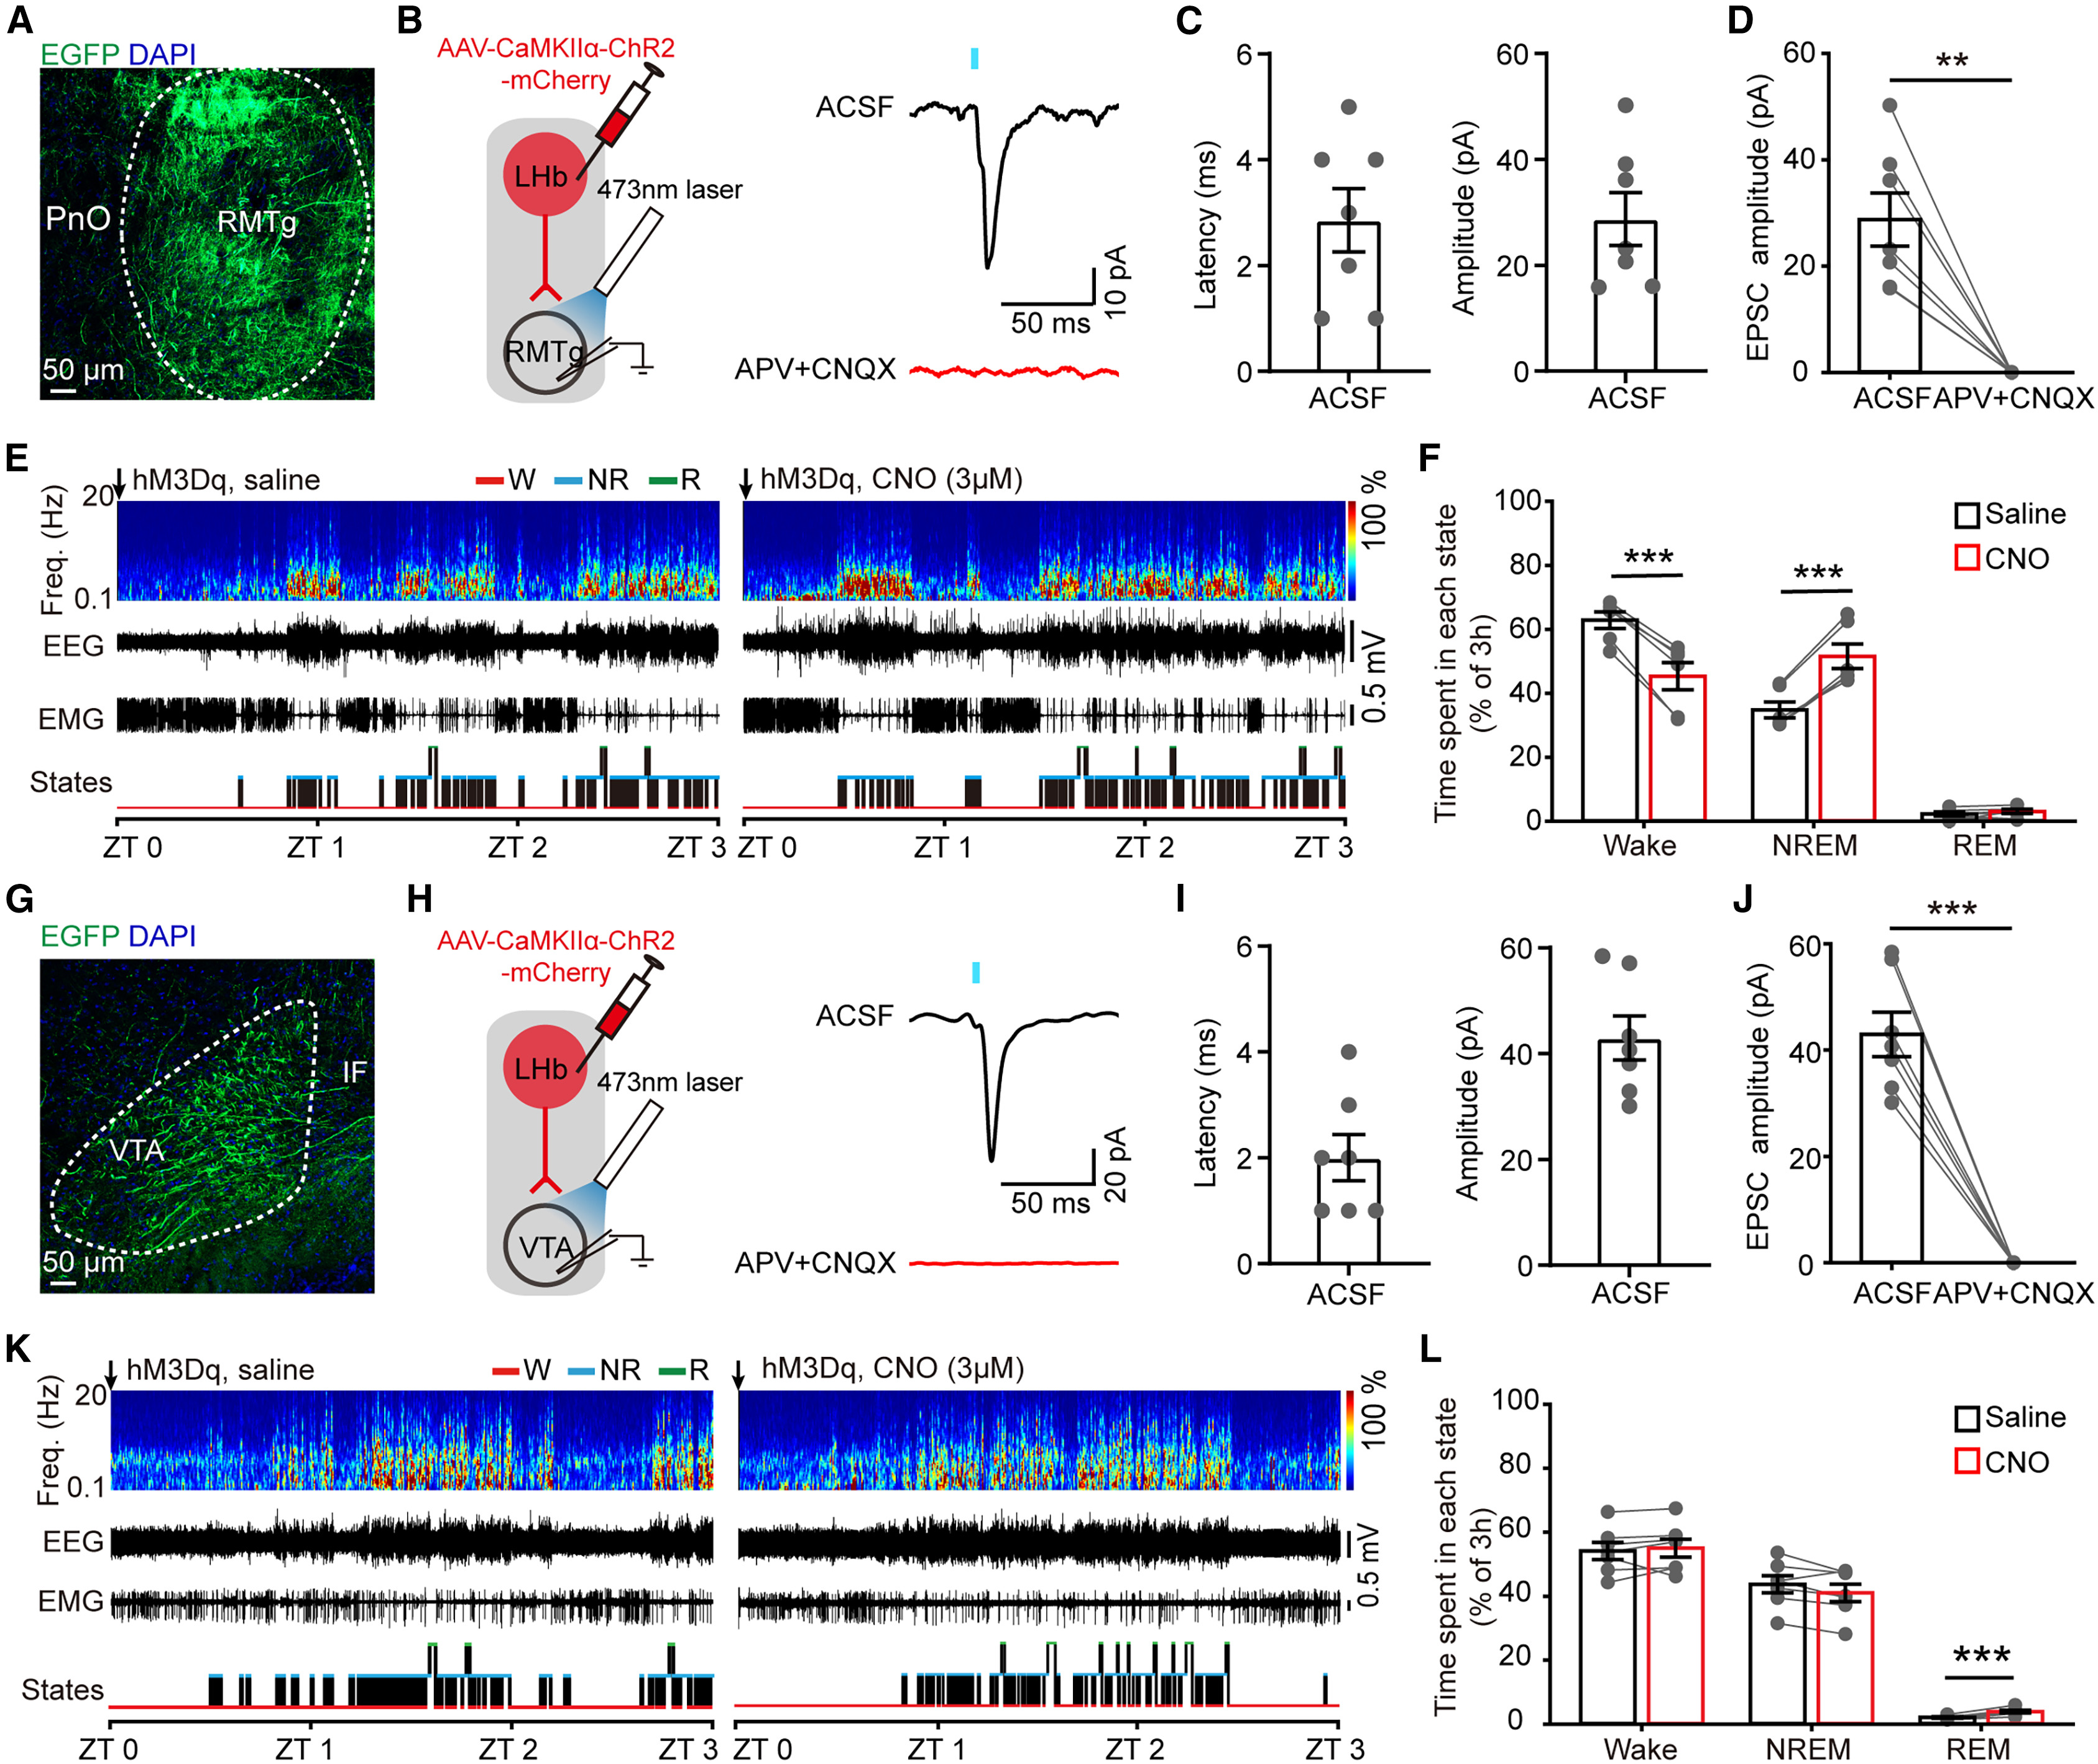
RMTg与VTA是LHb最重要的两个下游脑干靶区。离体脑片全细胞记录显示,光刺激表达ChR2的LHb投射终末可在RMTg和VTA神经元中均诱发被APV+CNQX完全阻断的兴奋性突触后电流(EPSCs)。当在全LHb神经元表达hM3Dq并通过RMTg植入套管局部微量注射CNO(3 μM)激活LHb–RMTg投射终末时,小鼠表现为NREM睡眠显著增加、觉醒减少,但REM睡眠时长完全不受影响。
追踪TRAP2小鼠中被标记的REM活跃型LHb神经元轴突投影发现,这群神经元密集投射至VTA,而在RMTg中几乎观察不到其轴突终末。进一步在全LHb神经元或TRAP捕获的REM活跃型LHb神经元中表达hM3Dq,并通过VTA套管局部注射CNO激活LHb–VTA投射终末,均特异性增加REM睡眠时长和发作频率,而不改变NREM睡眠与觉醒时间,从而在环路层面解析了LHb对NREM与REM睡眠的并行差异化调控。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
慢性束缚应激增强REM活跃型LHb神经元兴奋性与簇状放电并诱导REM睡眠过多
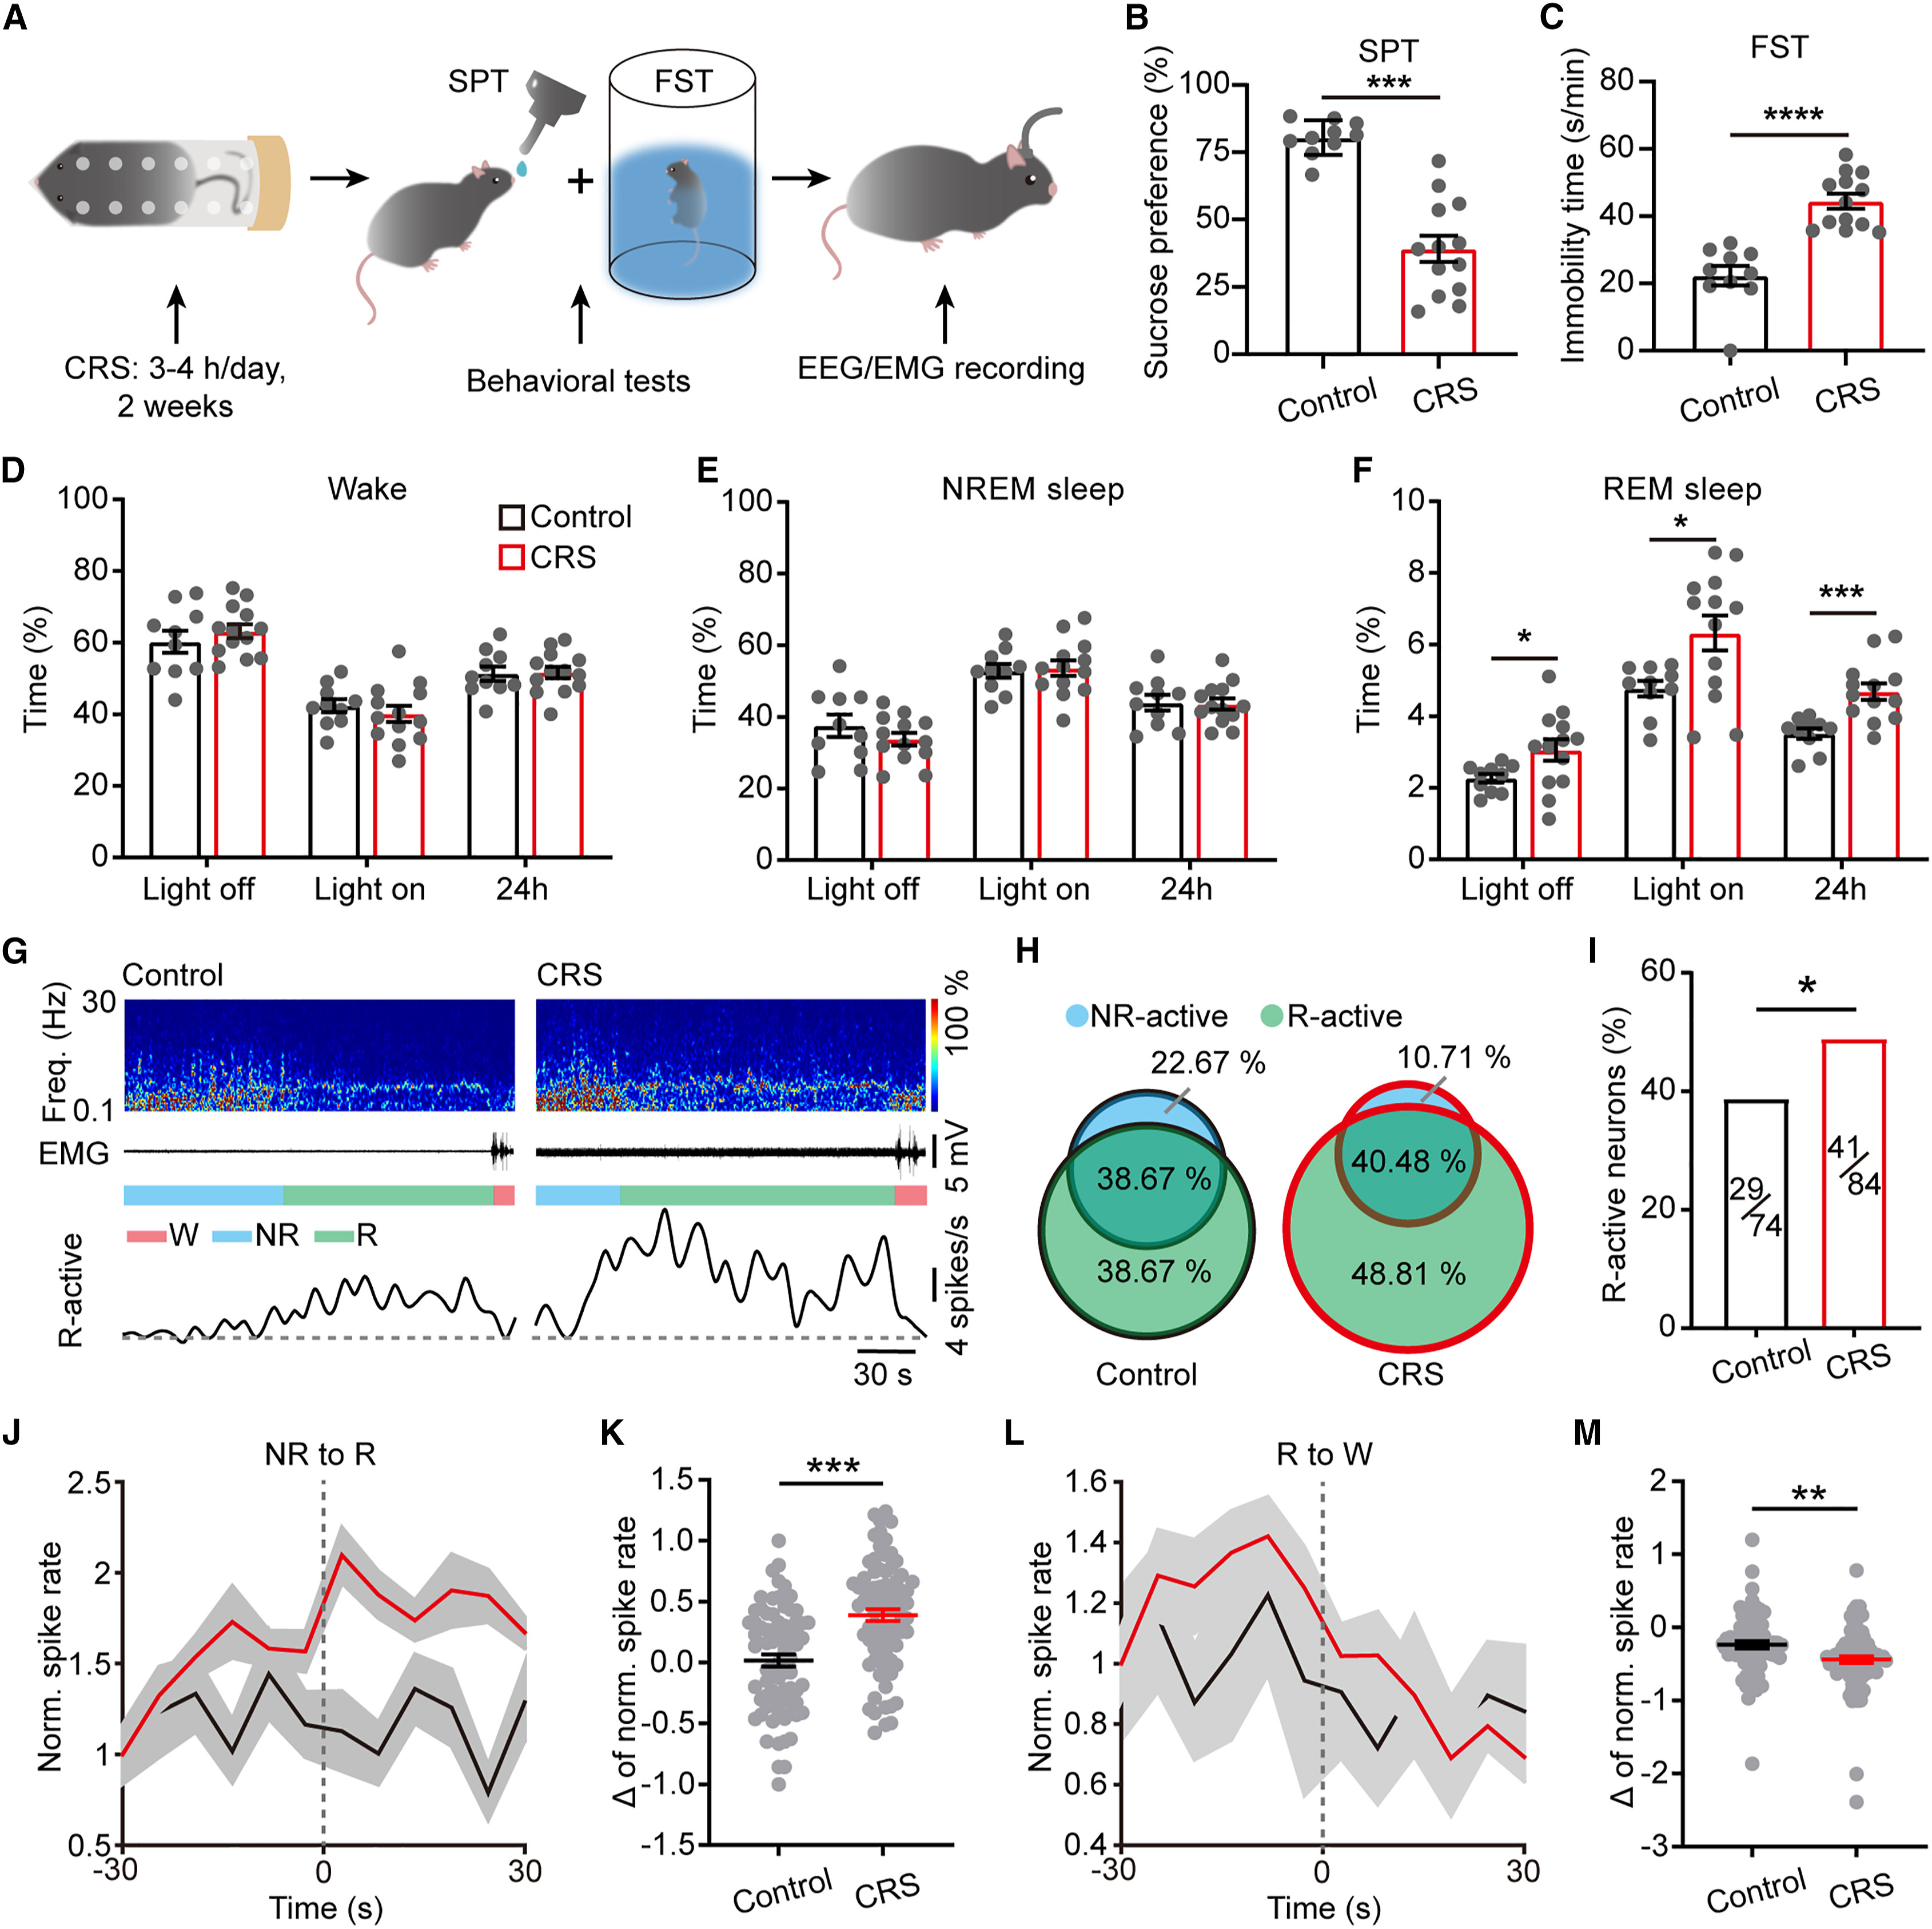
为探究LHb是否介导慢性应激诱发的REM睡眠异常,研究者对小鼠实施连续14天、每天2–3小时的慢性束缚应激(CRS)。CRS小鼠不仅在糖水偏好实验(SPT)中糖水偏好率显著下降、强迫游泳实验(FST)中不动时间显著延长,其24小时EEG/EMG记录还显示REM睡眠总时长、发作次数及REM期θ频段(6–10 Hz)功率均显著升高。
对比14只对照鼠(95个单元)与16只CRS小鼠(107个单元)的在体tetrode记录发现,CRS使LHb中R-active神经元的比例显著扩张,且R-active与NR+R-active神经元在REM睡眠期的平均放电率及NREM→REM转换期的放电增量均大幅升高。对TRAP捕获的REM活跃型LHb神经元进行离体膜片钳记录进一步显示,CRS使该群神经元静息膜电位显著超极化,去极化电流诱发的放电频率显著升高,且自发处于簇状放电(burst firing)模式的神经元比例由对照组的10%飙升至CRS组的46%左右。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
抑制REM活跃型LHb神经元及其VTA投射可逆转慢性应激诱发的REM睡眠过多
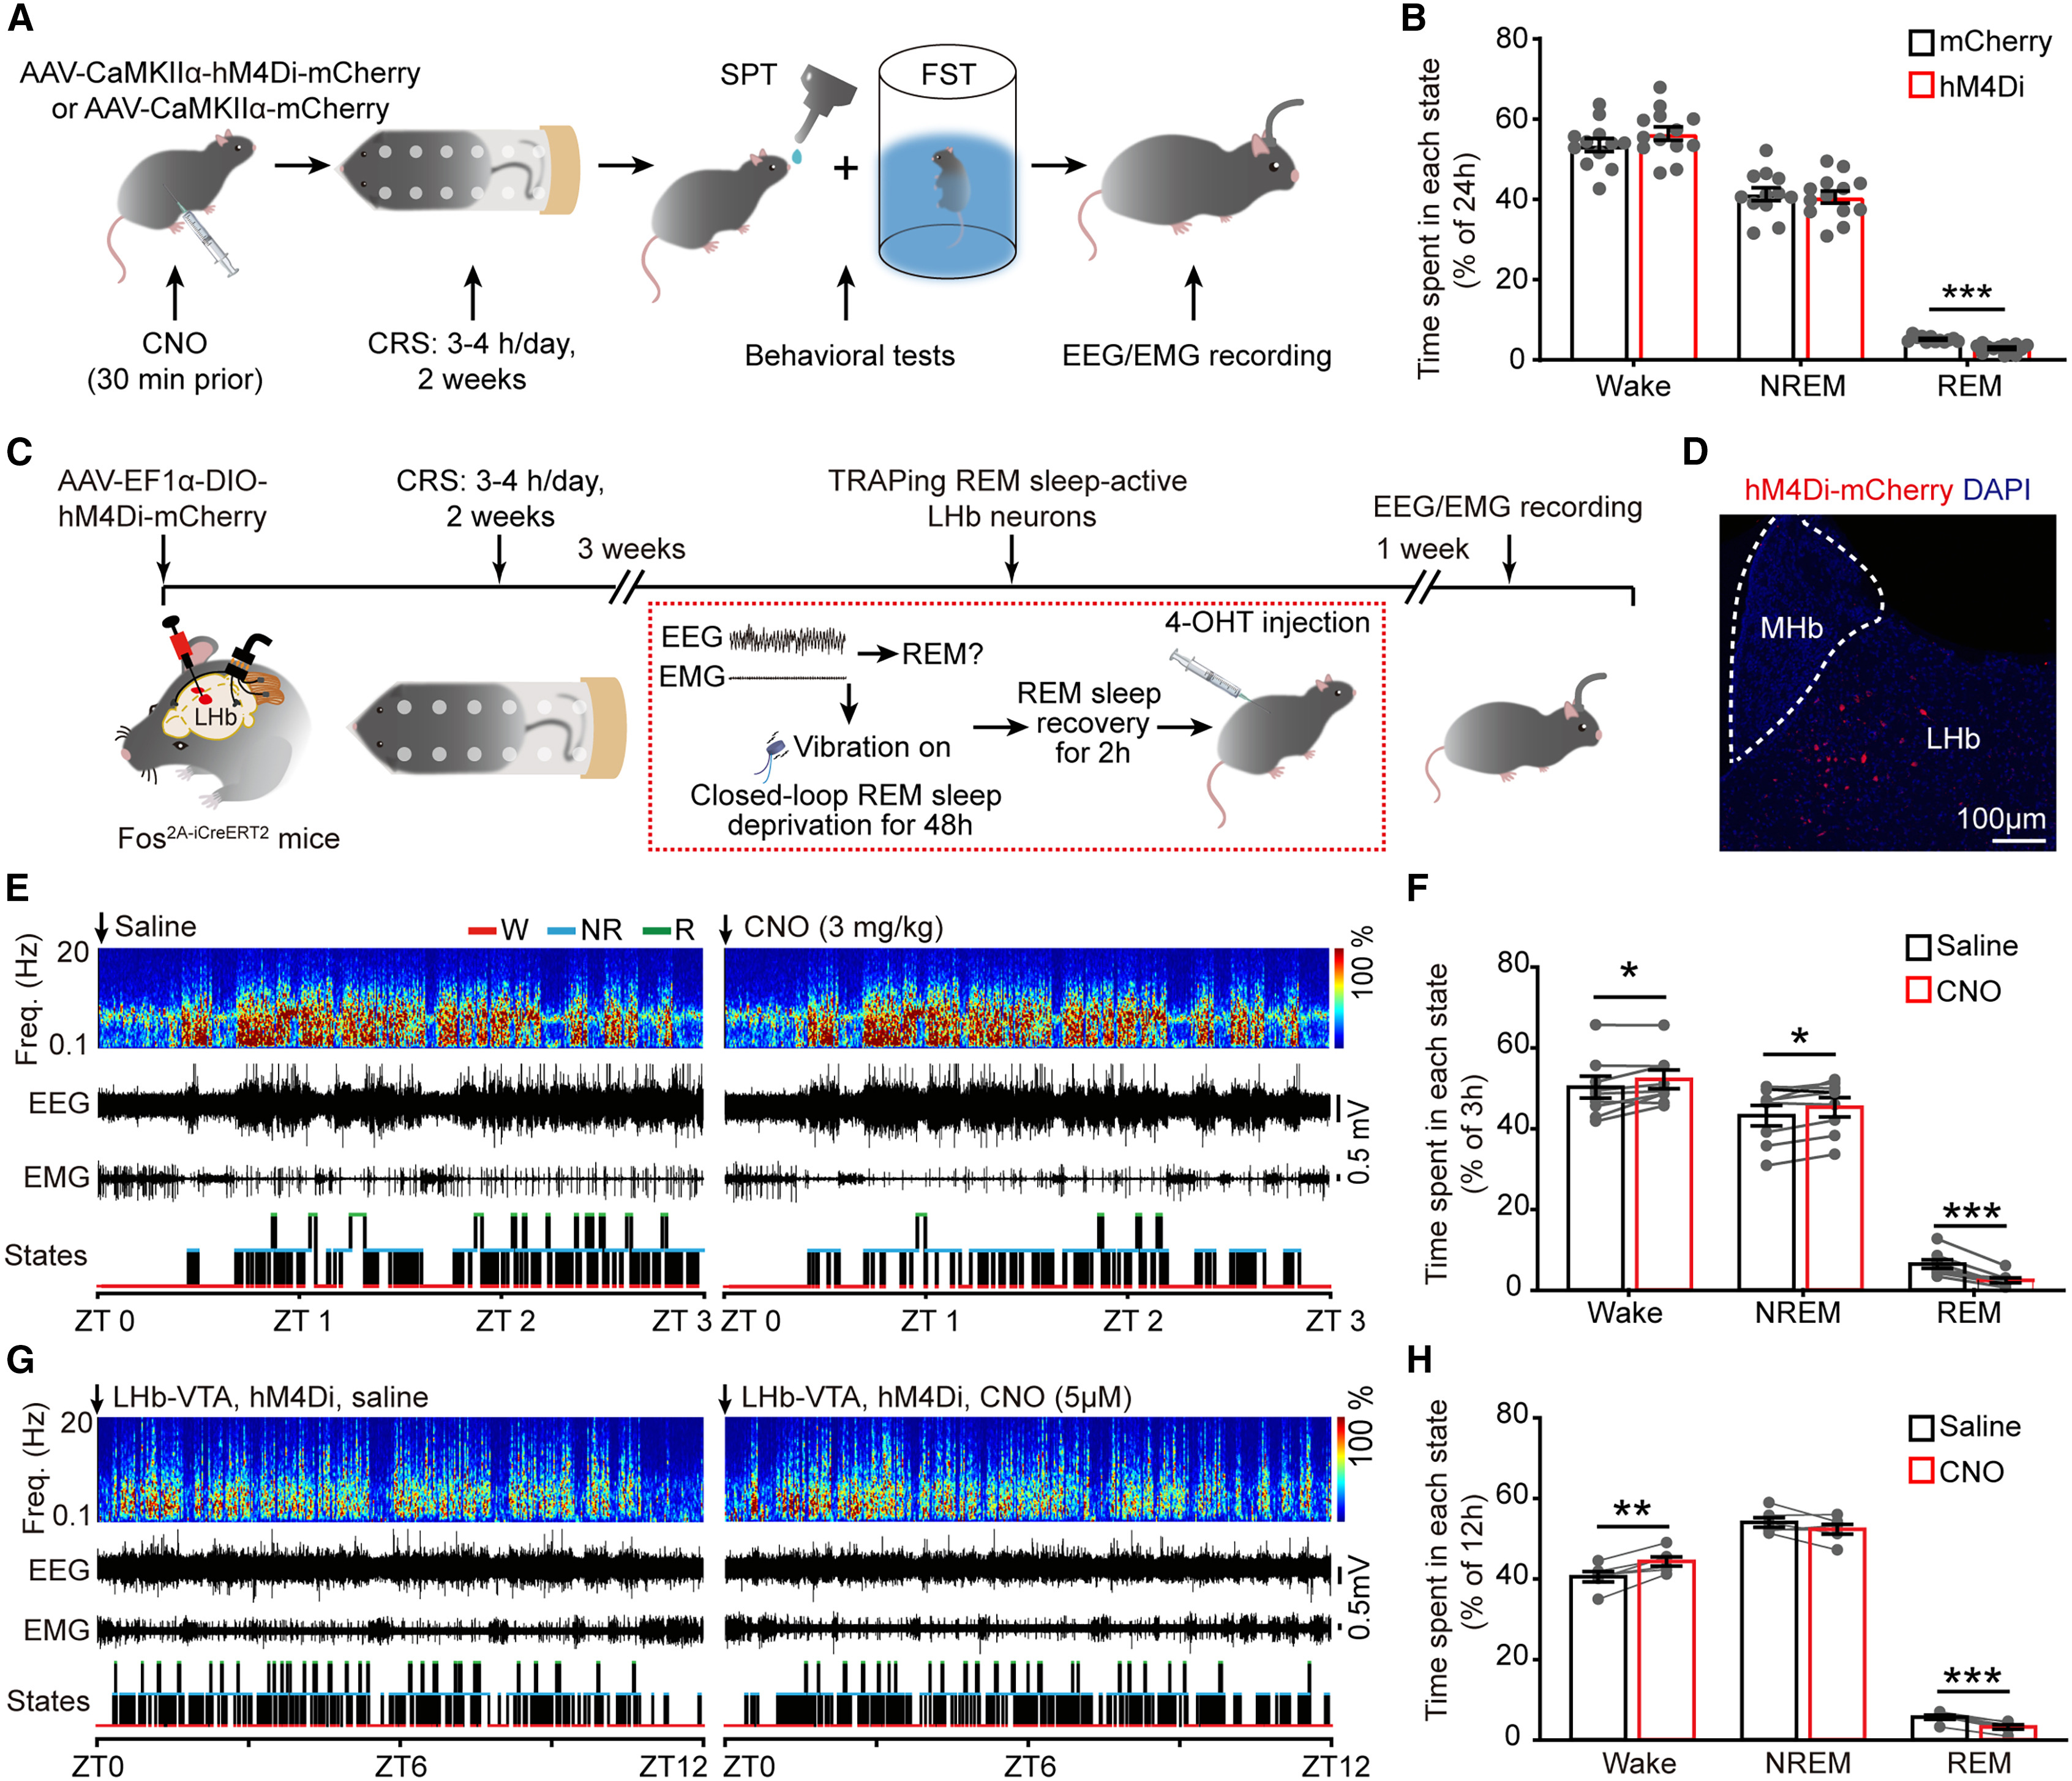
研究团队接着检验抑制LHb环路能否预防或逆转CRS导致的REM睡眠紊乱。首先,在14天CRS造模期间每天束缚前30分钟腹腔注射CNO(3 mg/kg)以慢性抑制表达hM4Di的LHb神经元,可有效阻止CRS后REM睡眠过多表型的出现。
其次,在已完成14天CRS造模的TRAP2小鼠中,利用AAV-EF1α-DIO-hM4Di-mCherry特异性抑制被捕获的REM活跃型LHb神经元,或通过双侧VTA套管微量注射CNO(5 μM)特异性抑制LHb–VTA投射终末,均能选择性地将CRS小鼠异常升高的REM睡眠时长压回基线水平,而不影响NREM睡眠与觉醒时长,证明REM活跃型LHb–VTA通路的过度激活是维持应激后REM睡眠过多的必要环路基础。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗
REM活跃型LHb神经元双向调控慢性应激诱发的抑郁样行为
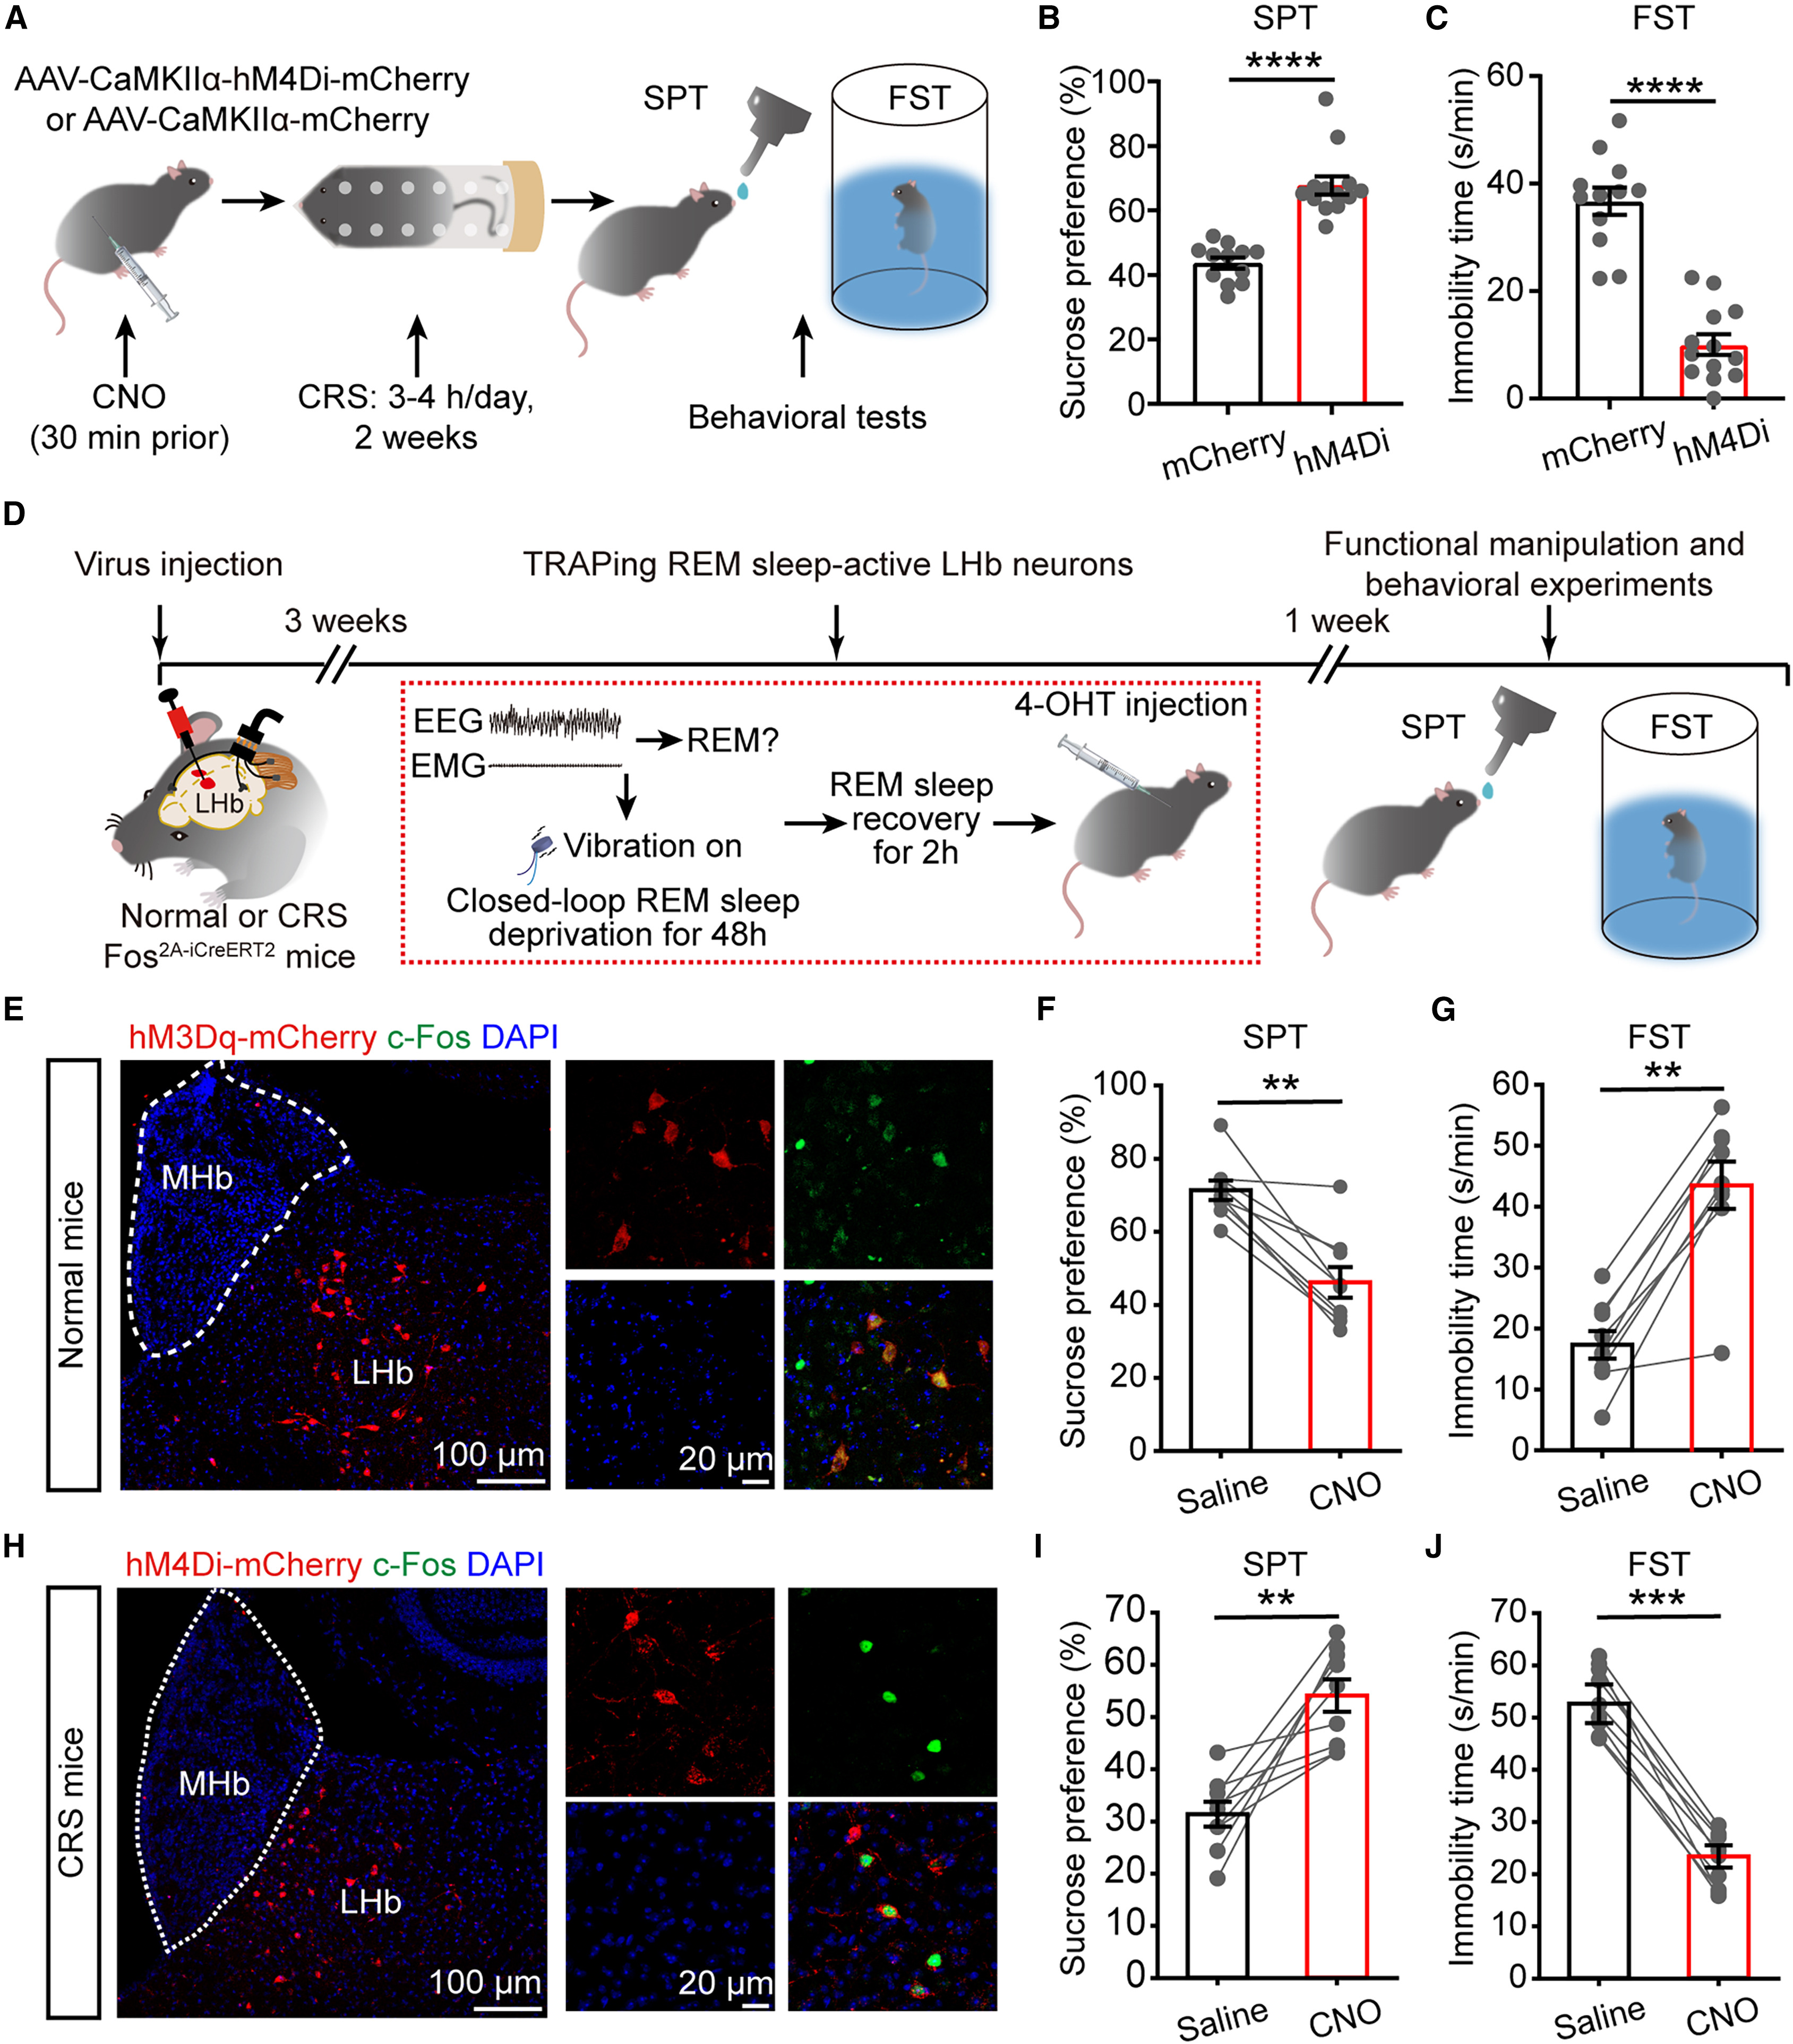
最后,研究团队评估了调控这群REM活跃型LHb神经元对抑郁样行为的直接影响。实验显示,在14天CRS期间每天慢性化学遗传抑制LHb神经元,不仅防止了REM睡眠紊乱,还显著改善了CRS小鼠在糖水偏好实验(SPT)中的快感缺失以及强迫游泳实验(FST)中的绝望不动时间。
更为关键的是,在未经历应激的正常TRAP2小鼠中,直接化学遗传学激活被捕获的REM活跃型LHb神经元(DIO-hM3Dq + CNO)即足以诱发显著的糖水偏好率下降和强迫游泳不动时间延长;而在经历CRS的TRAP2小鼠中,急性化学遗传学抑制这群REM活跃型LHb神经元(DIO-hM4Di + CNO)则能显著恢复糖水偏好并缩短强迫游泳不动时间,证明这群特异编码REM睡眠的LHb神经元是连接REM睡眠障碍与抑郁样行为的共同神经环路节点。
来源: et al. · Current Biology · Original figure reproduced for academic literature review under fair scholarly commentary; copyright remains with the authors/publisher.
查看原图与英文图注 ↗