长期压力为何带来痛敏?杏仁核通向脑干的三级回路线索
小鼠研究将慢性束缚应激、中央杏仁核抑制性输入与蓝斑—导水管周围灰质通路联系起来,追踪应激相关痛敏的回路机制。
长期处于心理或生理压力(慢性应激)下的个体,除了容易出现抑郁、焦虑等心境障碍外,临床上还常伴发躯体疼痛阈值下降与原因不明的慢性疼痛敏化。然而,慢性应激究竟如何重塑脑内疼痛调制环路?应激诱发的疼痛与抑郁样行为是否共享相同的神经环路机制?近日,安徽医科大学药学院孟浅团队、中国科学技术大学生命科学学院与医学中心张智教授团队及军事科学院国防科技创新研究院宋子华团队(共同第一作者为魏晶、刘安、曹宇)在《Cell Reports》发表题为“A central amygdala-locus coeruleus pathway mediating pain under chronic stress”的研究论文。研究团队结合病毒跨单突触追踪、离体脑片全细胞膜片钳、在体光纤钙成像以及化学遗传学和光遗传学双向调控技术,发现慢性束缚应激(CRS)通过过度激活中央杏仁核GABA能神经元(GABACeA),直接单突触抑制蓝斑去甲肾上腺素能神经元(NELC),进而削弱后者对外侧导水管周围灰质谷氨酸能神经元(GluLPAG)的去甲肾上腺素能兴奋性驱动,从而在不影响抑郁样行为的前提下,特异性介导慢性应激下的痛觉超敏与疼痛厌恶。
慢性束缚应激导致中央杏仁核GABA能神经元(GABACeA)过度兴奋,通过单突触抑制蓝斑去甲肾上腺素能神经元(NELC)并降低下游外侧导水管周围灰质谷氨酸能神经元(GluLPAG)活性,特异性驱动慢性应激诱发的痛觉敏化与疼痛厌恶,且该环路独立于抑郁样行为及急性炎症痛。
阅读目录 · 5个部分
慢性应激抑制蓝斑去甲肾上腺素能神经元,特异性驱动疼痛敏化
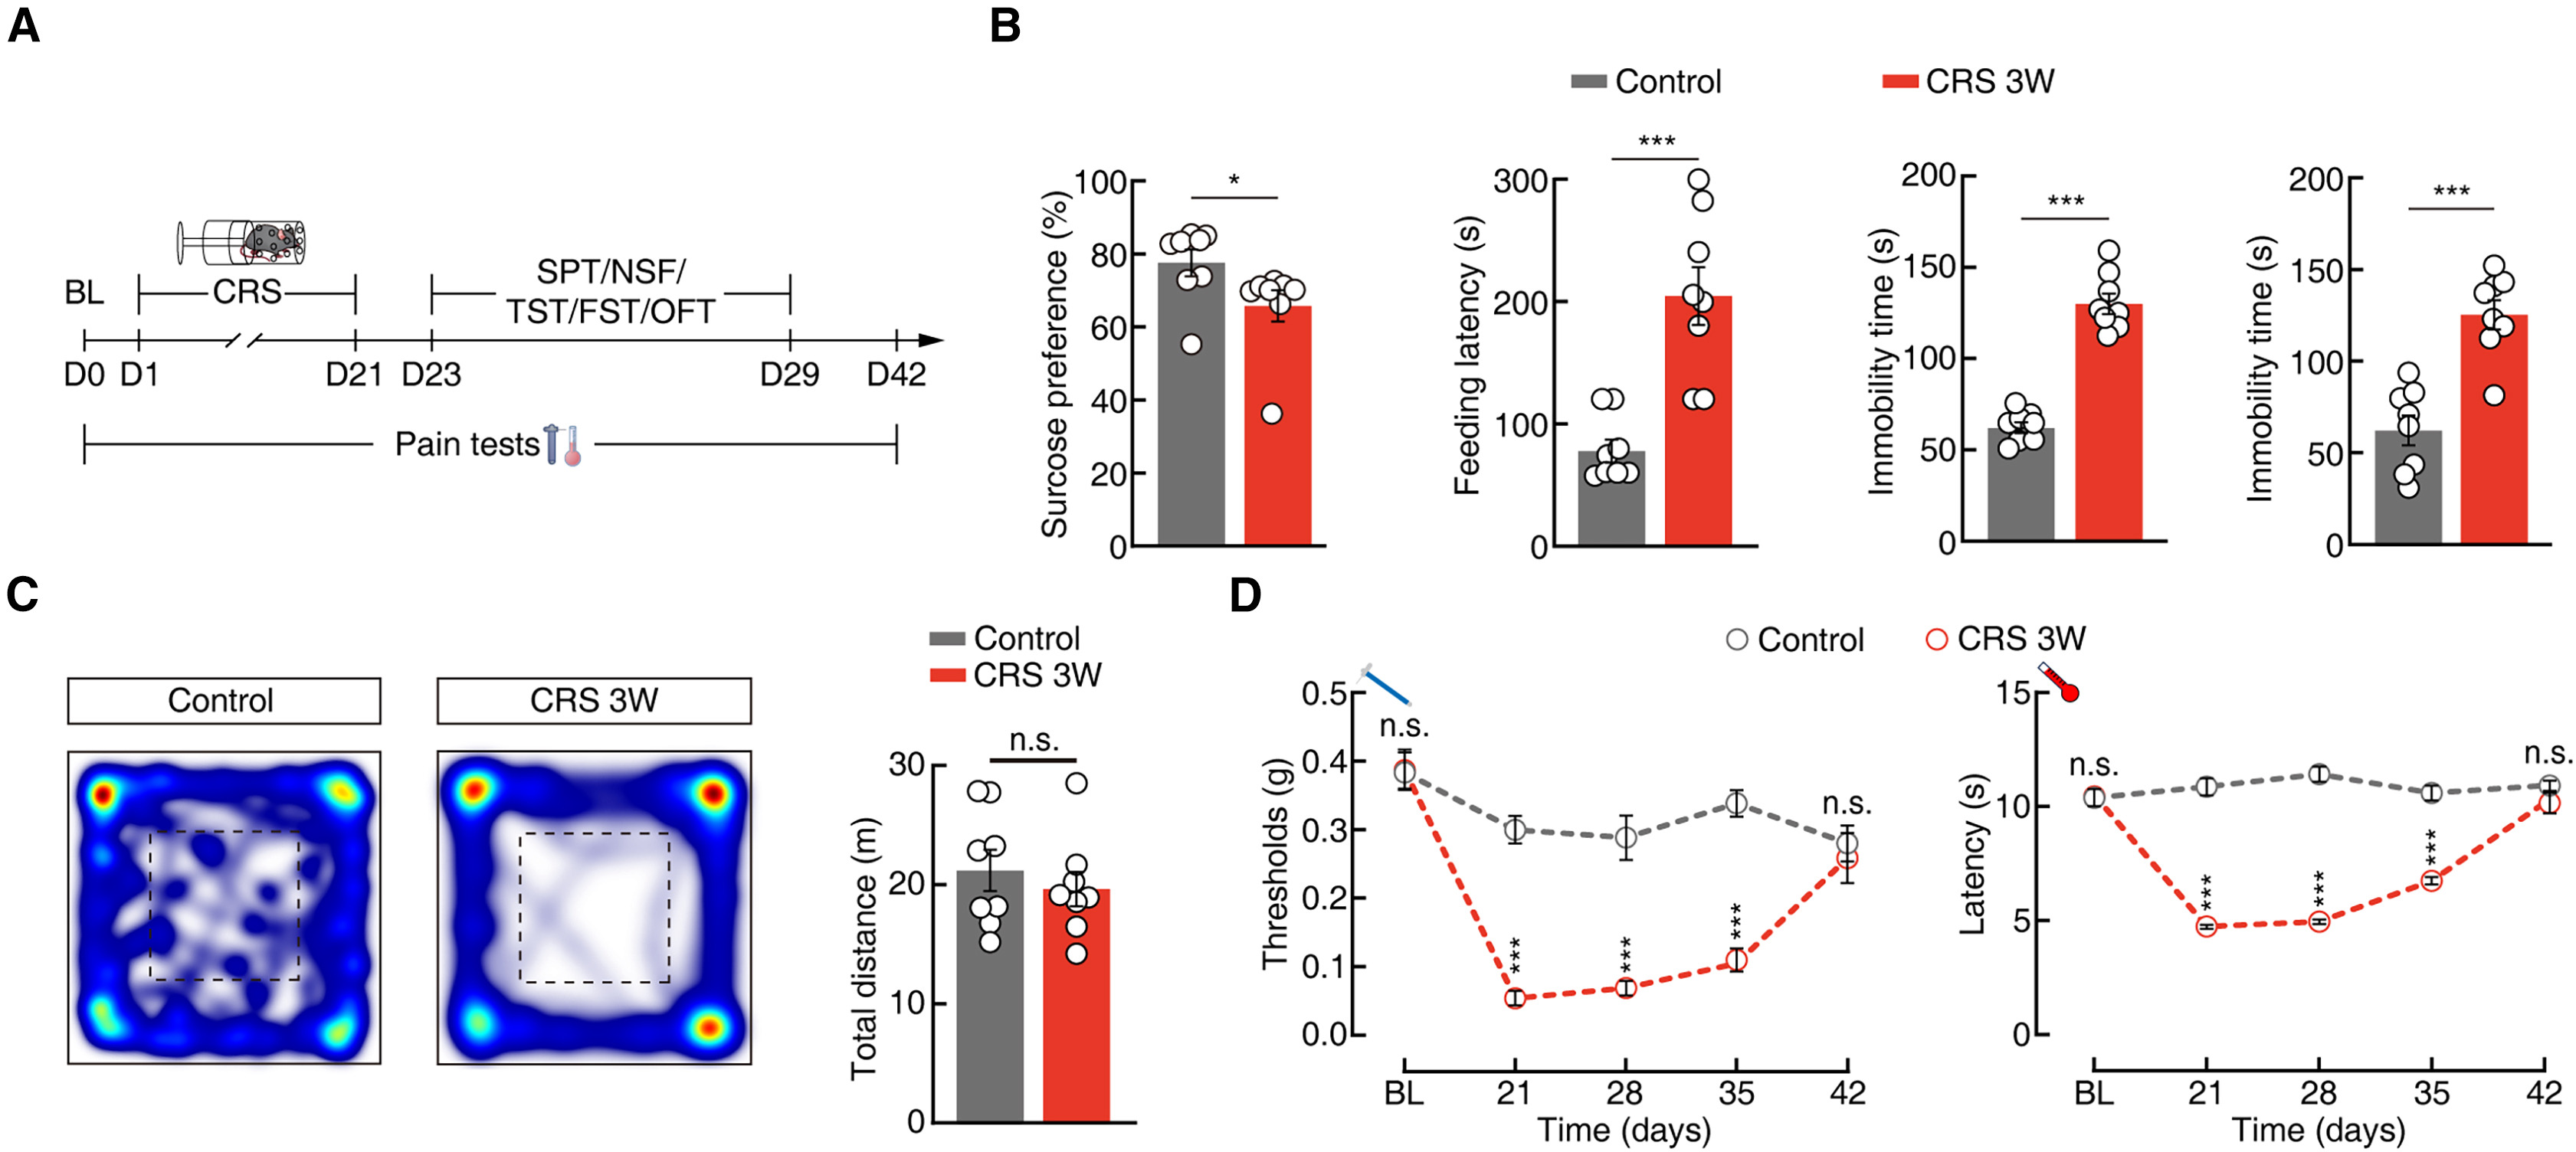
研究团队首先在成年雄性和雌性C57BL/6J小鼠中建立了连续21天、每天6小时的慢性束缚应激模型(CRS 3W,图1A)。行为学评估显示,CRS 3W小鼠在不改变旷场(OFT)自发运动能力的前提下,表现出典型的抑郁样行为——糖水偏好率(SPT)显著下降,新奇抑制摄食潜伏期(NSF)及悬尾(TST)、强迫游泳(FST)不动时间均显著延长(图1B–C);与此同时,小鼠从造模第2周起出现显著且持久的后爪机械缩足阈值降低(von Frey测试)与热缩足潜伏期缩短(Hargreaves测试)(图1D)。离体脑片全细胞膜片钳记录进一步发现,CRS 3W小鼠蓝斑(LC)中酪氨酸羟化酶(TH)/多巴胺β-羟化酶(DBH)阳性的去甲肾上腺素能神经元(NELC)诱发放电频率较对照组显著降低,表现为去甲肾上腺素能神经元功能低落。
蓝斑NELC神经元的活性下降是否直接导致了慢性应激下的痛觉超敏?研究团队在C57BL/6J小鼠双侧LC注射受DBH启动子驱动的化学遗传学病毒(AAV-DBH-hM3Dq-EYFP或AAV-DBH-hM4Di-EYFP)。腹腔注射CNO(5 mg/kg)特异性激活CRS 3W小鼠的NELC神经元,不仅显著逆转了机械痛与热痛超敏,还在条件性位置偏爱(CPP)实验中诱导小鼠对CNO配对箱产生明显偏好,表明其有效缓解了持续性疼痛伴随的负性厌恶情绪;相反,在正常对照小鼠中化学遗传学抑制NELC神经元,则直接诱导出机械/热痛敏化及条件性位置厌恶。值得注意的是,无论激活还是抑制NELC神经元,均未改变小鼠在NSF、TST和FST中的抑郁样行为表型,提示NELC神经元特异性调控慢性应激下的感觉疼痛与痛厌恶维度。
来源:Jing Wei et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
病毒追踪与电生理鉴定GABACeA→NELC直接单突触抑制性通路
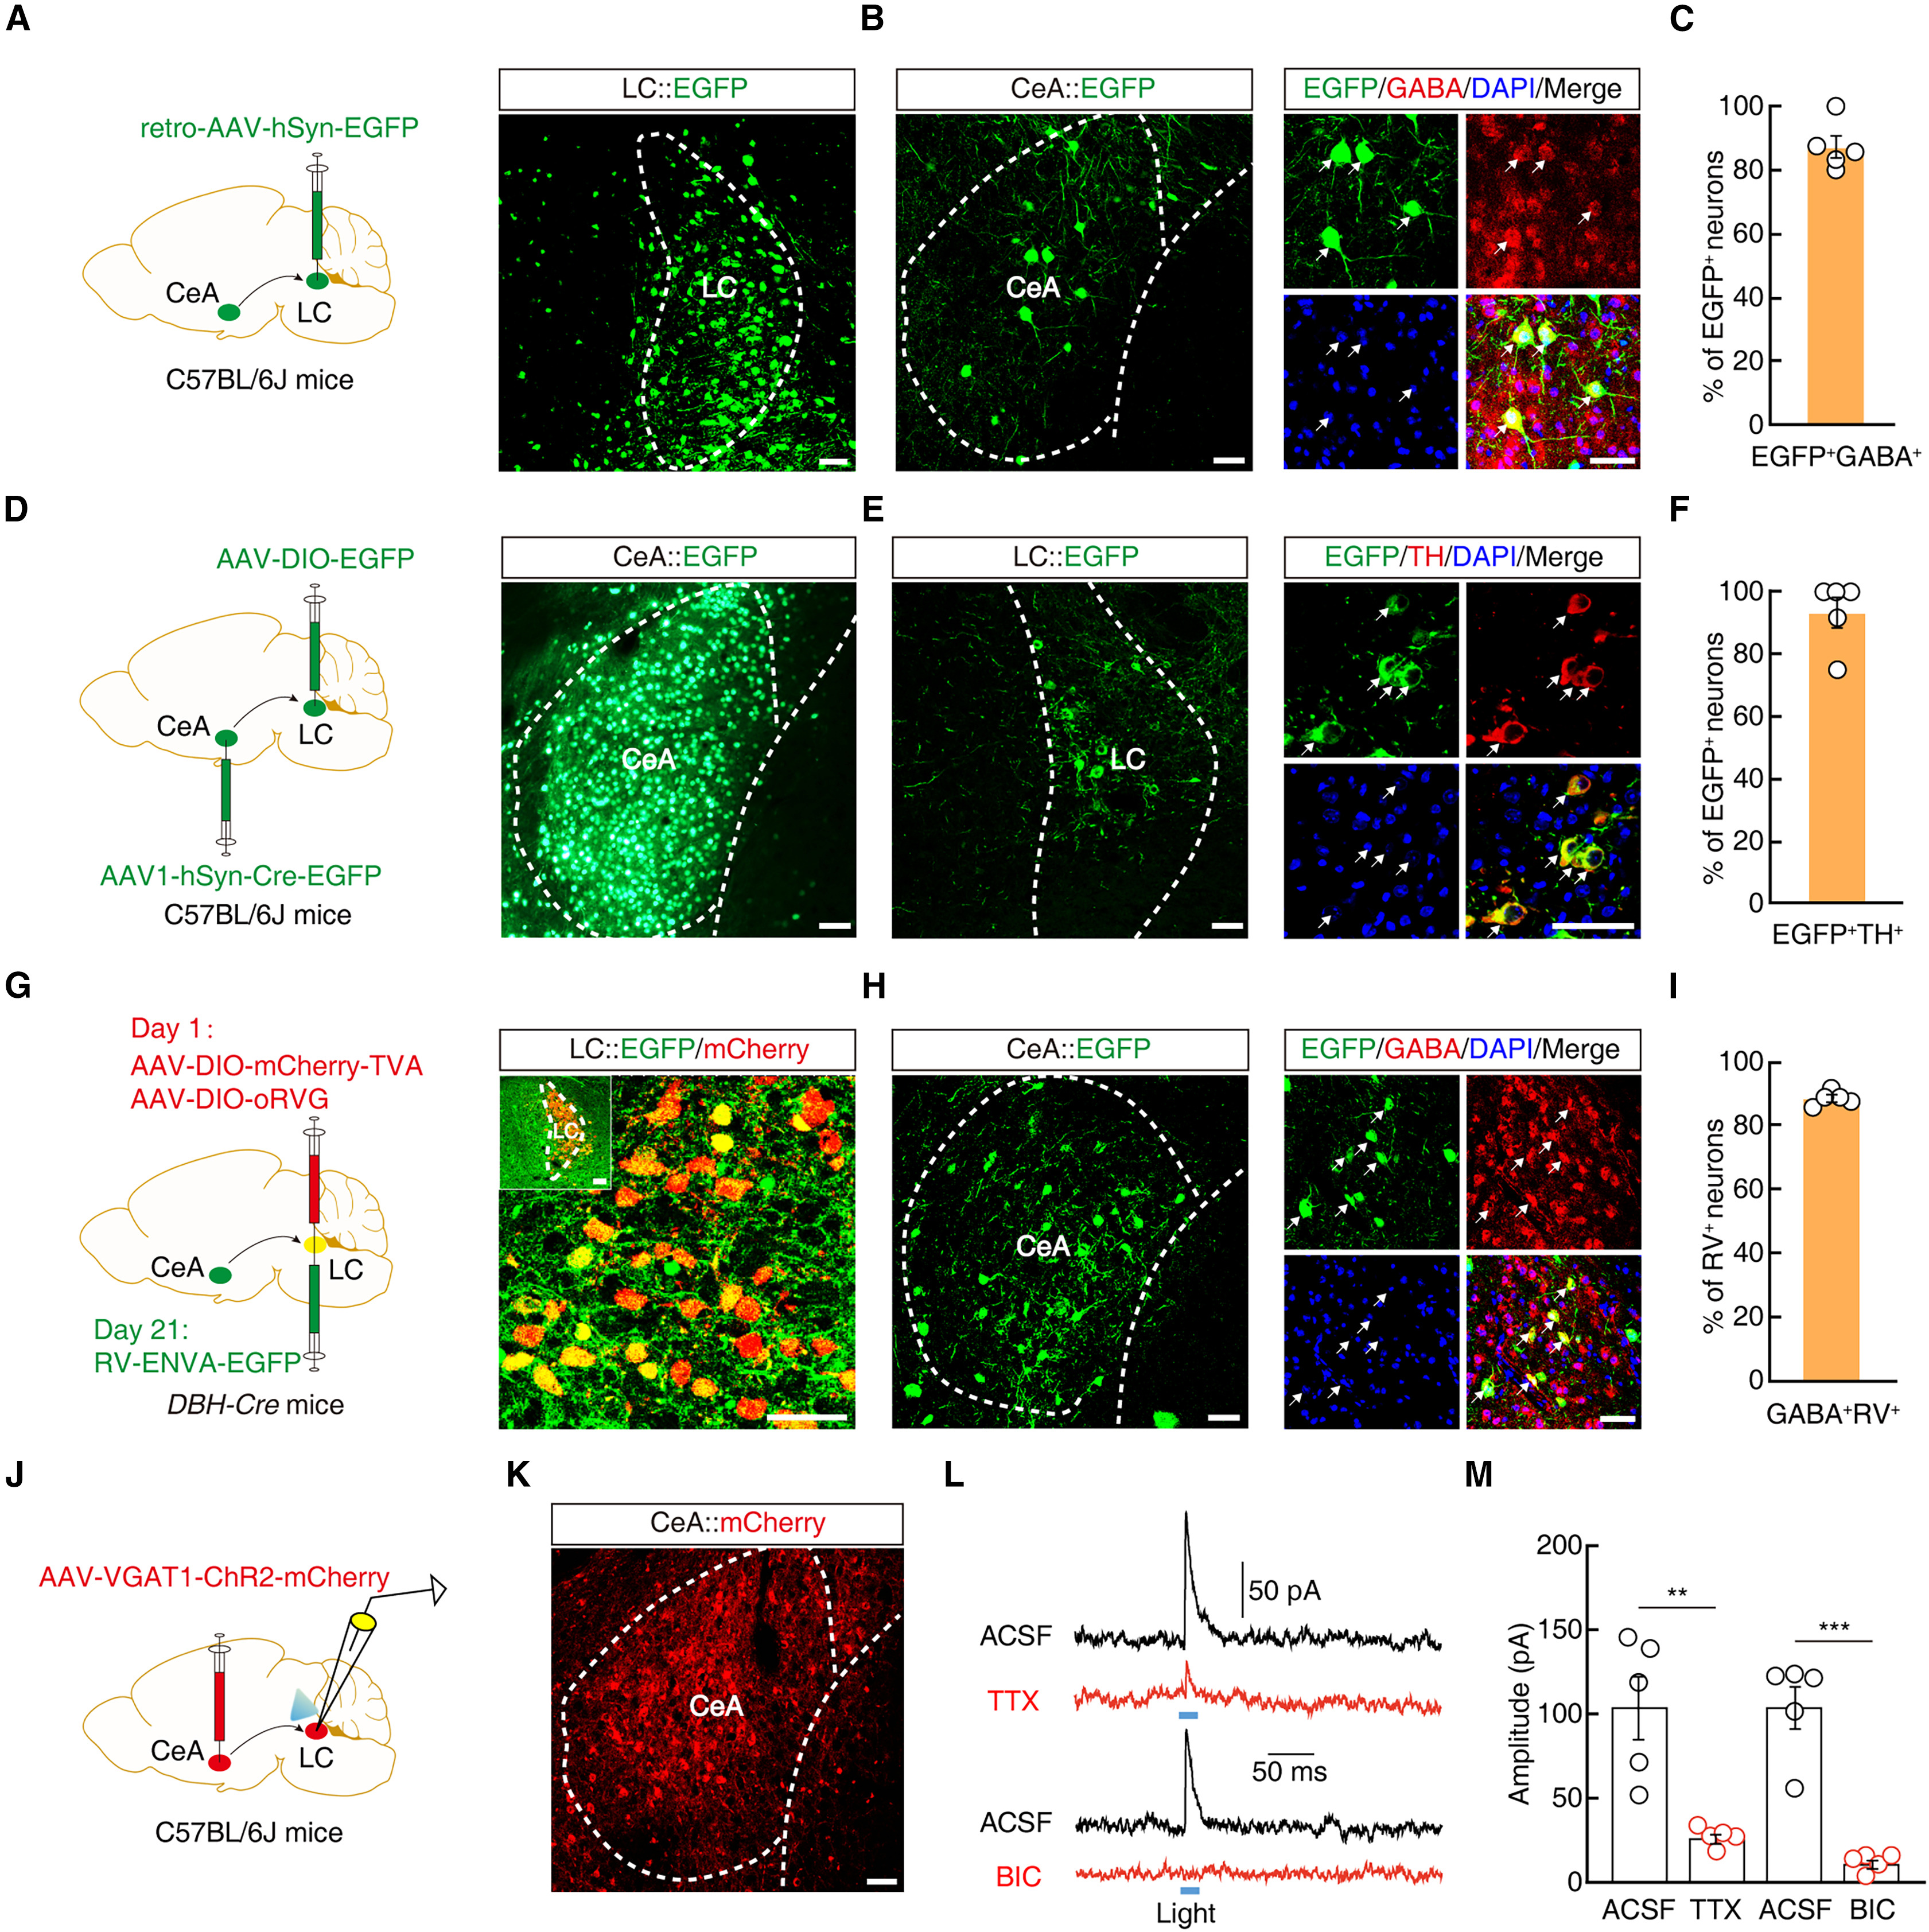
究竟是哪个上游脑区在慢性应激下抑制了NELC神经元?研究团队综合运用三种病毒示踪策略进行了全脑输入解析(图2A–I):首先,向LC注射逆行示踪病毒retro-AAV-hSyn-EGFP,在中央杏仁核(CeA)观察到大量逆行标记的EGFP+神经元,免疫荧光染色证实其中约90%与GABA共标(图2A–C);其次,在CeA注射顺行跨单突触病毒AAV1-hSyn-Cre-EGFP并在同侧LC注射Cre依赖的AAV-DIO-EGFP,结果显示LC内约90%的顺行跨突触标记神经元为TH+去甲肾上腺素能神经元(图2D–F);第三,在DBH-Cre小鼠LC中注射Cre依赖的辅助病毒(AAV-DIO-mCherry-TVA与AAV-DIO-oRVG)及改造狂犬病毒RV-ENVA-EGFP进行细胞类型特异的逆行跨单突触追踪,再次证实投射至NELC神经元的CeA上游输入神经元中近90%为GABA能神经元(图2G–I)。
为了在功能突触水平验证该通路的连接性质,研究团队向C57BL/6J小鼠的CeA注射驱动GABA能神经元表达通道视紫红质-2的病毒AAV-VGAT1-ChR2-mCherry,并在急性LC脑片中对NELC神经元进行全细胞膜片钳记录(图2J–K)。473 nm蓝光刺激LC内的CeA神经末梢,可在NELC神经元上可靠诱发大幅度的抑制性突触后电流(IPSCs);该光诱发IPSC可被河豚毒素(TTX)阻断并在钾通道阻断剂4-氨基吡啶(4-AP)共同灌流时恢复,且可被GABAA受体拮抗剂荷包牡丹碱(Bicuculline, BIC)完全消除(图2L–M)。这些解剖与电生理证据确凿证实,CeA的GABA能神经元与LC的去甲肾上腺素能神经元之间形成直接的GABAA受体介导的单突触抑制性连接(GABACeA→NELC)。
来源:Jing Wei et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
慢性应激增强GABACeA→NELC通路活性,双向调控逆转应激性痛敏
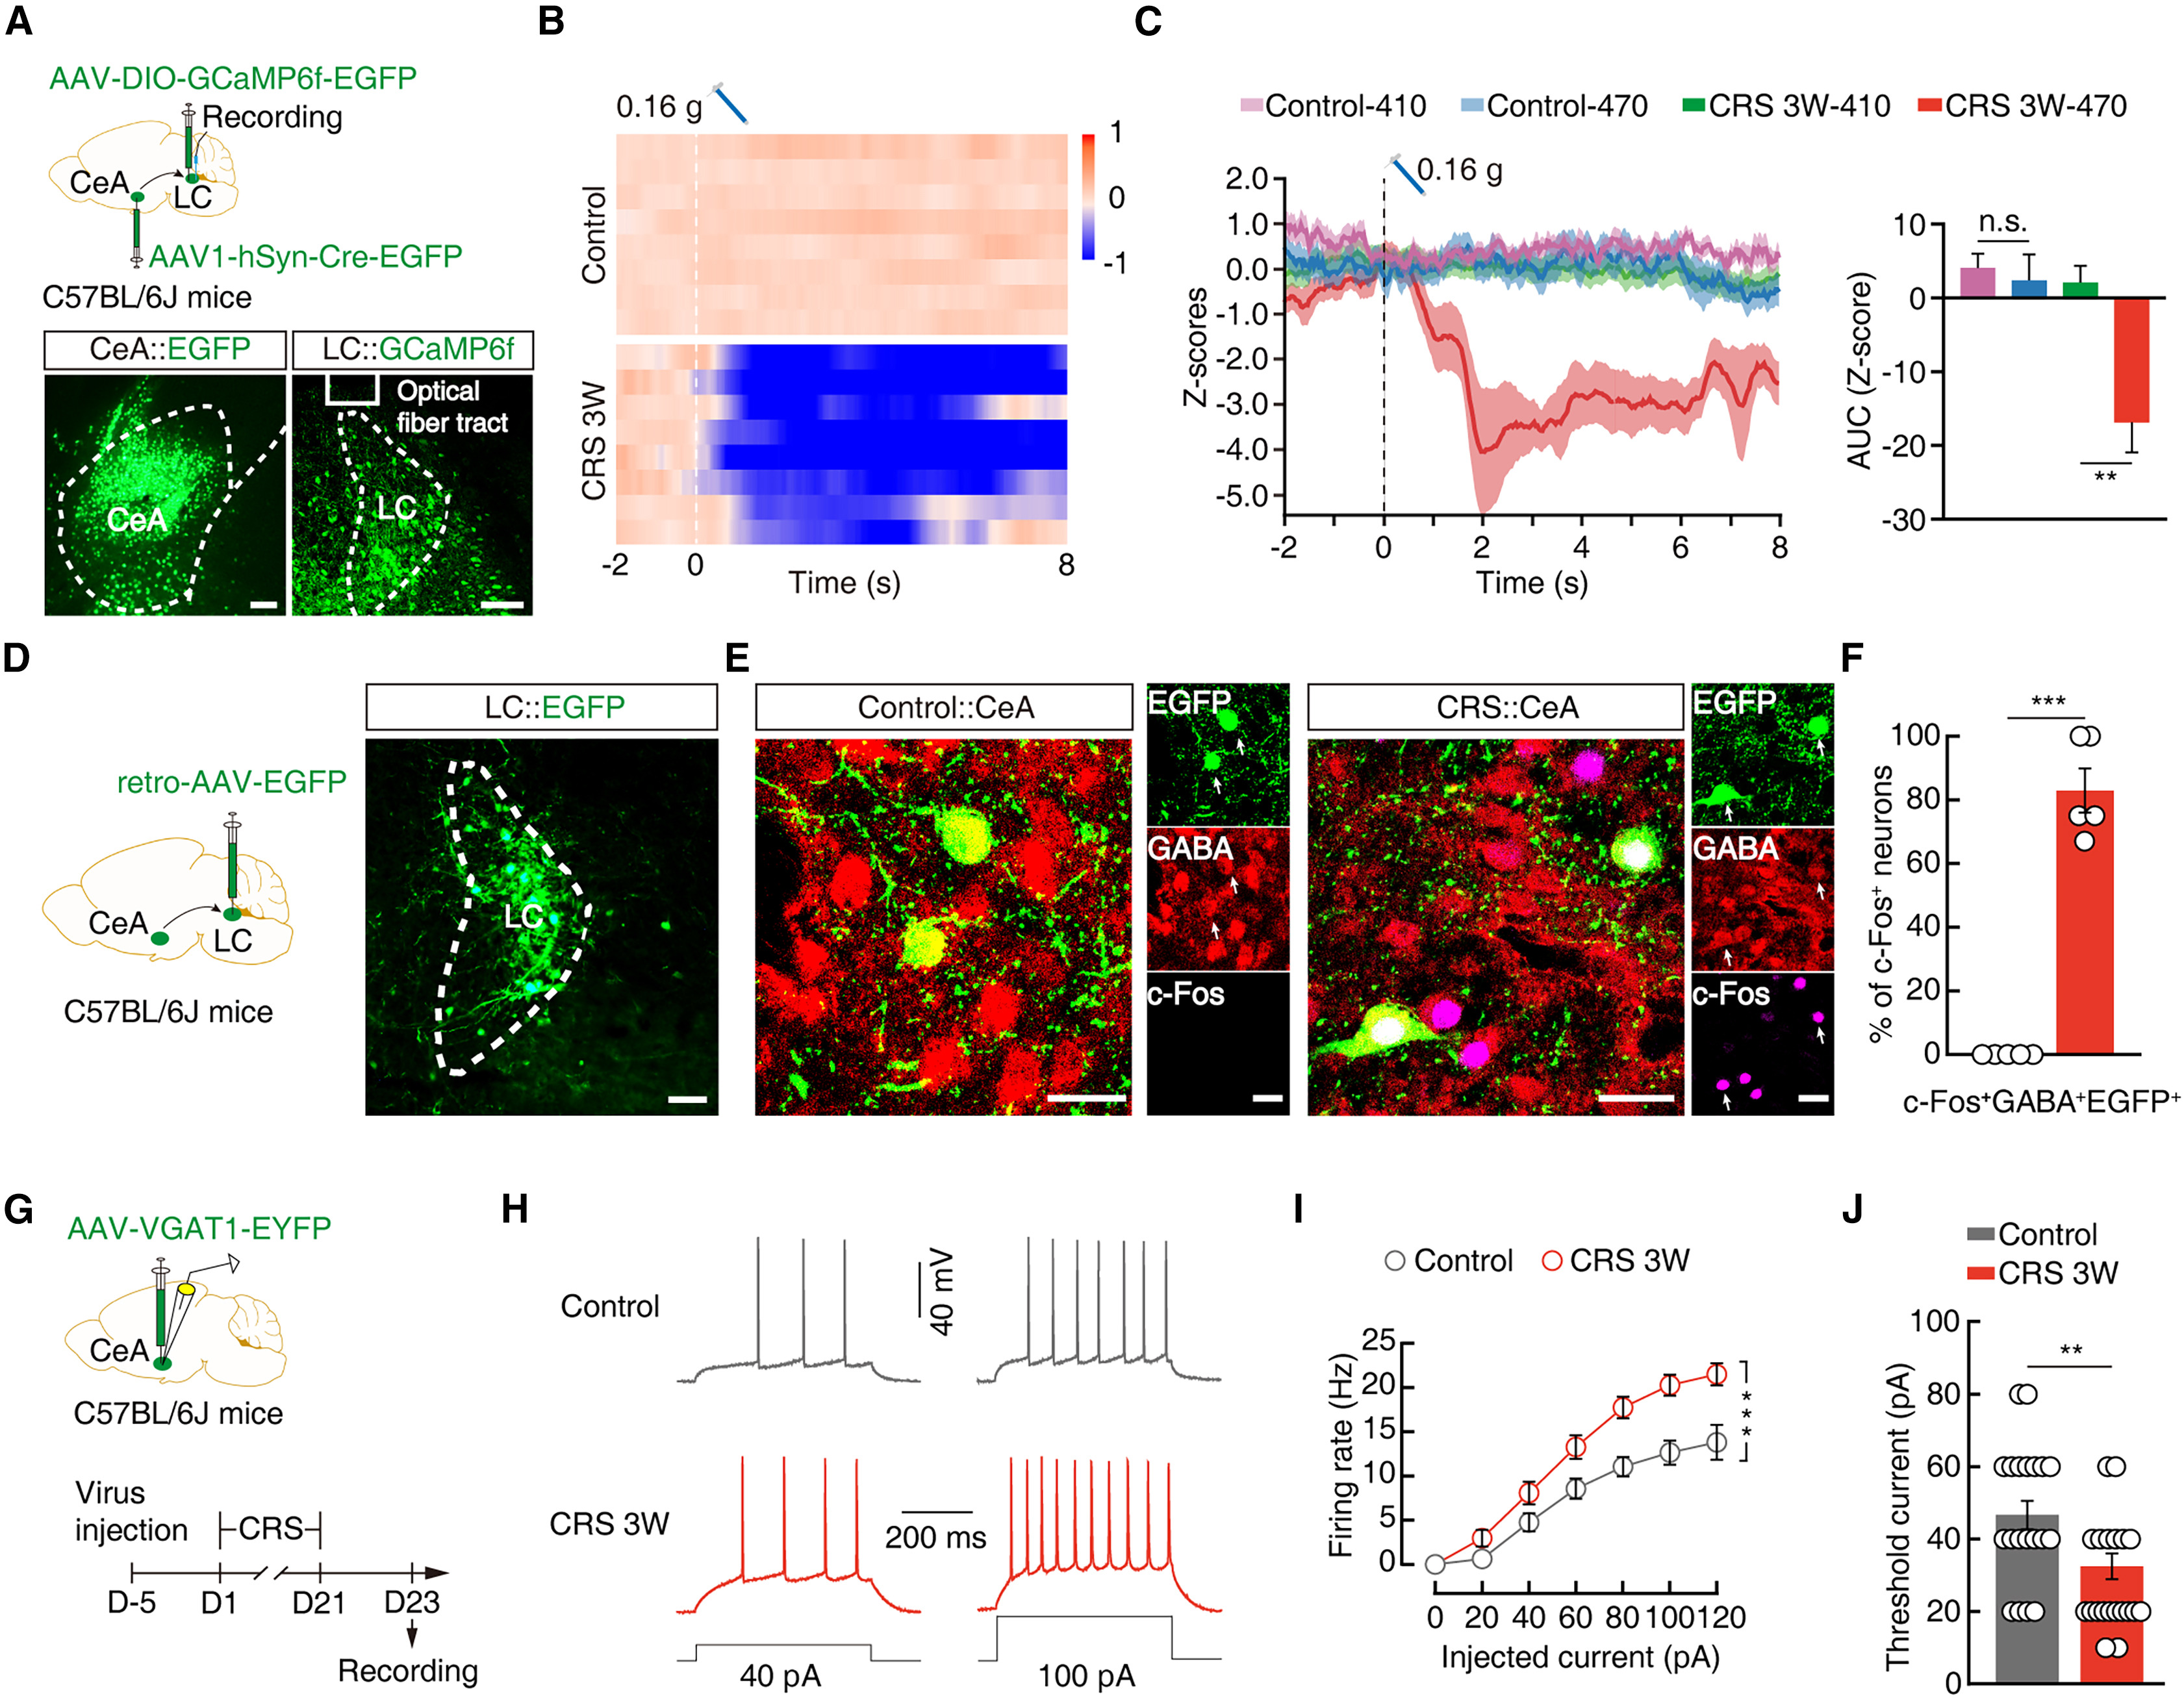
在慢性束缚应激状态下,这条GABACeA→NELC抑制性通路发生了怎样的功能重塑?研究团队在CeA注射顺行跨单突触病毒AAV1-hSyn-Cre-EGFP,并在LC注射Cre依赖的钙指示剂病毒AAV-DIO-GCaMP6f,利用在体光纤光度记录技术实时监测自由活动小鼠中接受CeA投射的LC神经元钙信号(图3A–B)。当使用阈值下(0.16 g)von Frey纤毛刺激小鼠后爪时,正常对照小鼠的LC神经元钙信号无明显变化,而CRS 3W小鼠中接受CeA投射的LC神经元GCaMP6f荧光信号(Z-Score与ΔF/F)则出现快速且显著的下降(图3C–E)。与此同时,逆行标记结合c-Fos免疫染色及脑片电生理记录显示,CRS 3W小鼠投射至LC的CeA神经元中c-Fos+激活比例显著升高(其中约80%为GABA+,图3F–I),且GABACeA神经元的诱发放电频率显著增加、基强度(Rheobase)显著降低(图3J–M)。
随后,研究团队通过通路特异性的化学遗传学(LC注射retro-AAV-Cre-EGFP,CeA注射AAV-DIO-hM4Di/hM3Dq-mCherry)与末梢光遗传学(Vgat-Cre小鼠CeA注射AAV-DIO-eNpHR3.0-EYFP或AAV-DIO-ChR2-mCherry,LC植入光纤给予594 nm黄光或473 nm蓝光)对该通路进行了双向功能验证(图4A–P)。无论是化学遗传学抑制投射至LC的CeA神经元,还是光遗传学抑制LC内的GABACeA神经末梢,均能在雄性和雌性CRS 3W小鼠中显著提高机械与热痛阈值,并在CPP测试中产生镇痛相关的条件性位置偏爱(图4A–D、4I–L);反之,在正常小鼠中激活该通路则直接诱发机械/热痛敏化及位置厌恶(图4E–H、4M–P)。尤为关键的是,调控该通路同样不影响小鼠的抑郁样行为,且对完全弗氏佐剂(CFA 2D)诱导的急性炎症痛毫无影响,证明GABACeA→NELC通路具有针对“慢性应激诱发疼痛”的高度病因学特异性。
来源:Jing Wei et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
顺藤摸瓜:下游NELC→GluLPAG去甲肾上腺素能投射介导镇痛输出
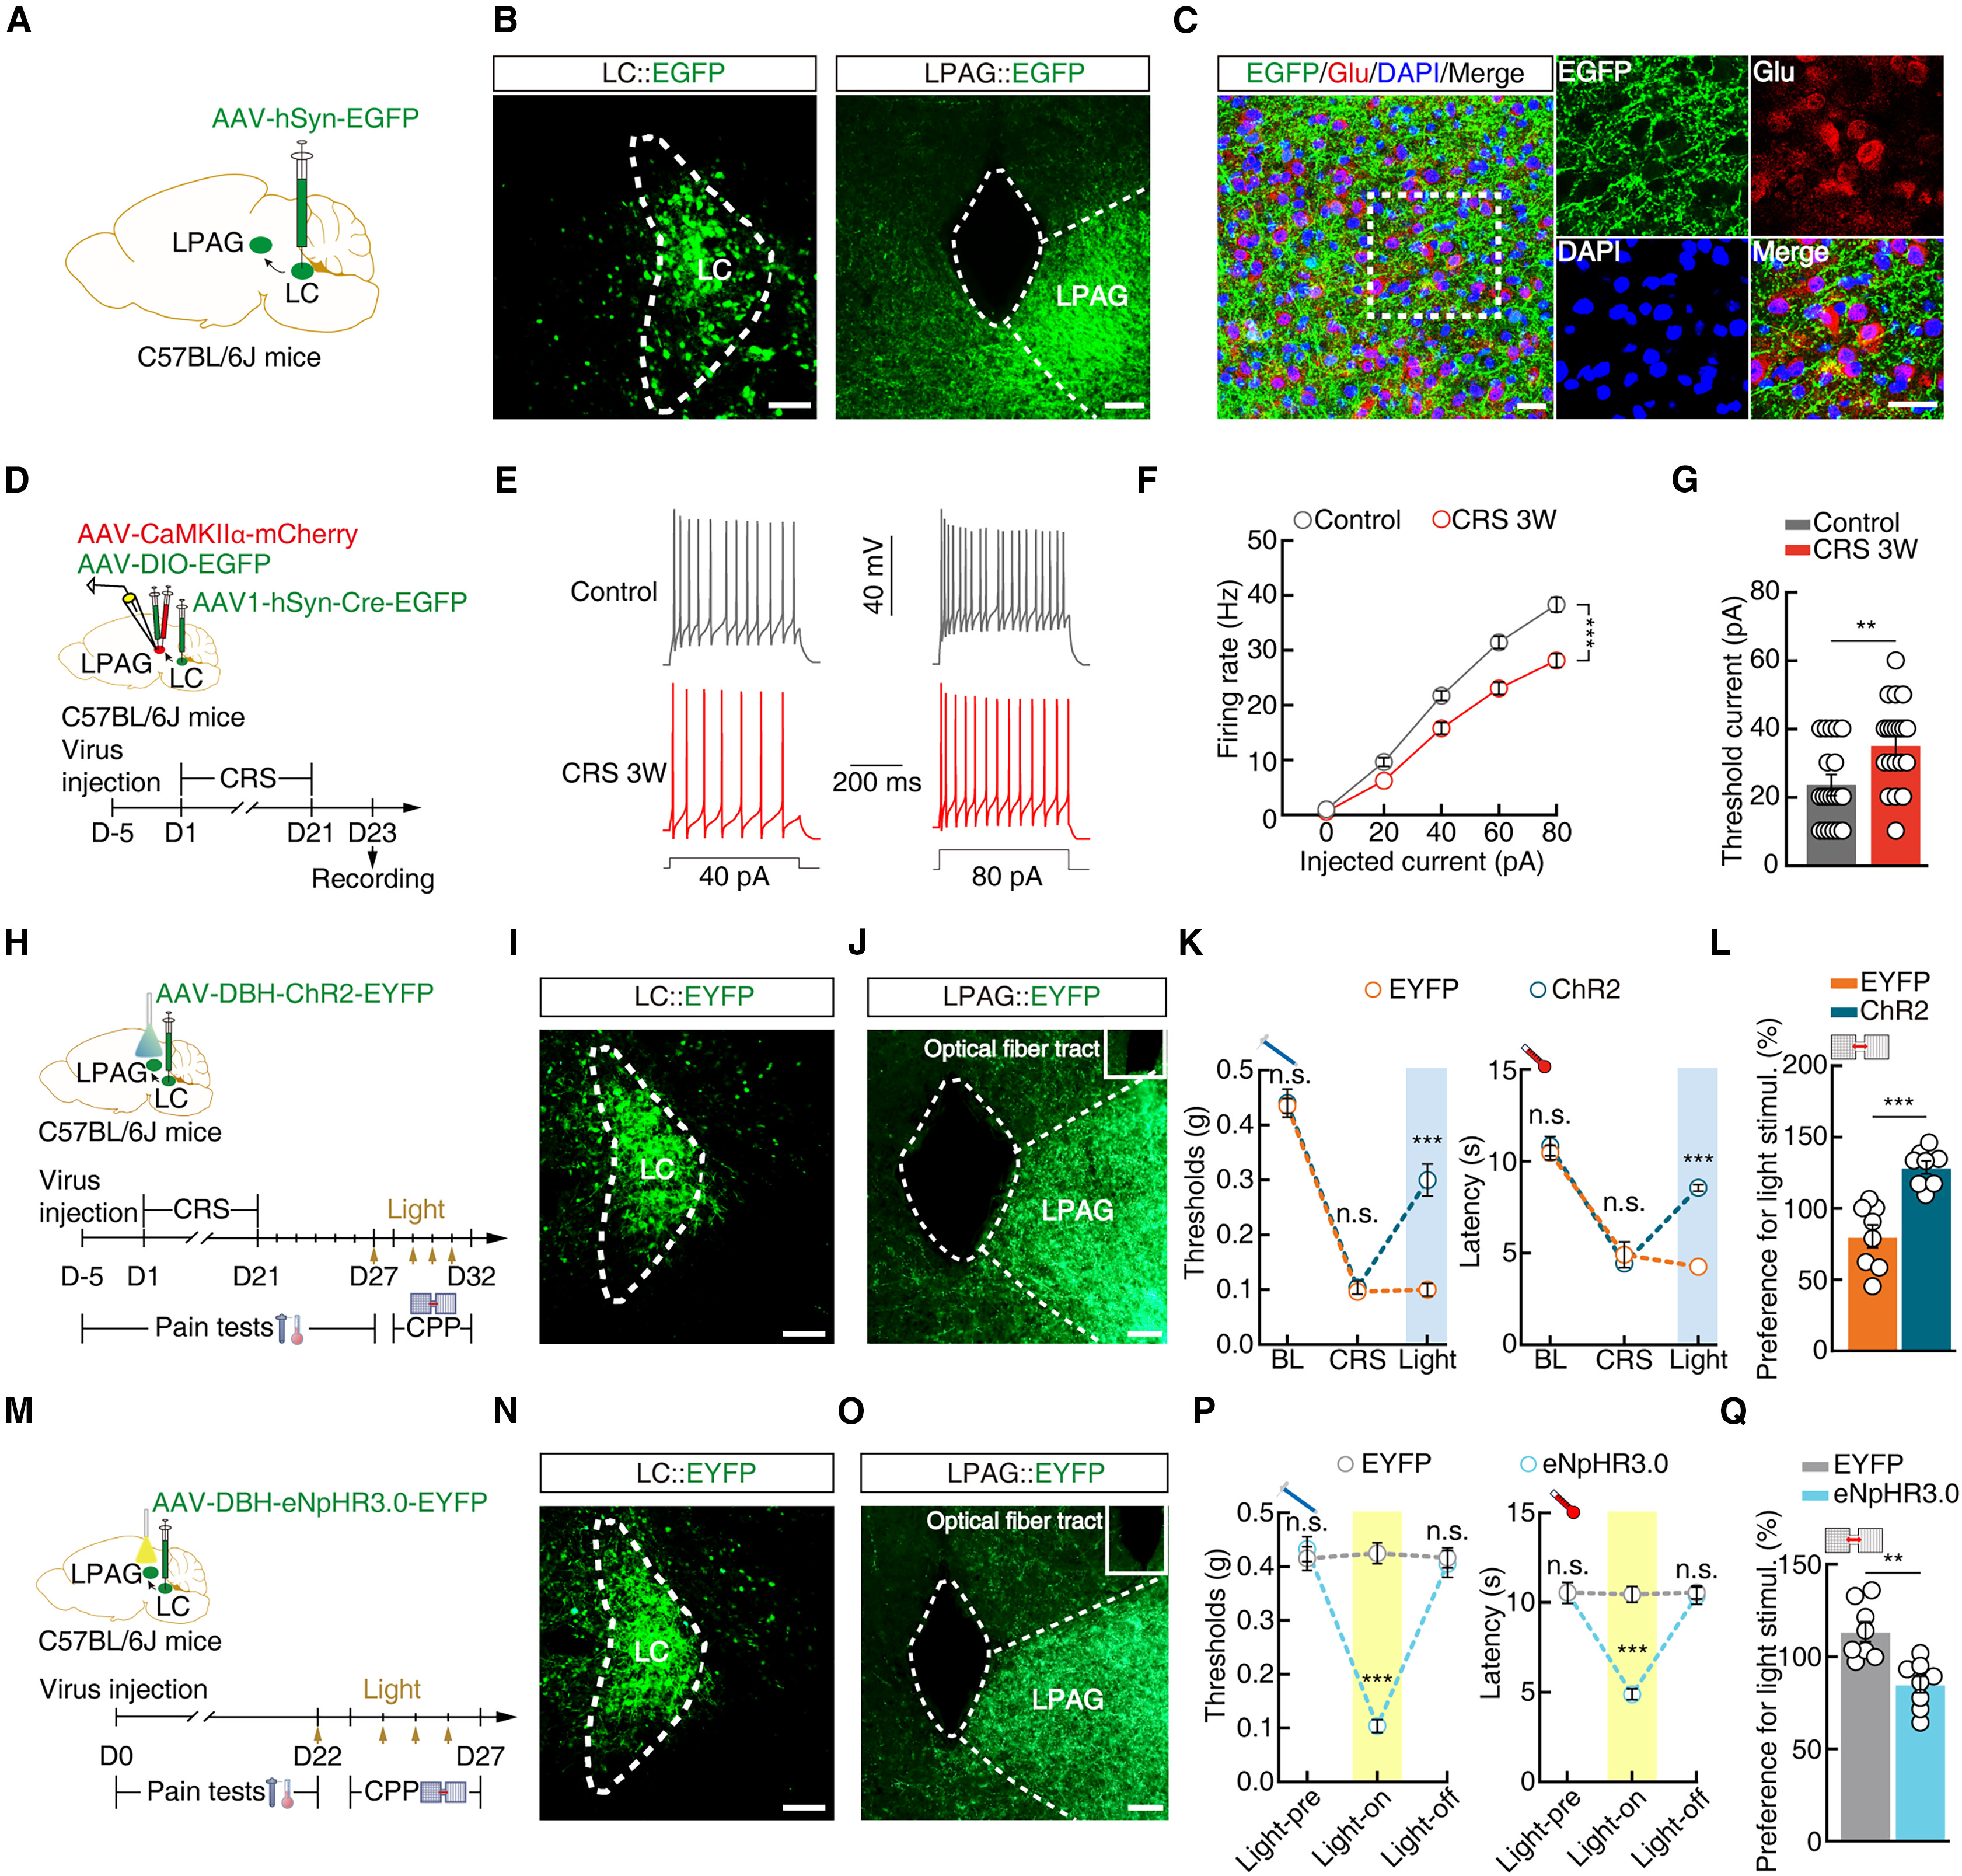
蓝斑NELC神经元被抑制后,又是如何通过下游靶区放大痛觉信号的?顺行病毒示踪显示,LC向外侧导水管周围灰质(LPAG)这一经典下行疼痛调制中枢发出密集投射,且顺行跨单突触标记(LC注射AAV1-hSyn-Cre-EGFP,LPAG注射AAV-DIO-EGFP)证实LPAG内约85%的突触后靶细胞为谷氨酸能兴奋性神经元(GluLPAG,图5A–D)。在CRS 3W小鼠中,接受LC投射的GluLPAG神经元(通过CaMKIIα-mCherry与跨突触EGFP双标识别)诱发放电频率显著降低、基强度显著升高(图5E–H)。在DBH-Cre小鼠脑片中,473 nm蓝光刺激表达ChR2的NELC末梢可在LPAG神经元中诱发明显的内向兴奋性电流,且该电流可被肾上腺素能受体拮抗剂卡维地洛(Carvedilol)阻断,证实NELC末梢通过释放去甲肾上腺素兴奋下游GluLPAG神经元。
行为学光遗传学干预进一步表明,向C57BL/6J小鼠LC注射AAV-DBH-ChR2-EYFP并在LPAG上方植入光纤,施加蓝光选择性激活CRS 3W小鼠的NELC→LPAG投射末梢,可显著逆转机械与热痛超敏并诱导条件性位置偏爱(图5I–L);反之,向正常小鼠LC注射AAV-DBH-eNpHR3.0-EYFP并通过黄光抑制NELC→LPAG末梢,则会模拟出慢性应激样的机械/热痛敏化及位置厌恶(图5M–P),且同样不改变小鼠的抑郁样行为。
来源:Jing Wei et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗
三级环路闭环验证:GABACeA→NELC→GluLPAG去抑制通路的整合模型
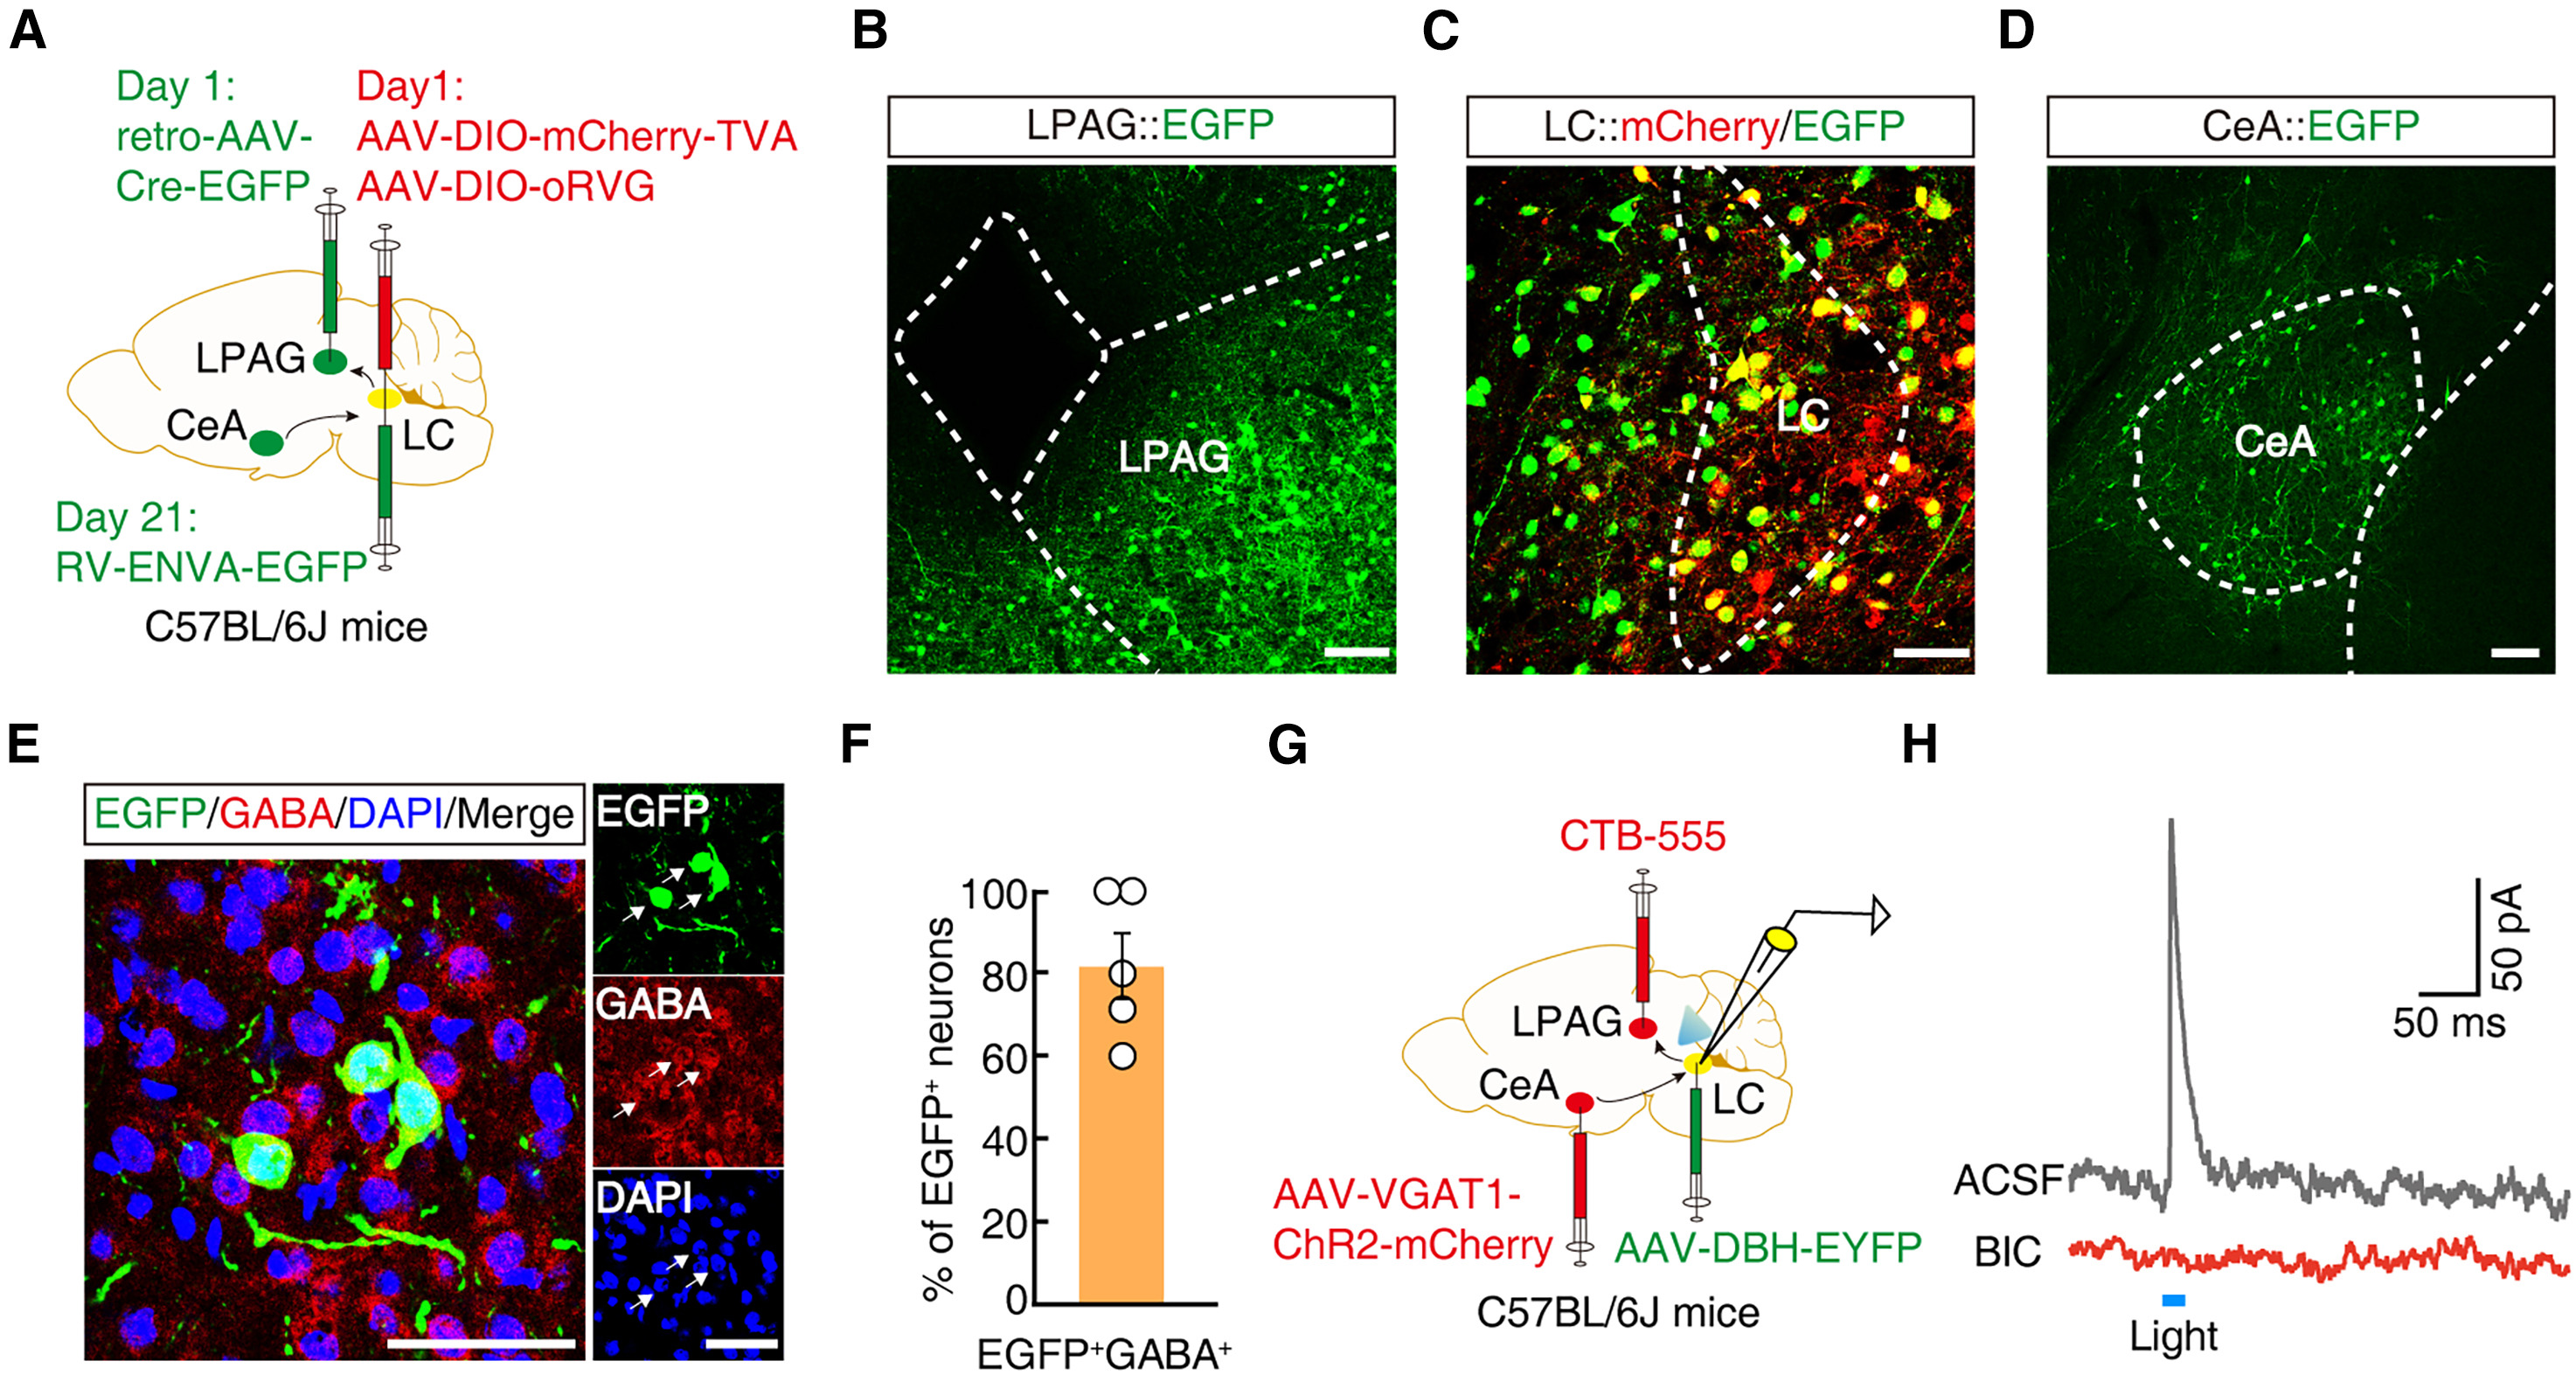
为了直接验证GABACeA、NELC与GluLPAG三个节点是否构成连续的跨双突触三级环路,研究团队设计了精巧的“逆行Cre+狂犬病毒”三级联用示踪实验(图6A):先在小鼠右侧LPAG注射逆行病毒retro-AAV-Cre-EGFP,使其逆行感染投射至LPAG的LC神经元并表达Cre重组酶;同时在同侧LC注射Cre依赖的狂犬病毒辅助蛋白(AAV-DIO-mCherry-TVA与AAV-DIO-oRVG),3周后注入RV-ENVA-EGFP(图6B–C)。结果显示,狂犬病毒成功跨越投射至LPAG的LC起始神经元,在同侧CeA标记出大量EGFP+上游输入神经元,且其中约80%与GABA免疫荧光共标(图6D–F)。
最后,研究团队在小鼠CeA注射AAV-VGAT1-ChR2-mCherry、在LC注射AAV-DBH-EYFP,并在LPAG注射红色逆行示踪剂CTB-555(图6G)。在急性LC脑片中,专门针对同时表达EYFP(去甲肾上腺素能)与CTB-555(投射至LPAG)的LC神经元进行全细胞膜片钳记录:蓝光刺激CeA来源的ChR2+ GABA能神经末梢,可在这些投射至LPAG的NELC神经元上直接诱发可被荷包牡丹碱(BIC)完全阻断的单突触IPSC(图6H)。至此,研究完整勾勒出慢性应激诱发疼痛的三级环路模型:长期应激过度激活中央杏仁核GABACeA神经元,通过强力抑制蓝斑NELC神经元,撤除了后者对外侧导水管周围灰质GluLPAG神经元的去甲肾上腺素能兴奋作用,从而开启慢性应激状态下的痛觉敏化与负性厌恶大门。这一发现不仅阐明了慢性应激痛与抑郁情绪在环路层面的解耦机制,也为临床慢性应激相关性疼痛的精准干预提供了新靶点。
来源:Jing Wei et al. · Cell Reports · © Elsevier Inc.
查看原图与英文图注 ↗