同样的切口,为何痛敏更持久?眶额叶—前岛叶通路的应激线索
小鼠研究发现,术前应激增强眶额叶到前岛叶的兴奋性输入;右美托咪定的作用与这条连接上的α2受体信号相联系。
相同的组织切口,为什么在先受应激的小鼠中带来更持久的痛敏?研究者将术前复合应激与后足切口组合起来,发现变化还延伸到没有切口的另一侧。循着这个现象,他们找到前岛叶中过强的兴奋性活动,再追到眶额叶输入,观察右美托咪定怎样改变这条皮层连接。
应激加切口增强前岛叶兴奋性细胞及其眶额叶输入;抑制连接可减轻痛敏,右美托咪定经α2相关机制降低过强的兴奋性传递。
阅读目录 · 6个部分
切口之外,另一侧后足也更敏感
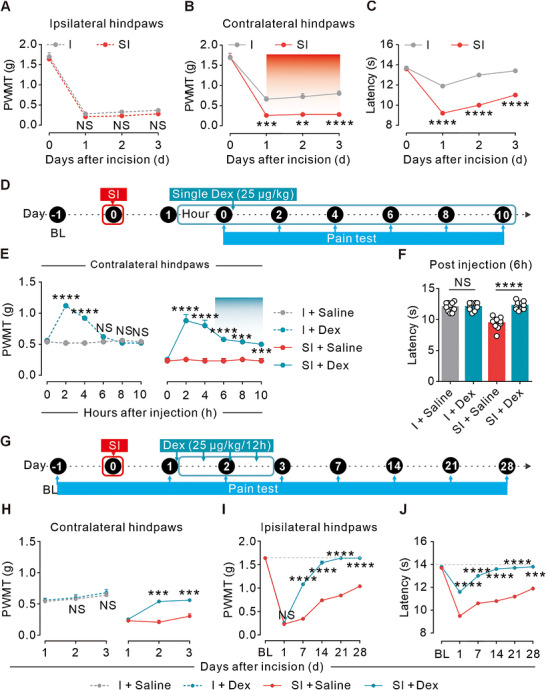
经过改良单次延长应激后,小鼠接受右后足切口。与单独切口相比,联合组非切口侧机械阈值更低,两侧热反应更敏感;应激还改变了焦虑样探索,总运动距离相近。变化超出了局部切口,提示手术前的整体状态会影响后续反应。
切口侧早期机械阈值两组都很低,差异没有达到显著;作者用芬太尼剂量反应补充观察,认为极低区间的地板效应可能掩盖差别。非切口侧因此成为多数后续实验的主要读数,帮助观察应激伴随的广泛敏化如何变化。
急性阈值提高之后,还留下较晚的变化
系统给予右美托咪定后,单独切口和联合组早期机械阈值都提高;约六小时后,单独切口组回到原水平,而联合组仍保留改善。研究因此选择较晚时点观察热敏和神经读数。术后前两天短程给药,还加快联合组后续机械与热读数恢复,长期观察延伸至四周。
单独切口组的早期效应逐渐退去,联合组在较晚时点仍有改善,给两种动物状态画出了不同轨迹。术后早期短程处理的随访结果,又显示随后恢复速度的改变。研究者接下来转向神经活动,寻找这种较持续变化背后的细胞与突触线索。
来源:Rong H et al. · MedComm · CC BY
查看原图与英文图注 ↗
前岛叶中,两类细胞呈现不同变化
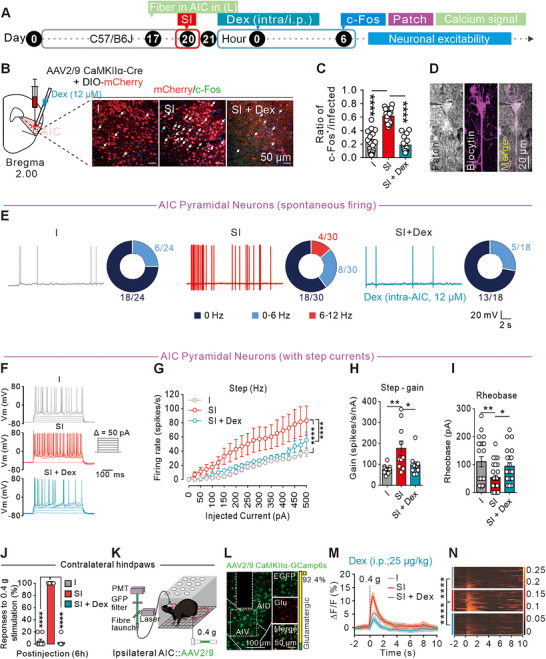
静息影像和活动标记把前岛叶带入视野。激活当地谷氨酸能细胞降低机械与热阈值,抑制则减轻联合模型的痛敏;激活GABA能细胞也能改善读数。一个区域内,两类细胞的操作可以把行为推向不同方向,局部调节因此需要比整体活动更细的观察。
联合模型的谷氨酸能细胞自发和诱发兴奋性增强,轻力机械刺激引起更大的钙响应;右美托咪定降低这些异常。GABA能细胞的兴奋性与刺激钙读数却没有同样组间变化。药物相关变化因此主要指向兴奋性细胞,让研究进一步追问它们收到什么输入。
来源:Rong H et al. · MedComm · CC BY
查看原图与英文图注 ↗
更频繁的兴奋性事件,把注意力引向上游
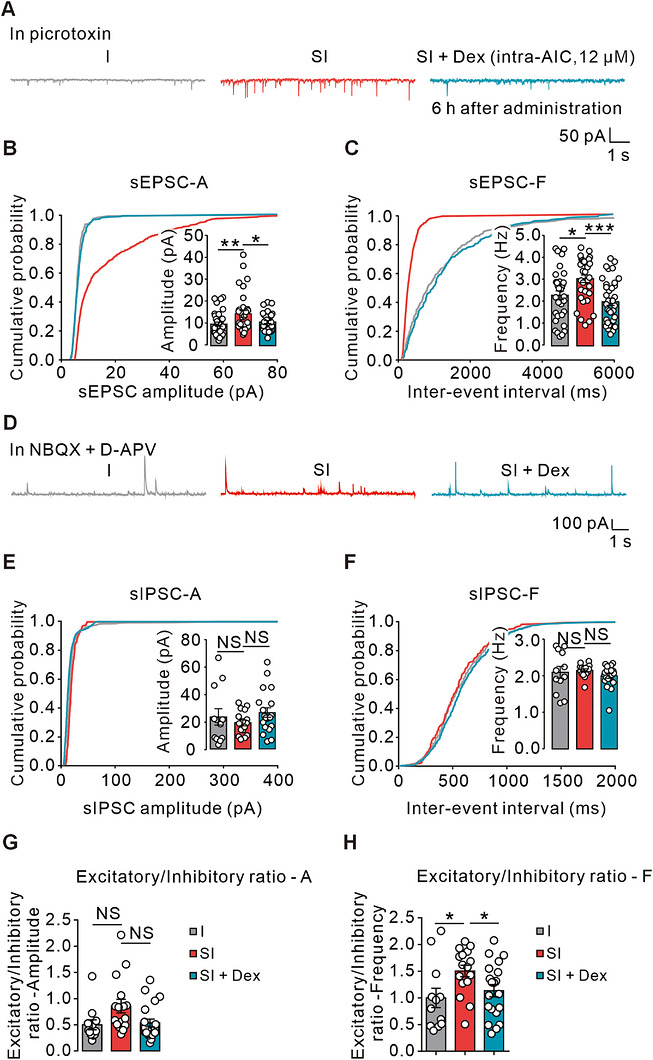
记录同一类前岛叶细胞接收的兴奋与抑制电流后,团队发现联合模型兴奋性事件增强,抑制性电流的幅度与频率未见显著变化。比较比值时,频率比例改变而幅度比例没有同样显著改变。药物减少过强兴奋性传递并恢复相关比例,支持其作用主要落在输入增强这一侧。
频率的变化尤其突出,幅度比值却相近,提示突触事件的发生方式值得关注。影像连接与投射资料将眶额叶列为候选上游。接下来,研究不再只看前岛叶细胞更活跃,而是沿着一条具体输入,检验是谁在驱动这份增强。
来源:Rong H et al. · MedComm · CC BY
查看原图与英文图注 ↗
眶额叶末梢,把回路作用与α2信号相连
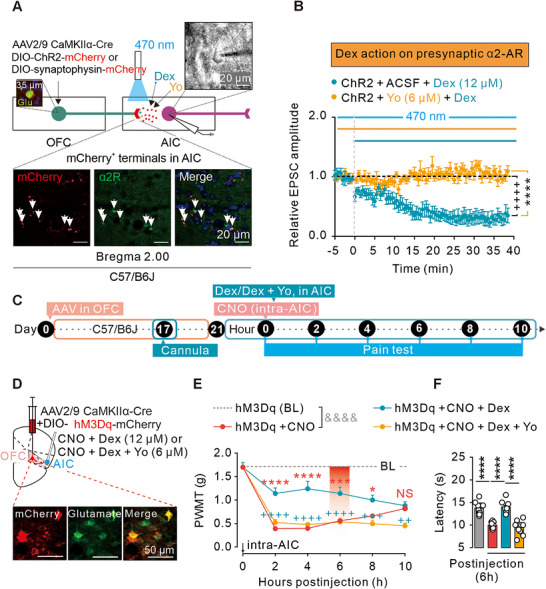
追踪和切片记录支持眶额叶至前岛叶的直接谷氨酸能连接。抑制末梢减轻联合模型痛敏,激活则在未受模型处理的动物中诱发相似敏化。整体眶额叶影像没有同样明显变化,但投向前岛叶的细胞群被招募;特定连接的动态可以藏在区域整体读数背后。
这些末梢附近可见α2受体标记。右美托咪定降低光诱发兴奋性电流,育亨宾抵消这一作用;在行为实验中,育亨宾也阻断局部药物带来的改善。解剖位置、突触电流和行为结果汇合,支持α2相关突触前调节参与减弱这条过强输入。
来源:Rong H et al. · MedComm · CC BY
查看原图与英文图注 ↗
压力如何放大输入,成为新的机制问题
相同切口、不同术前状态,最终牵出了一个皮层输入问题。前岛叶细胞的兴奋性与眶额叶输入一起变化,药物效应又落到受体相关突触调节。研究让广泛痛敏与具体连接相遇,也提示理解药物时,急性作用与较晚网络状态都值得观察。
当前证据来自雄性小鼠复合应激与切口模型。其他输入、α2受体的具体亚型和细胞位置,以及细胞内在兴奋性与突触改变的先后仍待细分。更精确的遗传定位与跨状态比较,将帮助解释这条连接在应激相关痛敏中的作用。