跑起来以后,前额叶里发生了什么?运动与CB1信号的细胞线索
跑台开始,内源性大麻素信号迅速升高;小鼠研究发现,GABA能细胞上的CB1受体参与运动后的焦虑样探索改善。
经历慢性约束压力的小鼠,更少进入旷场中心和迷宫开放臂。跑台训练后,这些探索行为有所回升。运动怎样改变脑内状态?研究者从不同跑步强度的比较出发,记录内侧前额叶中的内源性大麻素信号,再把一个受体的问题细分到不同细胞:CB1长在什么位置,或许与它有多少同样关键。
中等强度跑步提高前额叶内源性大麻素传感信号;GABA能细胞CB1缺失使运动改善消失,受体激活可模拟部分效果,谷氨酸能细胞操作未产生同样结果。
阅读目录 · 6个部分
比较三种跑步强度,探索行为开始回升
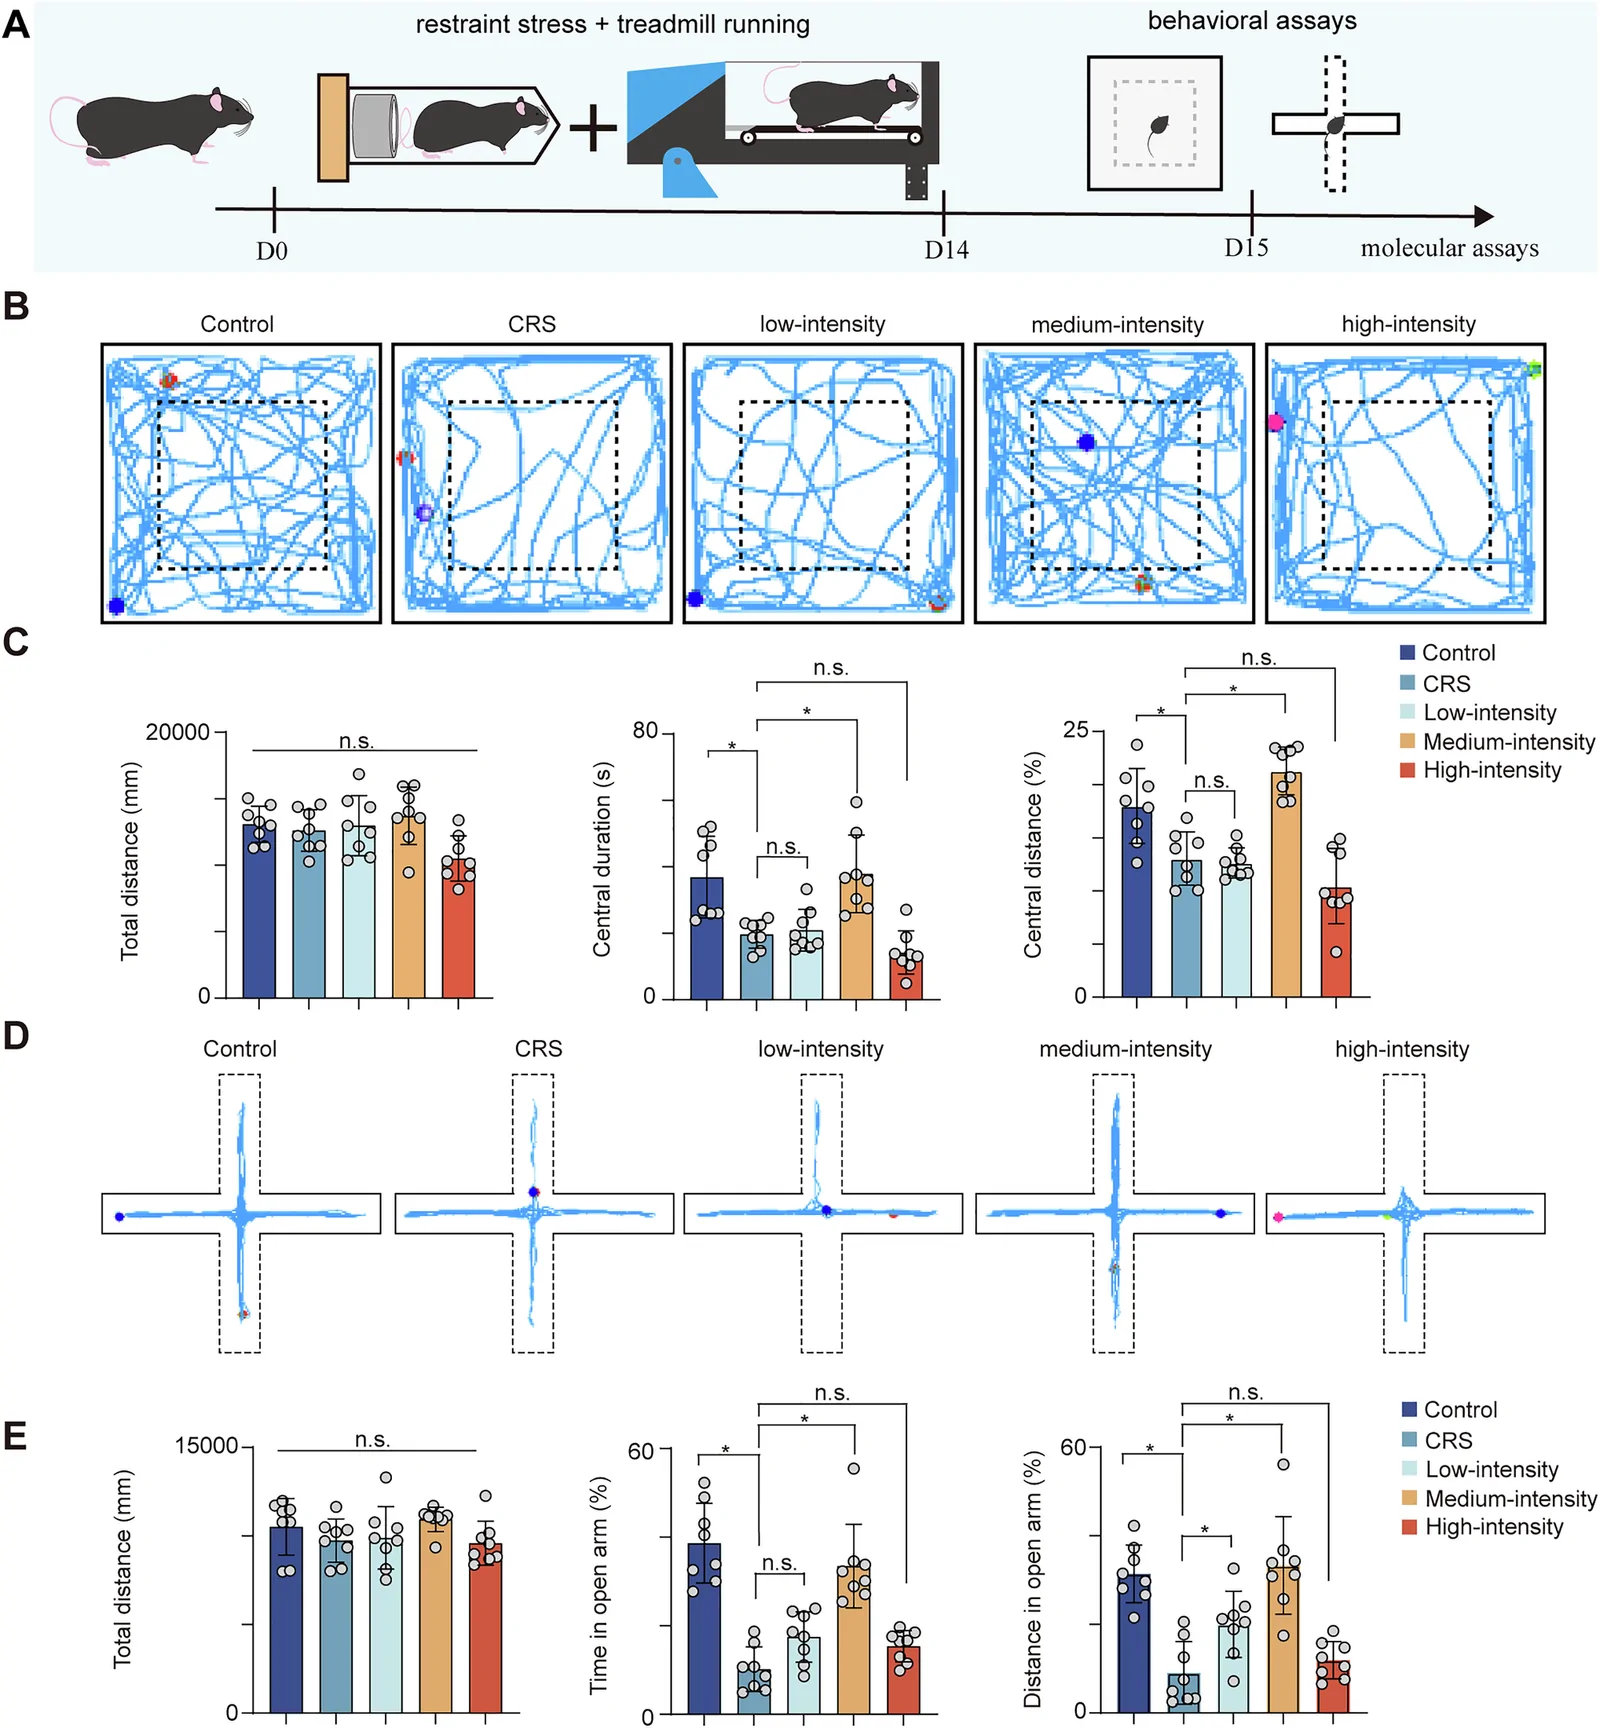
慢性约束后,小鼠对开放空间的探索减少。团队比较两周不同强度跑台训练,中等强度组在旷场中心和高架十字迷宫开放臂两类指标上改善较明显,因而成为后续实验的重点。相同任务中不同负荷的结果,让研究有了一个具体问题:这段跑步经历启动了哪种脑内调节?
这一压力安排没有改变悬尾和强迫游泳中的相关读数,运动能力也未明显下降。补充比较中,行为改善未显示显著性别差异,主要机制实验则采用雄鼠。研究围绕的是这些特定的焦虑样探索变化,跑步后的改善由此有了清晰的观察范围。
来源:Li H et al. · Translational psychiatry · CC BY-NC-ND
查看原图与英文图注 ↗
从前额叶活动,寻找运动改变的化学线索
压力后,内侧前额叶的c-Fos活动标记增加,运动使其下降。局部化学损伤改变正常动物的探索,也让压力动物不再获得运动后的改善。前额叶因此成为重点:它既参与情绪相关行为,也包含许多作用不同的细胞,整体读数背后可能藏着多种调节。
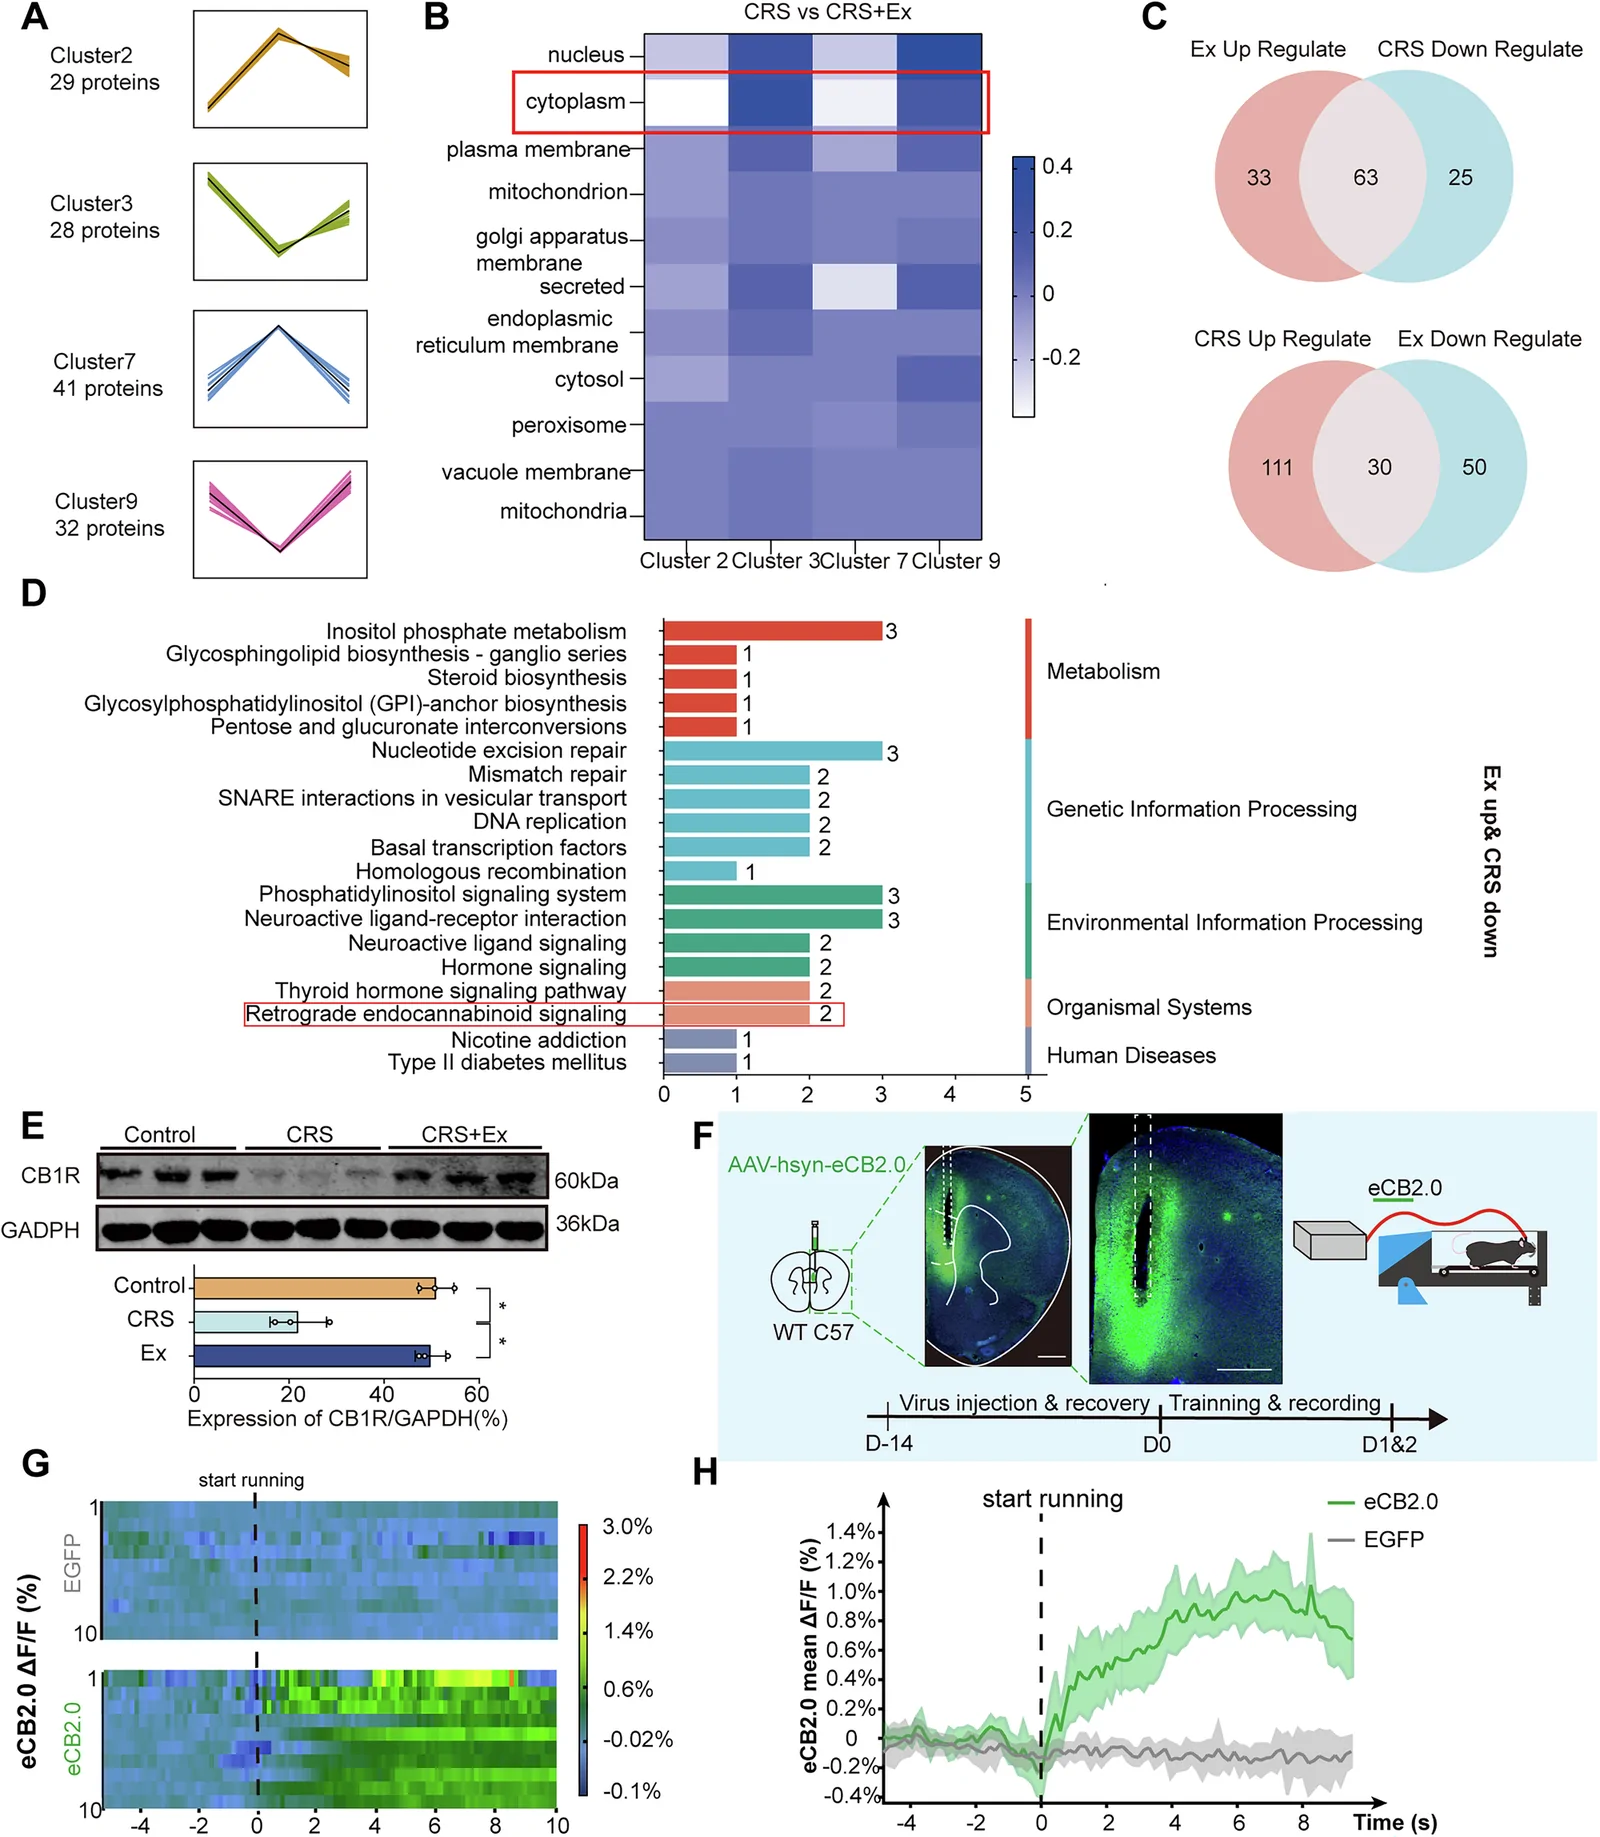
团队随后比较蛋白变化,寻找被压力降低、又被运动提高的候选。与内源性大麻素有关的通路出现在其中。这类由身体自身产生的化学信号,可以经CB1受体调节突触传递,让跑步与前额叶活动之间多了一条可追踪的线索。
跑步开始,内源性大麻素信号迅速升高
蛋白组中,部分被压力降低而被运动提高的蛋白富集到内源性大麻素相关通路。前额叶 CB1 受体蛋白也呈压力后降低、训练后回升。活体传感记录进一步显示,中等强度跑步开始时,eCB2.0 荧光迅速增加,EGFP 对照没有同样变化。慢性受体丰度和即时配体信号由此成为两个相互关联的层次。
受体丰度之外,跑步过程中还有即时的化学变化。接下来,局部阻断CB1减弱了运动后的探索改善;给予激动剂则在压力小鼠中模拟改善,总移动距离没有显著改变。传感记录与药理结果相互呼应,让受体从一个蛋白候选变成了功能实验中的关键角色。
来源:Li H et al. · Translational psychiatry · CC BY-NC-ND
查看原图与英文图注 ↗
同一个受体,在不同细胞上结果不同
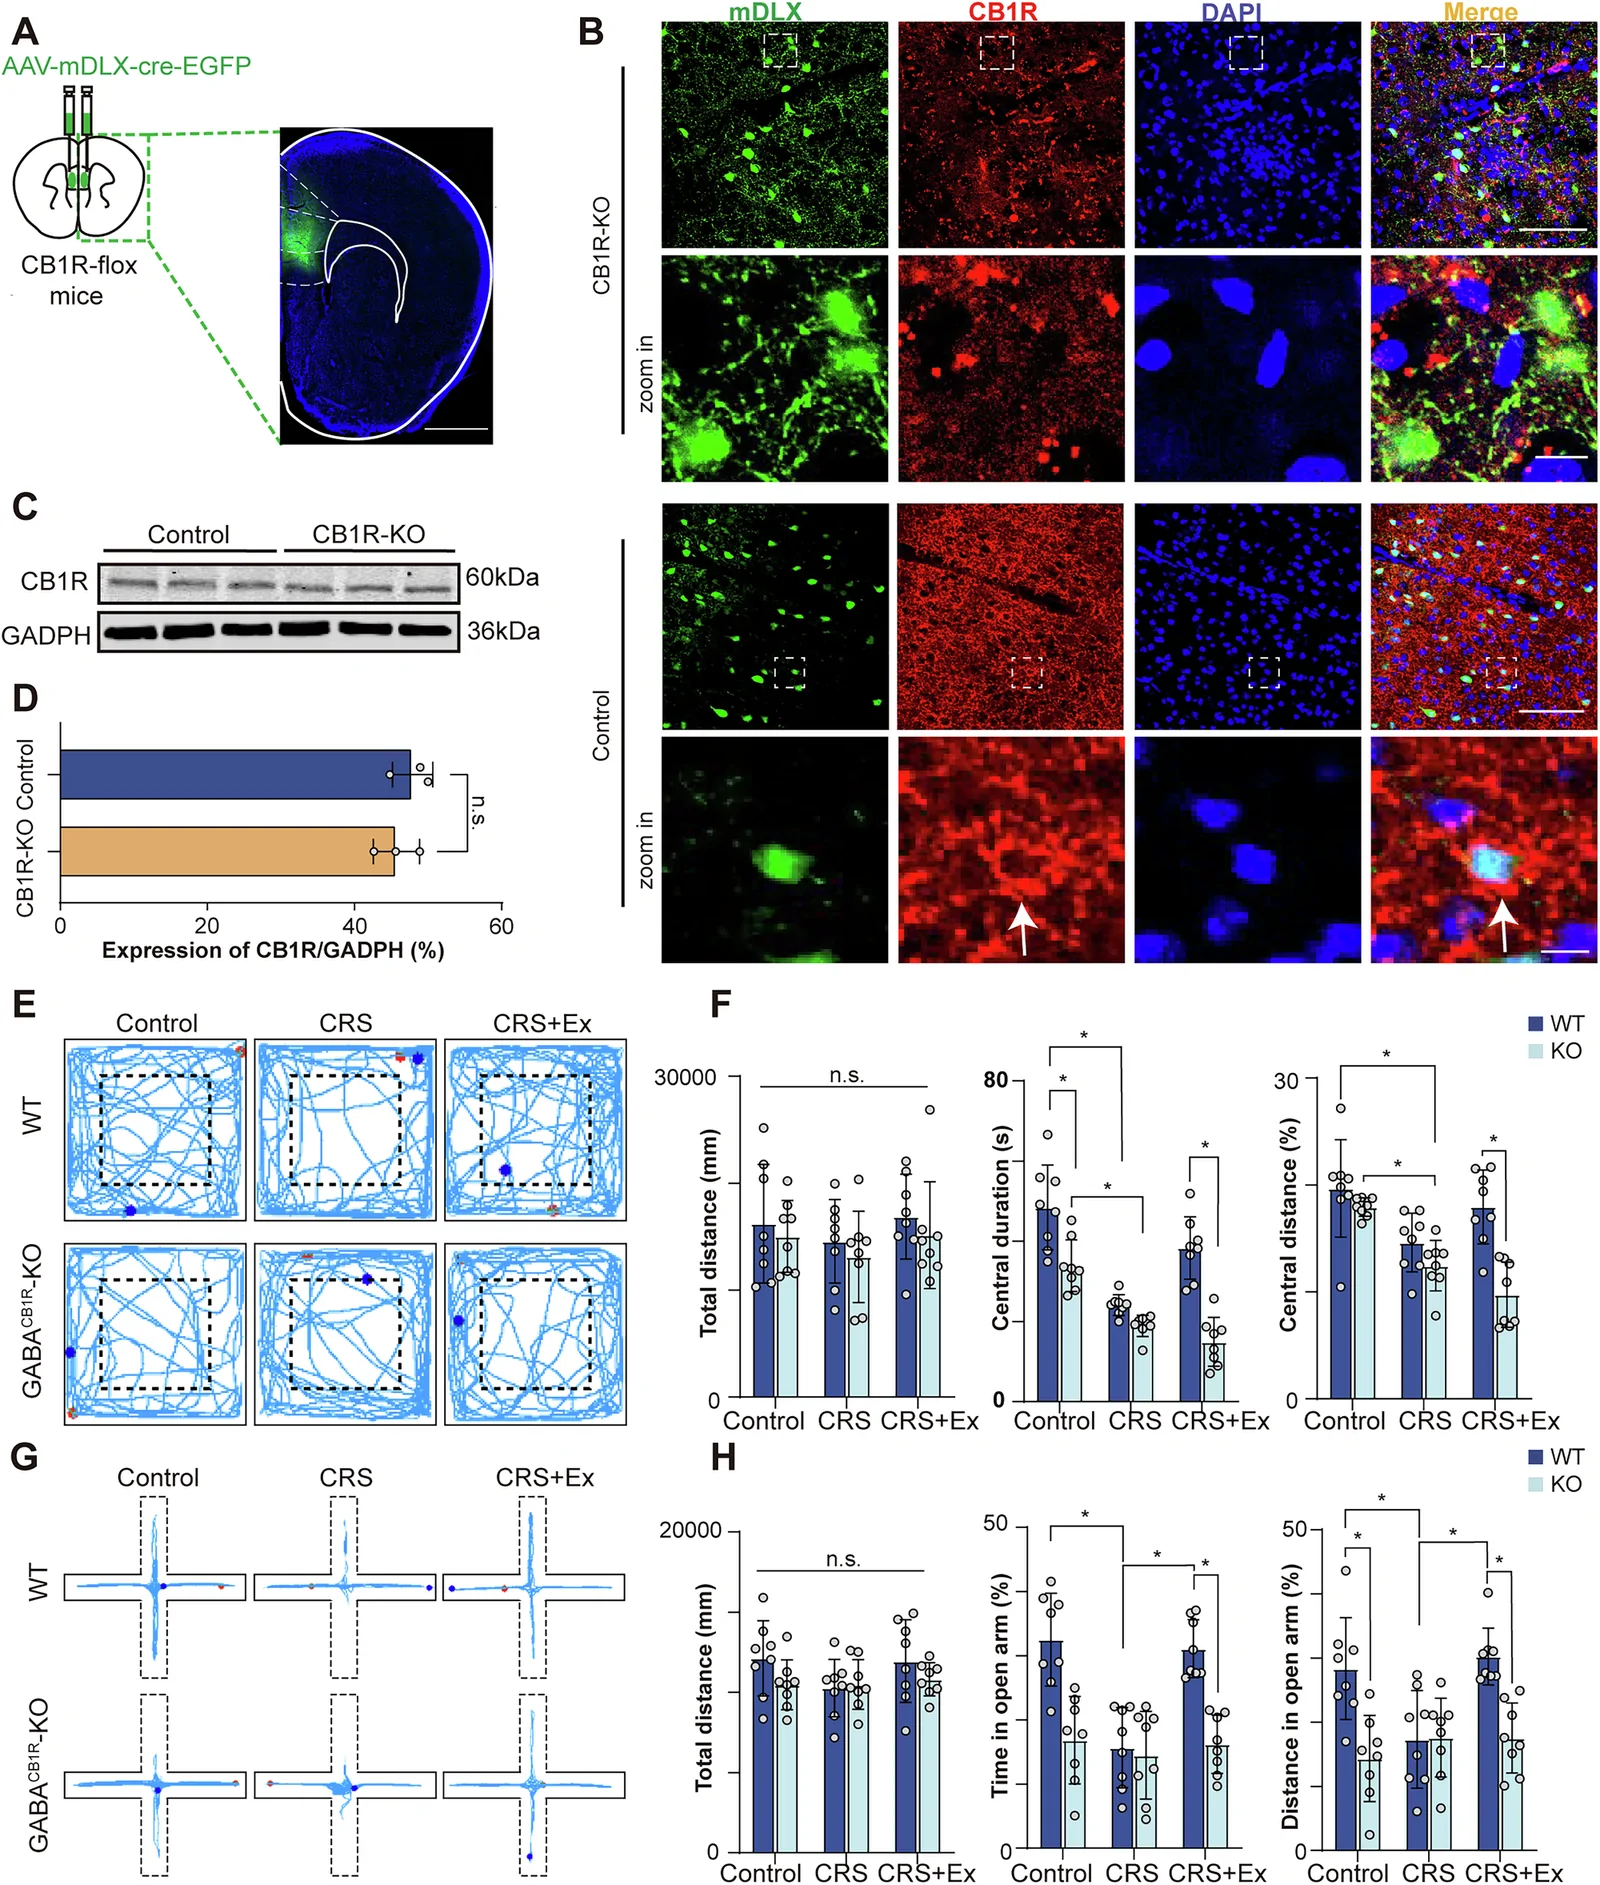
在GABA能细胞中定向删除CB1后,运动不再改善中心和开放臂探索,基础运动相近,但基础焦虑样探索已发生变化。有趣的是,整个前额叶的CB1总蛋白没有显著下降,细胞定位却显示受体减少。一小群细胞上的变化,可以藏在组织总量里,却在行为中表现出来。
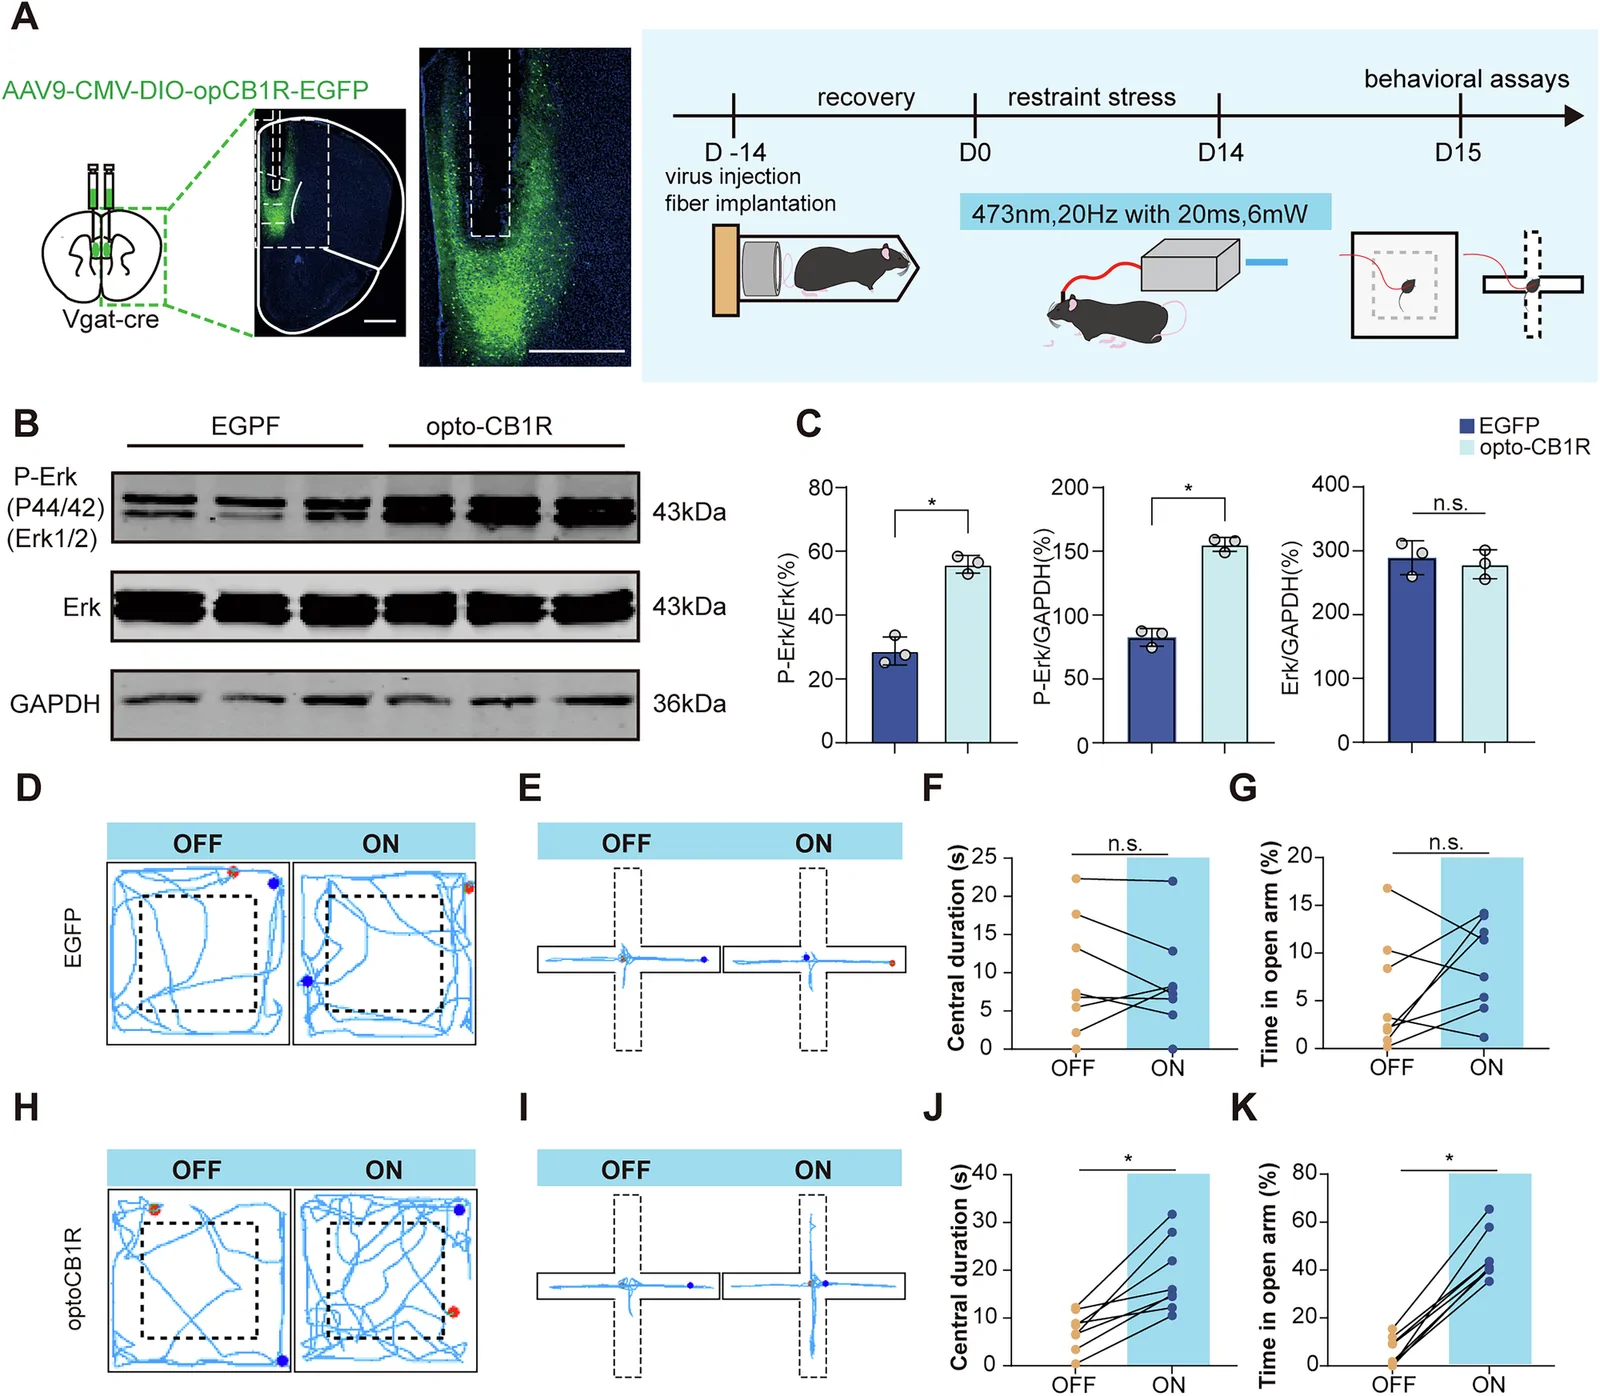
换到谷氨酸能细胞,答案发生改变:CB1删除后运动仍能改善探索,单独光激活这类细胞上的工程化CB1也没有明显改善,尽管工具的信号激活得到验证。细胞身份由此成为故事的关键,CB1在不同位置并没有带来相同的行为结果。
来源:Li H et al. · Translational psychiatry · CC BY-NC-ND
查看原图与英文图注 ↗
激活的是受体,调节的是突触信号
在压力小鼠中,光激活GABA能细胞上的工程化CB1增加了中心和开放臂探索,模拟运动的部分效果。CB1是调节受体,它的激活与让整颗细胞更多放电不同。作为突触前受体,它常能减少递质释放,为理解这一行为变化提供了突触层面的思路。
作者提出,运动引起的内源性大麻素可能经GABA末梢CB1减弱抑制性输出,使靶细胞获得去抑制。遗传与行为结果支持这一受体参与,具体由哪些末梢与靶细胞接力,则留给下一轮突触记录。一个整体运动干预,因而落到了更细的细胞问题上。
来源:Li H et al. · Translational psychiatry · CC BY-NC-ND
查看原图与英文图注 ↗
运动效应中,细胞位置成为关键线索
跑步、前额叶化学信号、受体和细胞身份,在这项研究中逐步相遇。GABA能细胞CB1缺失阻断改善,而受体激活模拟部分结果,让一种整体行为干预有了明确的分子与细胞入口。谷氨酸能细胞中的不同结果,又让这条解释更具体。
GABA能细胞仍包含多个亚群,前额叶分区和远程输出也值得继续细分。主要机制来自雄鼠跑台实验,人的训练负荷与焦虑障碍需要独立研究。下一步追踪具体突触与细胞接力,将帮助解释运动怎样重新调节局部网络。