经历挫败却依然主动接近,听觉丘脑—皮层回路如何守住抗压韧性?
小鼠研究发现社会挫败期间内侧膝状体投射神经元的短时超极化可触发BDNF–TrkB依赖的突触重塑,维持初级听觉皮层抑制性神经元活动与应激韧性。
面对严重的社会挫败或长期心理逆境,不同个体表现出显著分化的结局:易感(susceptible)个体发展出社交回避与快感缺失等抑郁样行为,而具有“心理韧性”(resilience)的个体则能主动调动内源性适应机制维持心理稳态。然而,大脑在应激早期如何感知逆境信号并启动突触与环路层面的内源性保护程序,长期以来缺乏清晰的机制阐释。2023年3月1日,南方医科大学/人工智能与数字经济广东省实验室(琶洲实验室)朱心红教授团队联合华南理工大学李远清教授团队在《Cell》发表题为“A thalamic-primary auditory cortex circuit mediates resilience to stress”的研究论文(李环宇、朱敏桢、袁心蕊为共同第一作者)。研究结合慢性社会挫败应激(CSDS)范式、全脑狂犬病毒单突触示踪、在体多通道电生理与光纤钙记录、转录组测序、突触结构重建及精准光遗传学脉冲模式模拟,系统揭示了内侧膝状体至初级听觉皮层小清蛋白中间神经元环路(MGA1→A1PV)介导内源性心理韧性的时间动态与分子机制。
核心发现:初级听觉皮层(A1)小清蛋白阳性中间神经元(PV-INs)的激活对于小鼠抵御慢性社会挫败应激(CSDS)至关重要,其主要皮层下兴奋性输入来自同侧丘脑内侧膝状体(MG,占A1PV上游输入约16.22%);在CSDS早期攻击阶段,未来表现为韧性(RES)的小鼠投射至A1的MG谷氨酸能神经元(MGA1)出现特异性的短时超极化(short-term hyperpolarization);这一时间动态可塑性通过突触前TrkB受体响应A1锥体神经元分泌的BDNF,驱动MGA1在A1PV神经元上形成新生兴奋性突触;利用光遗传学精准模拟MGA1神经元的短时超极化(而非单纯持续激活)即可唤醒内源性韧性机制,在多种抑郁模型中产生持久的抗抑郁样效应。
阅读目录 · 5个部分
慢性社会挫败应激筛查证实初级听觉皮层PV中间神经元活性维持是内源性心理韧性的必要条件
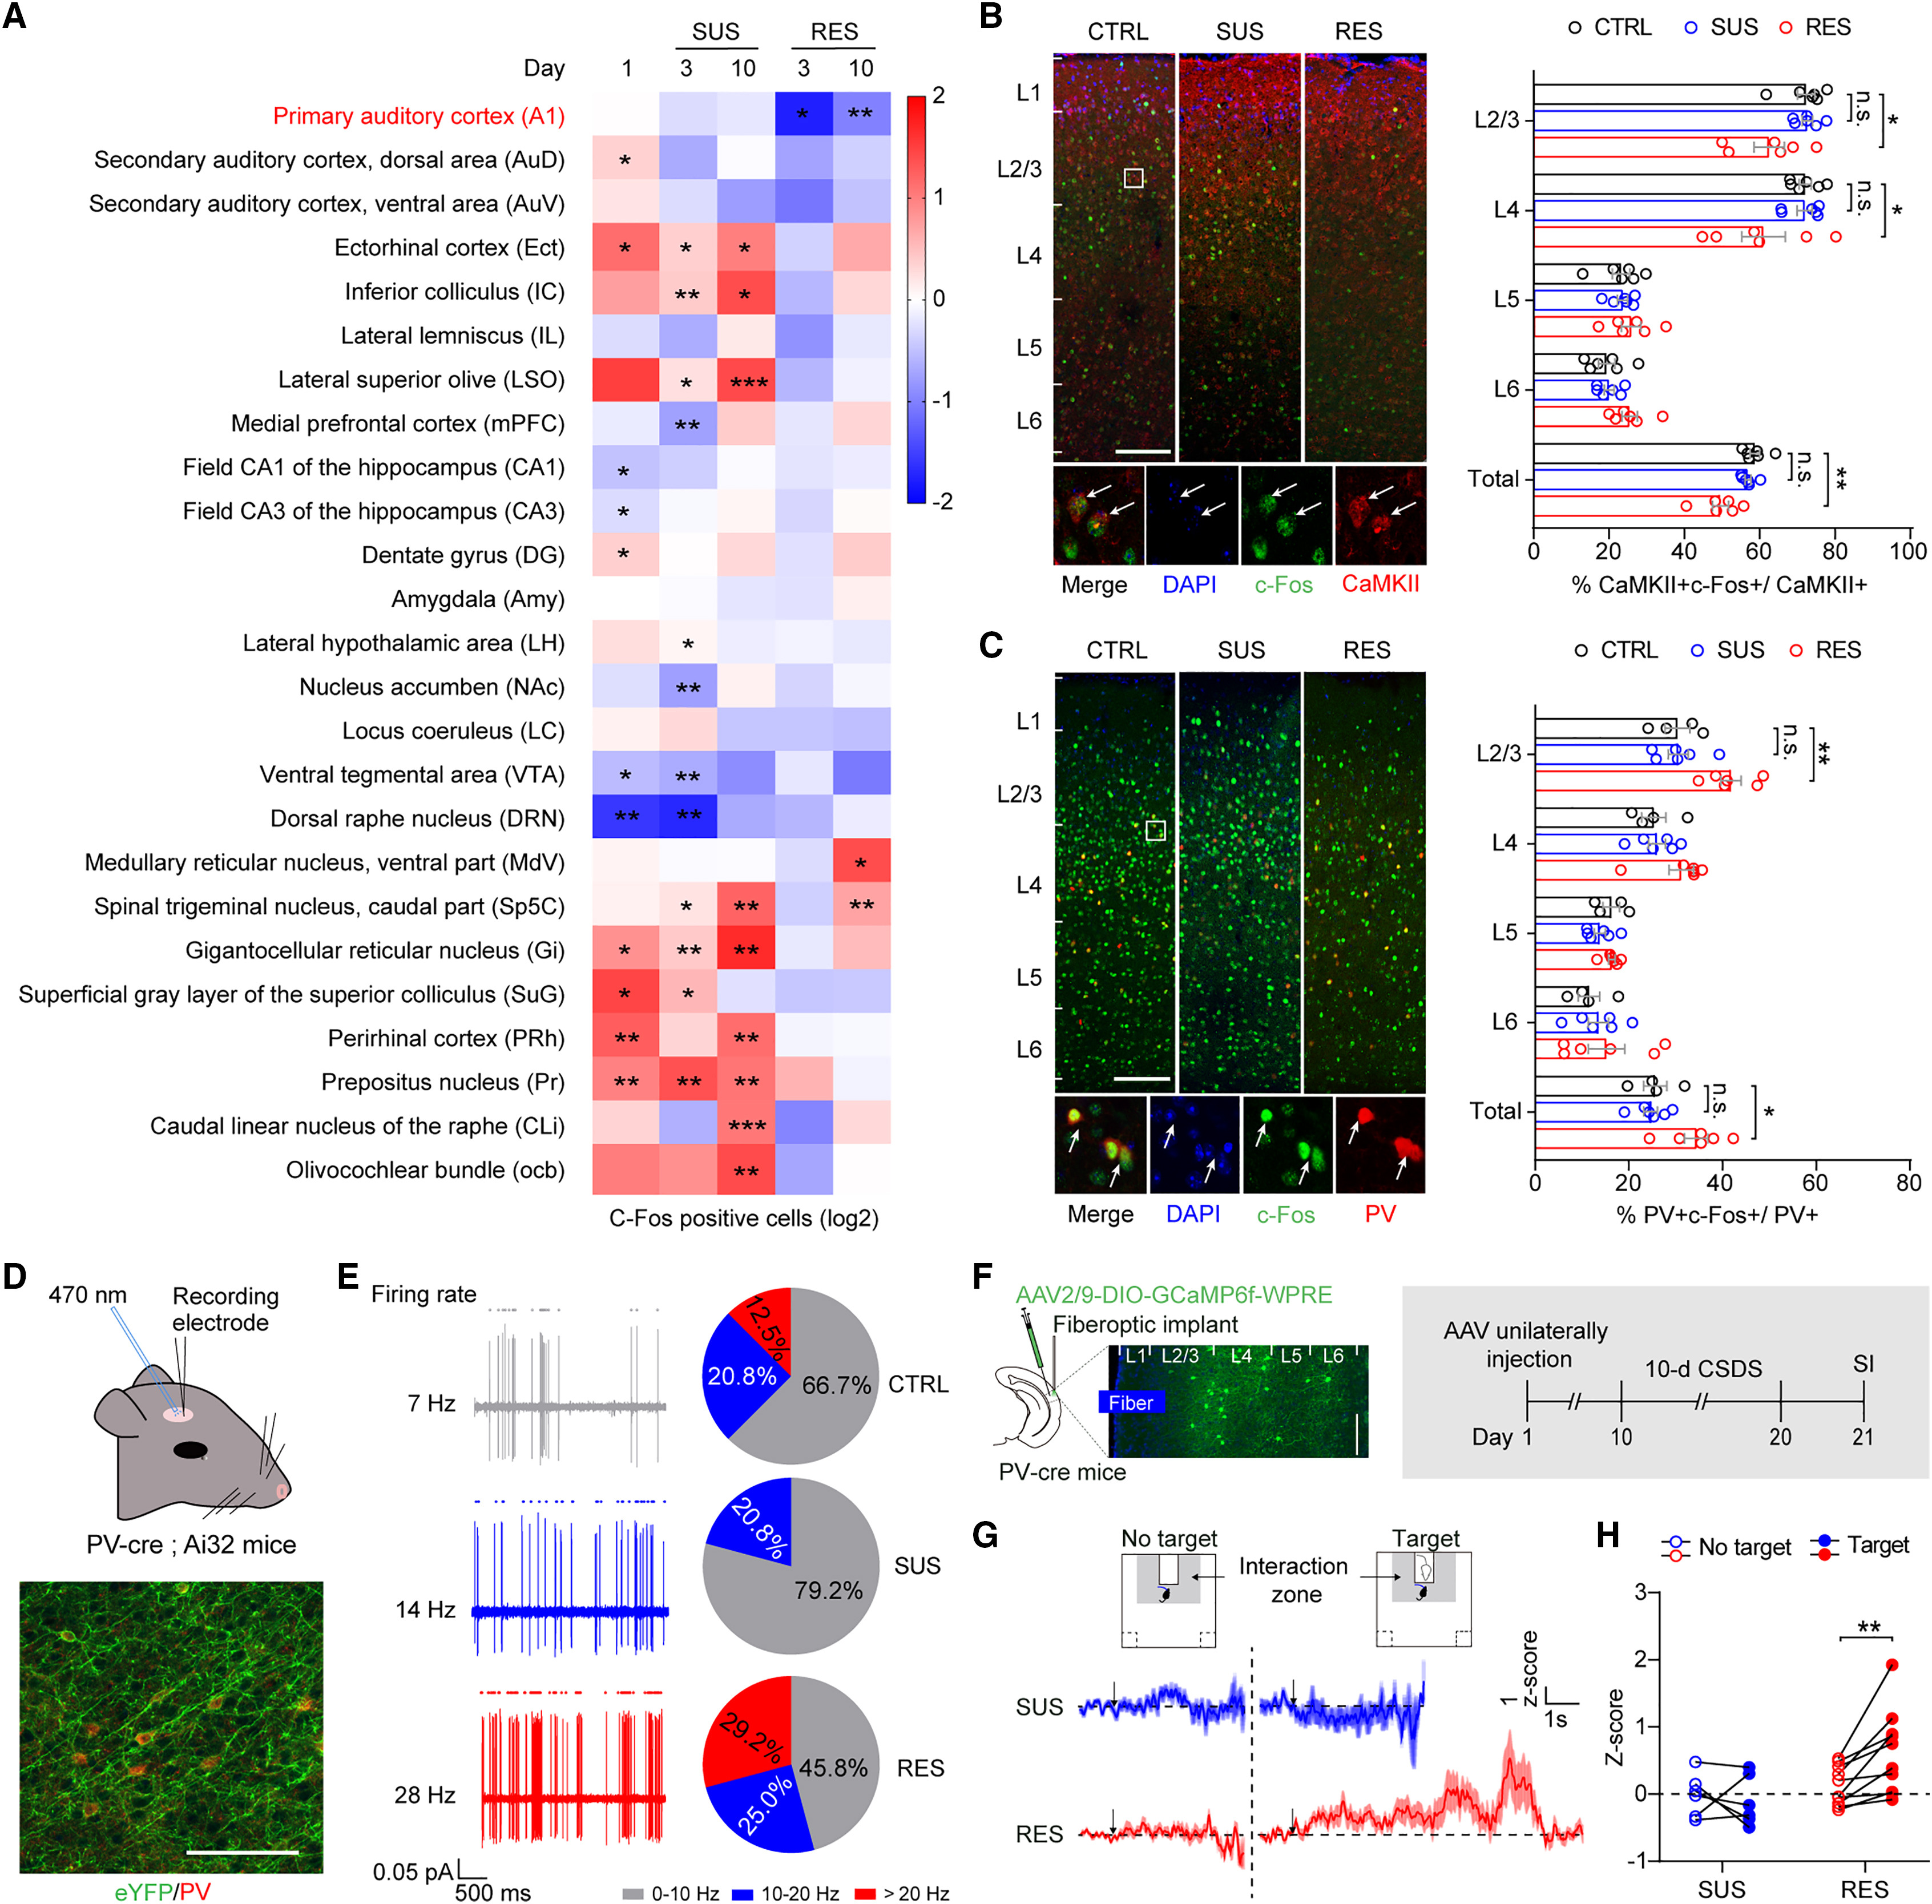
研究团队从舒缓声学暴露可经初级听觉皮层(A1)促进慢性社会挫败应激(CSDS)韧性切入(图1–2),对CSDS第1、3、10天的应激易感组(SUS)与应激韧性组(RES)雄性小鼠开展了涵盖21个脑区的c-Fos表达筛查与在体电生理分析。实验发现,在RES小鼠中,A1第2/3层与第4层CaMKII+兴奋性神经元的c-Fos共标率下降,而小清蛋白阳性中间神经元(PV-INs)的c-Fos共标率显著升高;在体光标签(opto-tagging)单单元记录与光纤钙记录证实,RES小鼠A1区PV-INs保持高达28 Hz的平均自发放电率(显著高于对照组的7 Hz与SUS组的14 Hz)并在社交互动时呈现强劲的钙信号响应。
药理学与化学遗传学操控(原论文图2A–J)进一步证实,在PV-Cre小鼠双侧A1中特异性损毁(taCasp3)或化学遗传学抑制(hM4Di)PV-INs,会使小鼠在阈下CSDS中大量转化为社交回避与强迫游泳不动时间延长等易感表型;反之,激活A1区的PV-INs(hM3Dq)则能改善SUS小鼠的社交回避与绝望样行为,确立了A1区PV中间神经元在抗应激心理韧性中的核心地位。
来源:Huan-Yu Li et al. · Cell · © Elsevier Inc.
查看原图与英文图注 ↗
狂犬病毒单突触逆行示踪锁定同侧内侧膝状体谷氨酸能神经元(MGA1)驱动A1 PV-INs
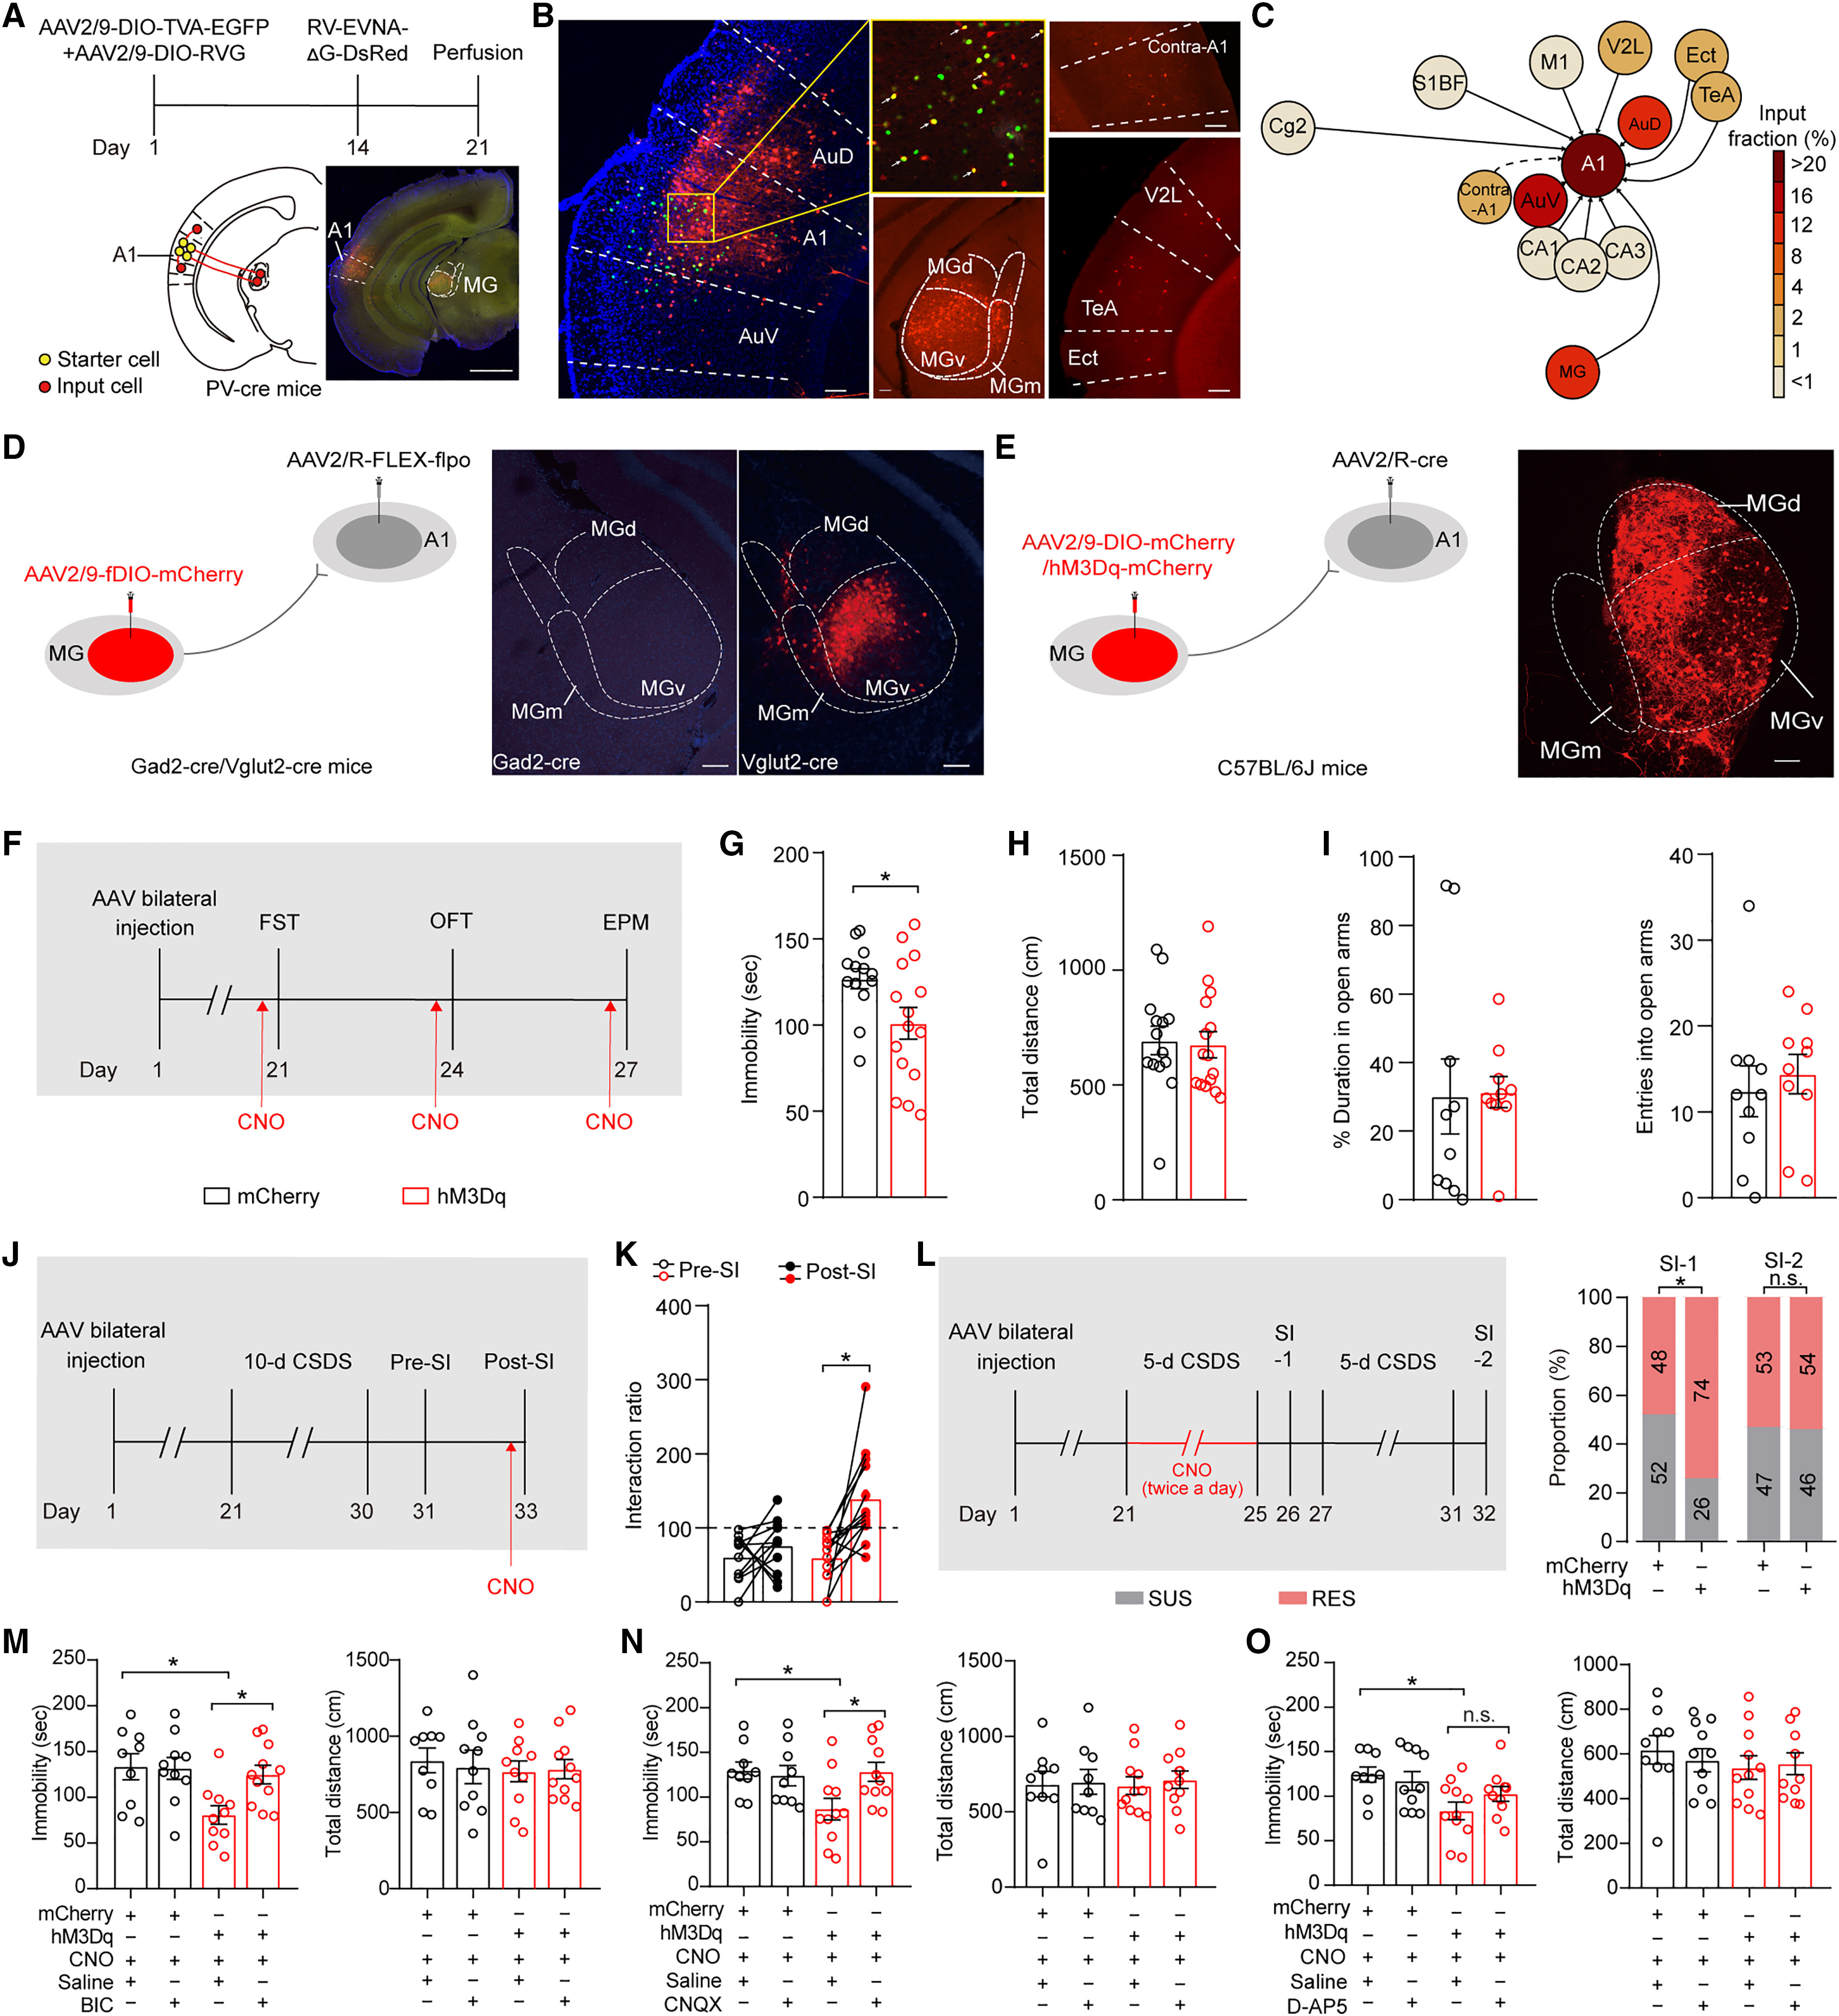
为查明RES小鼠中是什么上游输入维持了A1区PV-INs的兴奋性,研究团队在PV-Cre小鼠A1区注射AAV2/9-DIO-TVA-EGFP与AAV2/9-DIO-RVG,14天后注射RV-ENVA-ΔG-DsRed开展全脑单突触逆行示踪。全脑定量统计(Table S1)显示,除局部听觉皮层(A1占42.17±3.31%、AuV占16.69±1.00%、AuD占15.86±1.47%)外,同侧丘脑内侧膝状体(MG)是A1区PV-INs最主要的皮层下直接输入源,占全脑单突触输入总量的16.22±0.65%。
投射与顺行跨单突触操控实验(在MG注射AAV2/1-FLEX-flpo并在PV-Cre小鼠A1注射Flp依赖的fDIO-hM3Dq、hM4Di或taCasp3,原论文图4A–O)证实,投射至A1的MG谷氨酸能神经元(MGA1)直接驱动突触后A1MG-PV中间神经元:化学遗传学激活MGA1或突触后A1MG神经元不仅显著缩短强迫游泳不动时间、提升10天CSDS后的社交互动比并恢复6周慢性温和应激(CMS)的糖水偏好,还能在5天阈下CSDS中将韧性小鼠比例提升至73%–74%;而特异性消融A1MG-PV神经元(fDIO-taCasp3)或局部阻断A1受体则完全消除这一促韧性效应。
来源:Huan-Yu Li et al. · Cell · © Elsevier Inc.
查看原图与英文图注 ↗
单细胞转录组与三维突触重构揭示RES小鼠A1MG-PV神经元上调Gria2/Grip1并增加兴奋性突触输入
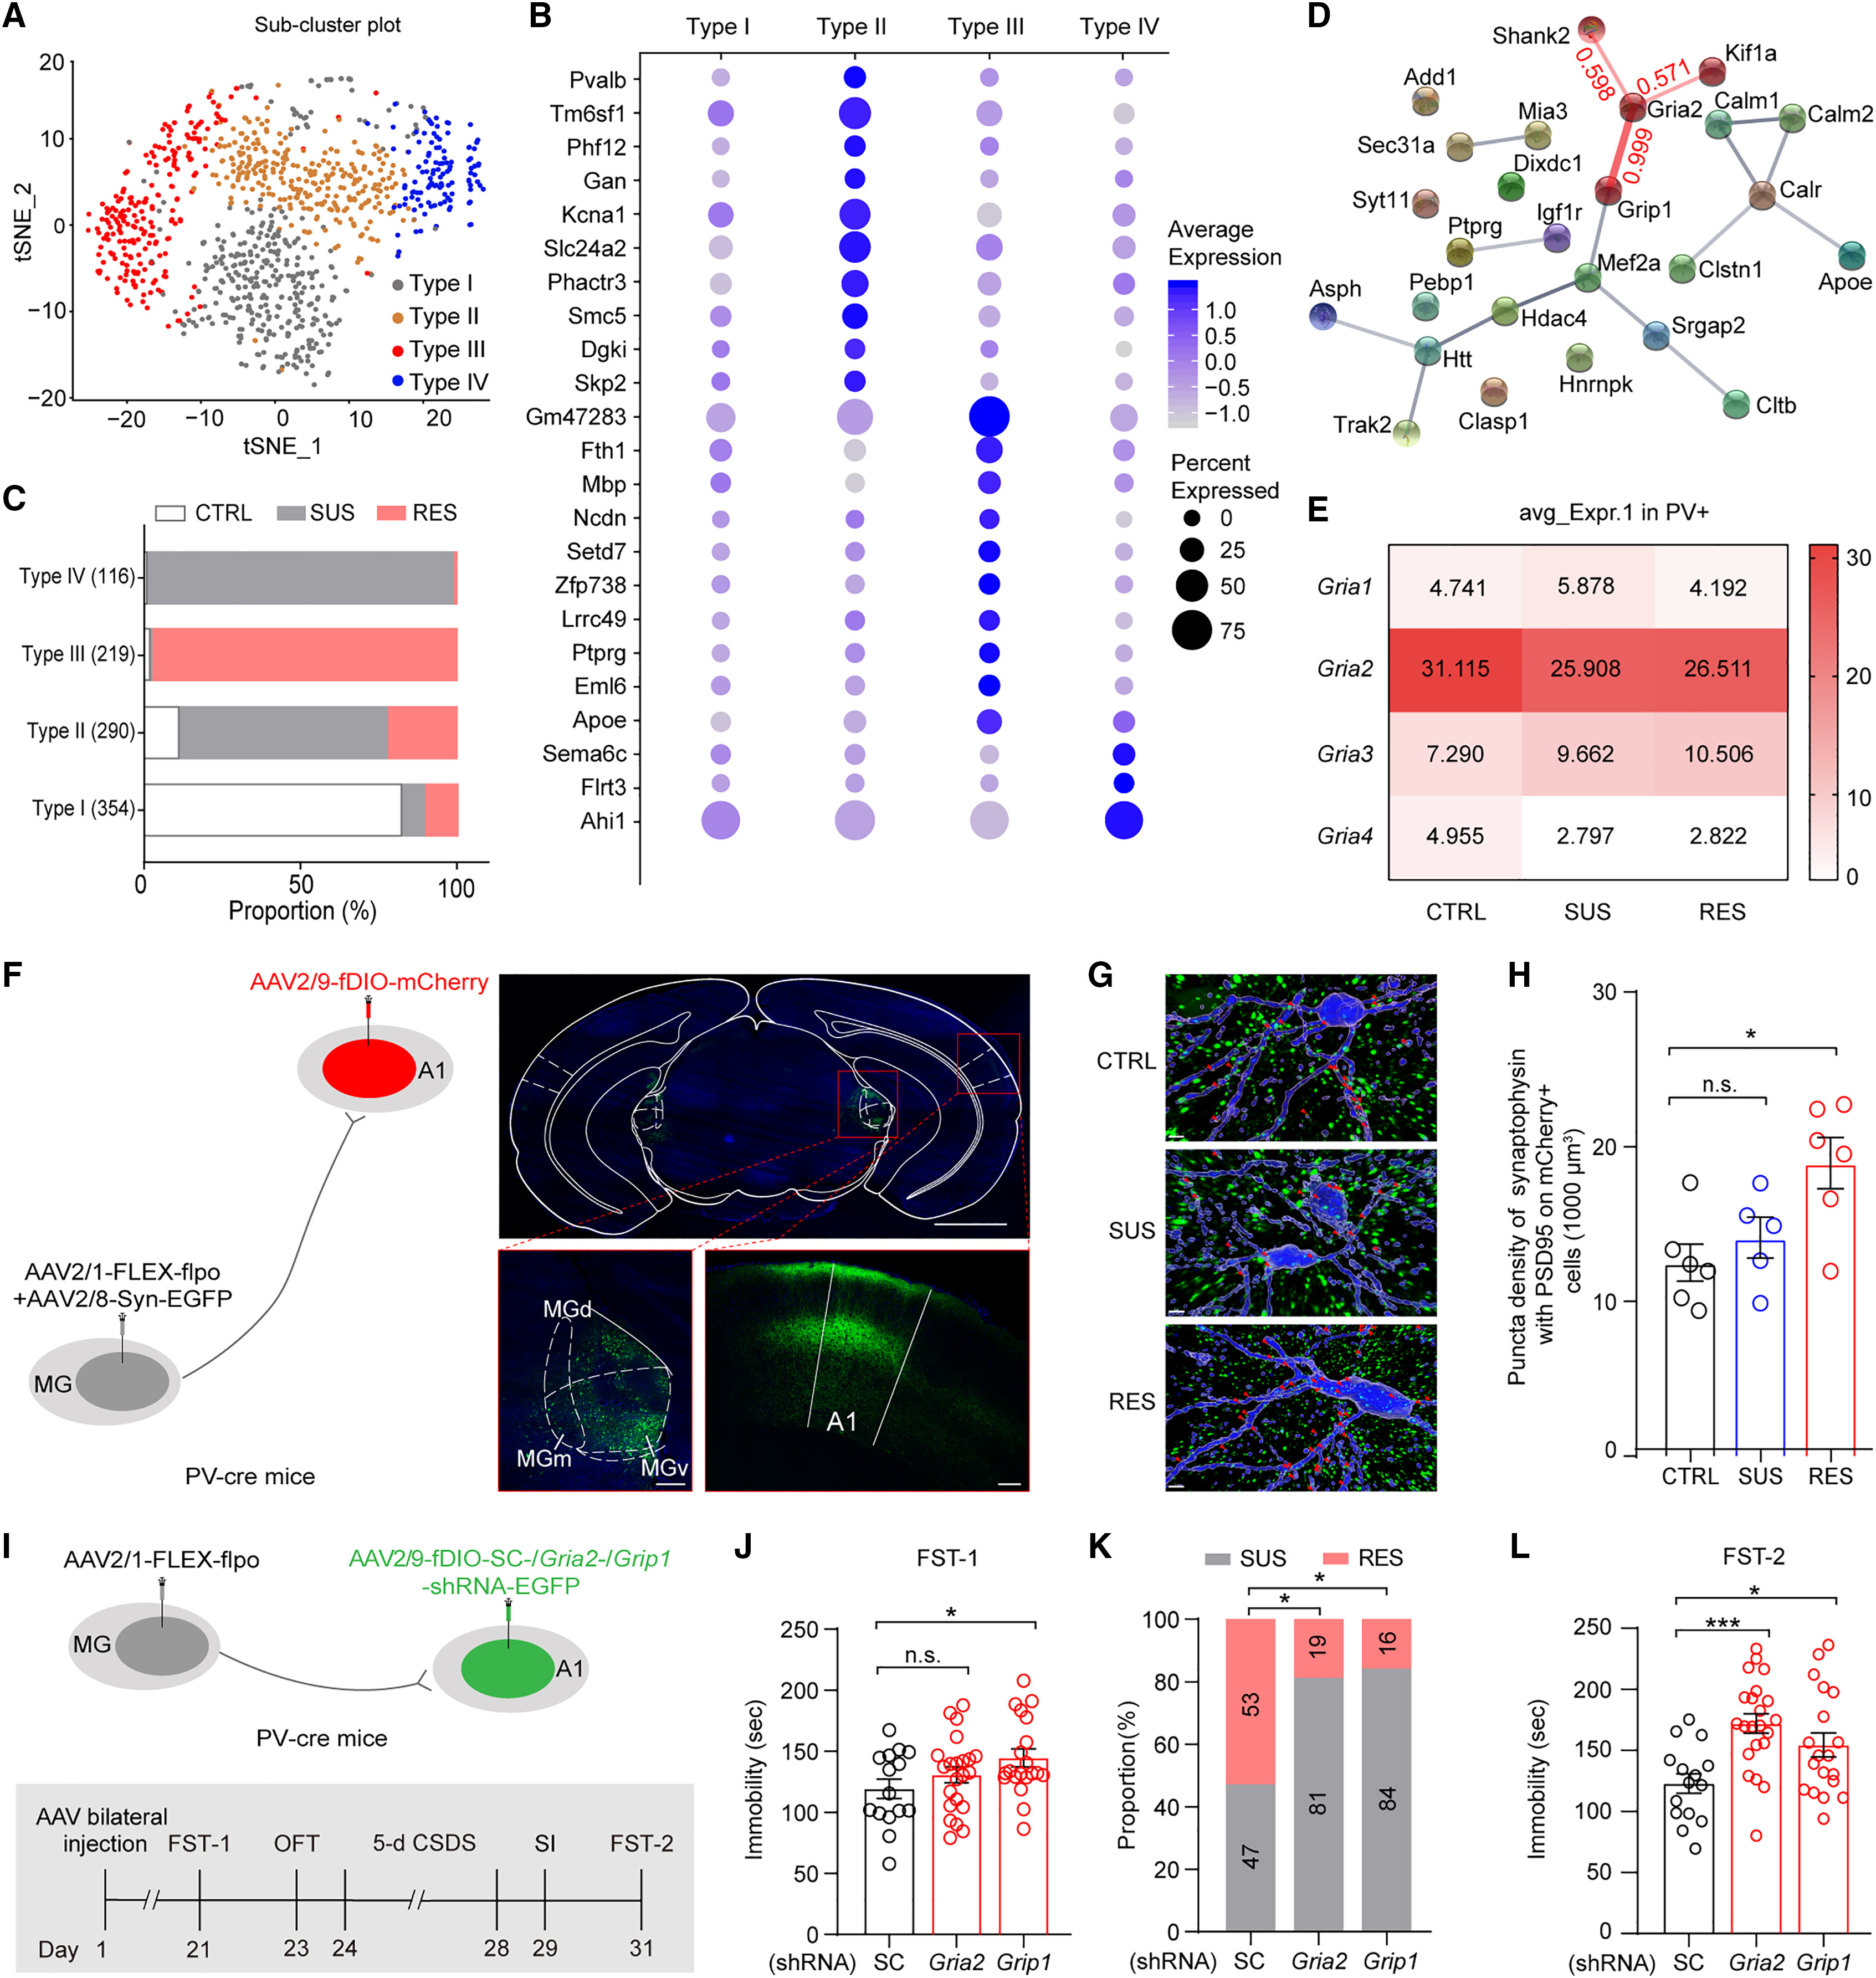
为查明RES小鼠A1区PV-INs维持高兴奋性的突触与分子基础,研究团队对分选自CTRL、SUS与RES小鼠A1区的PV+神经元开展了单细胞转录组测序(scRNA-seq)与基因本体(GO)富集分析(图5A–E,Table S2)。tSNE聚类鉴定出特异性富集于RES韧性小鼠的PV+转录亚群(Type III),蛋白互作网络显示AMPA受体亚基基因Gria2及其突触锚定蛋白基因Grip1在RES组PV+神经元中显著维持高表达。
三维突触重构(在MG注射AAV2/1-FLEX-flpo + AAV2/8-Syn-EGFP并在A1注射AAV2/9-fDIO-mCherry,图5F–H)证实,RES小鼠A1MG神经元树突上突触前Syn-EGFP与突触后PSD95共定位的兴奋性突触终扣密度显著高于CTRL与SUS组。利用Flp依赖的shRNA在A1MG神经元中特异性敲低Gria2或Grip1(图5I–L),使5天CSDS后的易感小鼠(SUS)比例从对照组的47%分别飙升至81%和84%,证实Gria2/Grip1介导的MG→A1PV兴奋性突触传递是抗应激韧性的必要条件。
来源:Huan-Yu Li et al. · Cell · © Elsevier Inc.
查看原图与英文图注 ↗
CSDS身体攻击期MGA1神经元短时超极化增强随后主动社交趋近的环路激活,光遗传模拟该模式唤醒抗压韧性
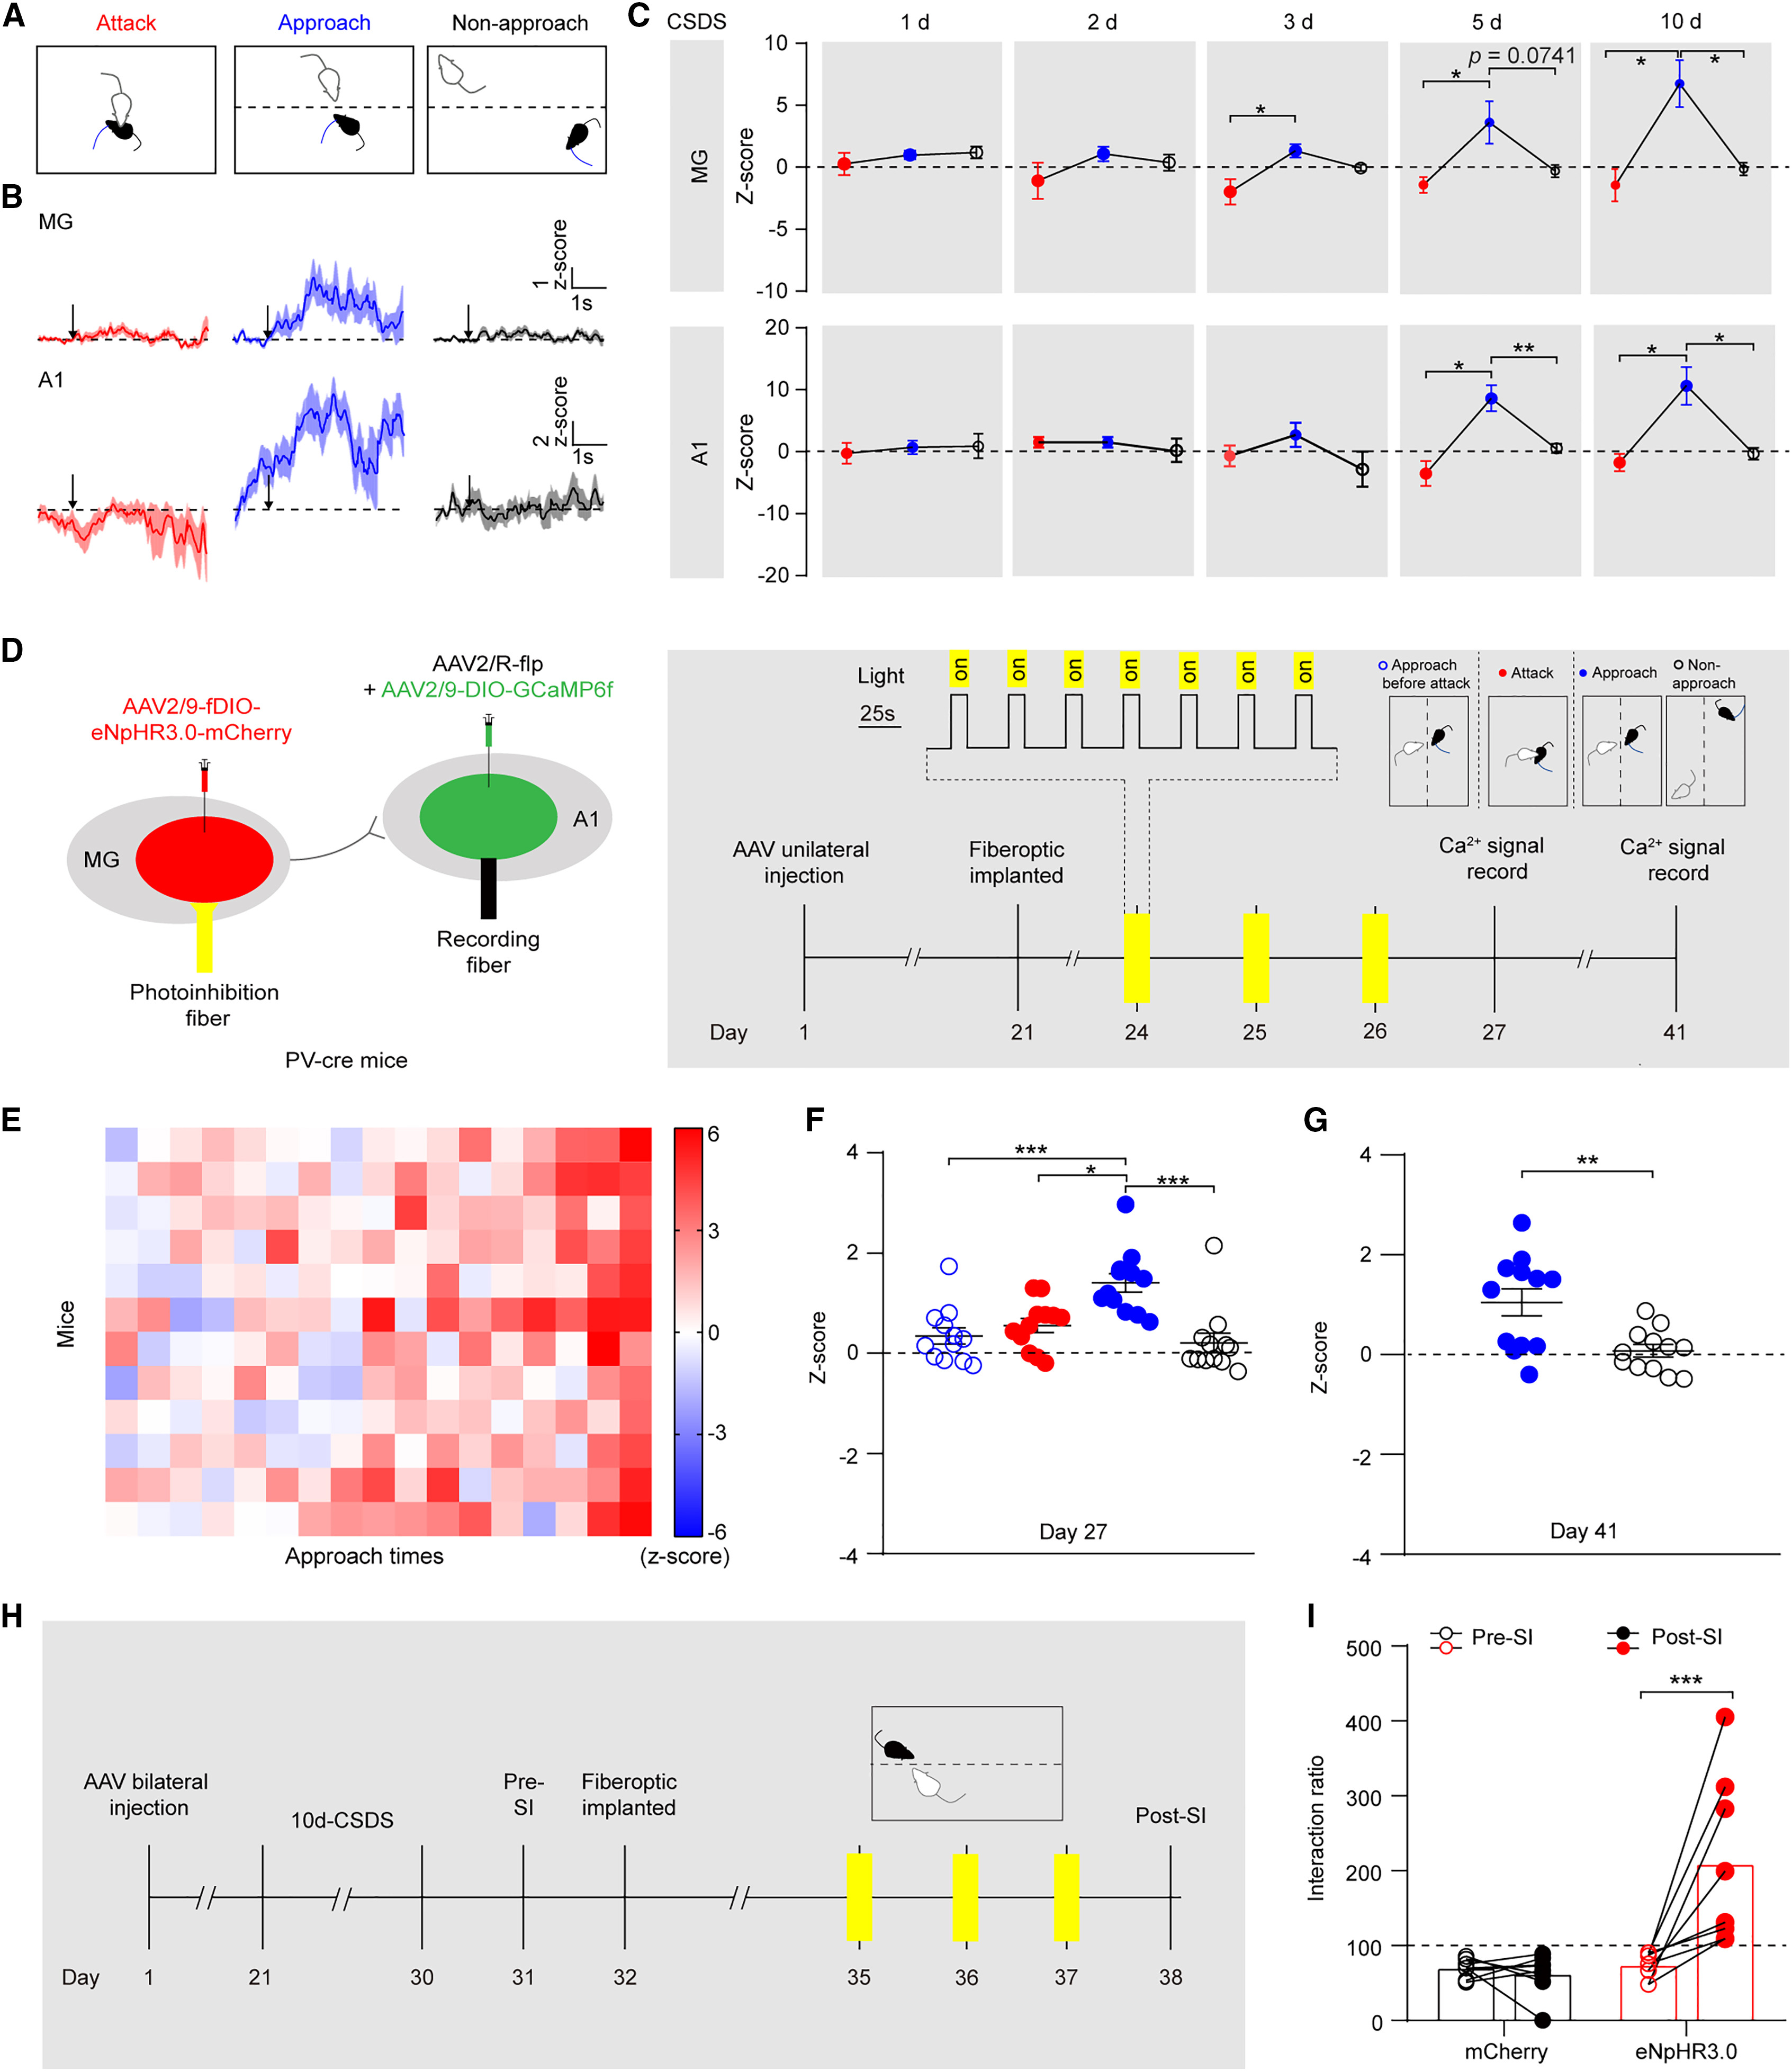
尽管单纯化学遗传学激活MGA1神经元能在给药当期产生抗抑郁样作用,但停药后效应消退,无法解释天然韧性小鼠持久的抗应激能力。研究团队在CSDS第1至10天的身体攻击期(Attack,5分钟)及隔板隔离期的主动社交趋近(Approach)过程中开展纵向光纤钙记录与电生理追踪(图6A–C)。结果显示,在早期挫败攻击(Attack)期间,未来发展为RES的小鼠其MGA1神经元表现出特征性的短时超极化(钙信号与放电短暂降低),随后在主动社交趋近(Approach)期间爆发强烈的MGA1与A1PV钙信号激活。
基于这一时间动态特征,研究团队利用闭环光遗传学在身体攻击期(或每日短时时间窗)对MG→A1通路施加eNpHR3.0光抑制以精准模拟“短时超极化”模式(图6D–I)。实验证实,攻击期短时超极化显著放大了随后主动趋近期的钙信号响应,直接唤醒内源性韧性程序,在CSDS等多种模型中产生持久的抗抑郁样效应。
来源:Huan-Yu Li et al. · Cell · © Elsevier Inc.
查看原图与英文图注 ↗
MGA1短时超极化触发A1源性BDNF逆行激活突触前TrkB受体,驱动MG→A1PV突触新生与持久心理韧性
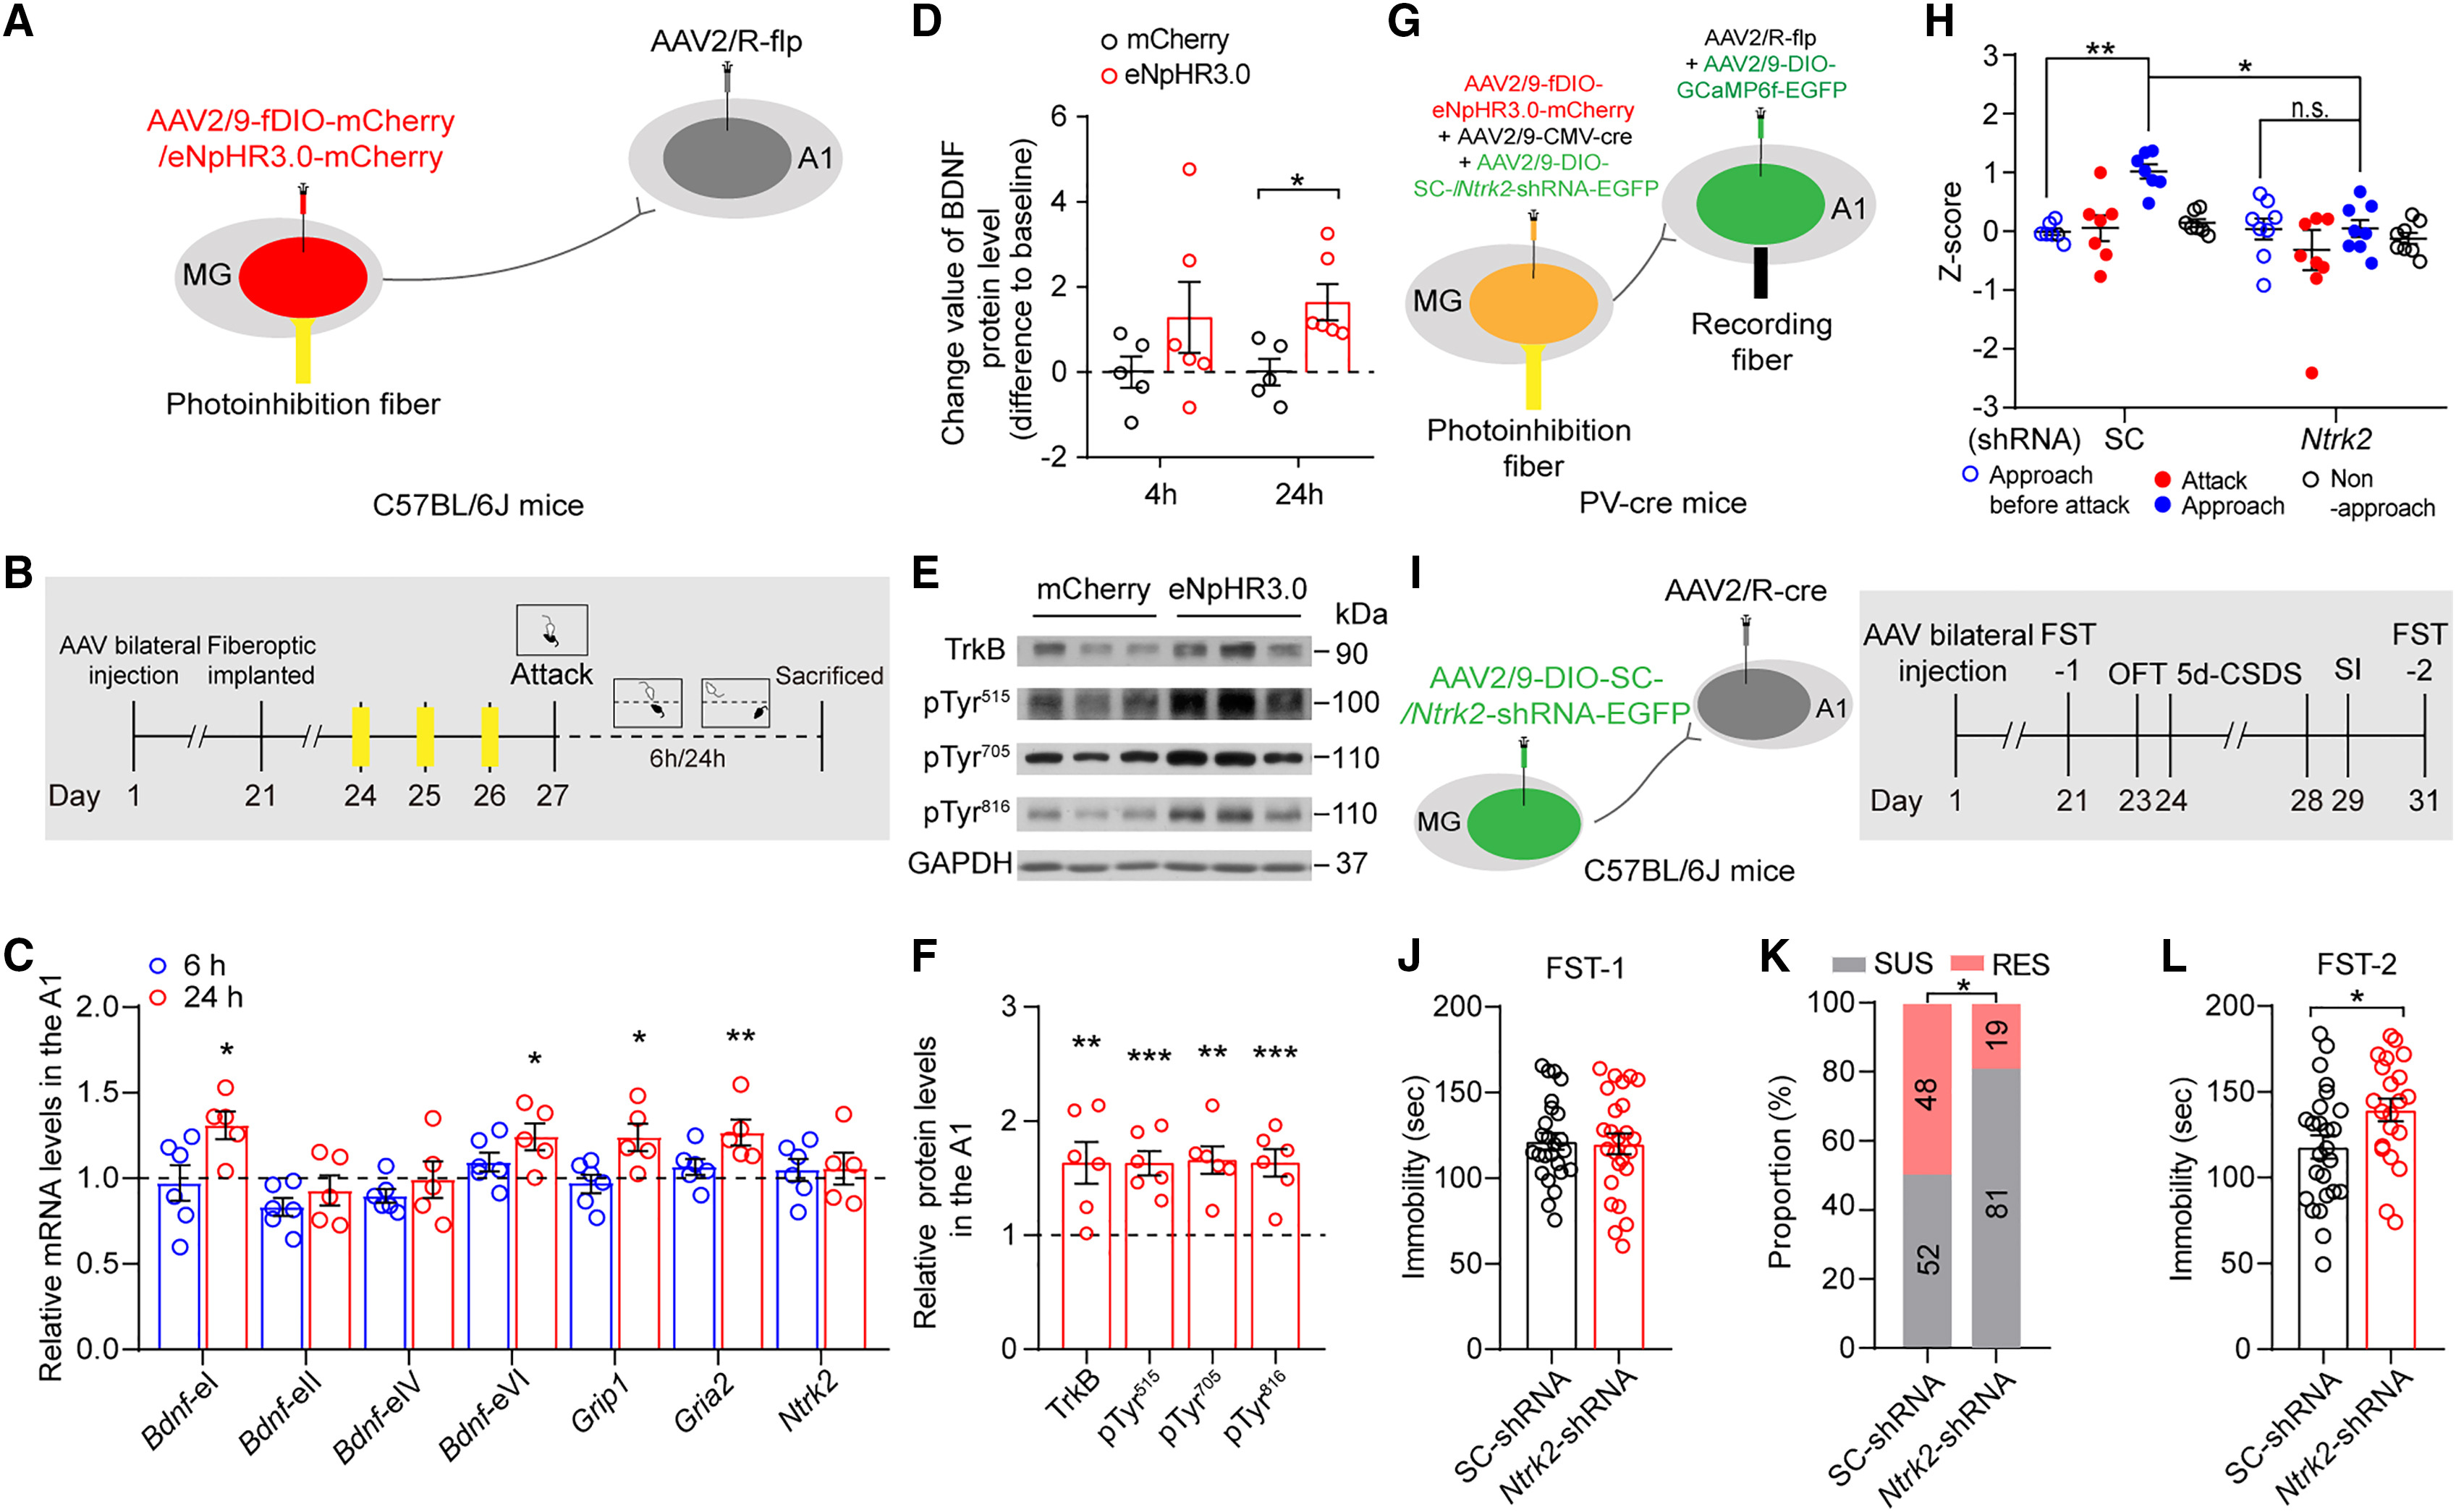
MGA1神经元的短时超极化如何转化为MG→A1PV通路的持久突触强化?分子与生化分析(图7A–F)揭示,MGA1短时超极化与随后的主动社交趋近显著上调了A1区脑源性神经营养因子转录本(Bdnf-eI/eVI)与蛋白释放,并激活MGA1轴突末梢上的酪氨酸激酶受体B(TrkB,表现为pTyr515、pTyr705与pTyr816磷酸化水平升高),进而上调A1MG-PV神经元中Gria2与Grip1表达并驱动新生兴奋性突触形成。
在MGA1投射神经元中利用逆行Cre配合AAV-DIO-Ntrk2-shRNA特异性敲低突触前TrkB受体(图7G–L),不仅阻断了Syn-EGFP+/PSD95+新生兴奋性突触形成及Gria2/Grip1上调,还完全消除了短时超极化光遗传干预所诱导的持久抗应激韧性。该研究完整阐明了“早期短时超极化 → 突触前BDNF-TrkB激活 → MG→A1PV突触新生 → 内源性心理韧性”的跨核团可塑性机制。
来源:Huan-Yu Li et al. · Cell · © Elsevier Inc.
查看原图与英文图注 ↗