海马中的位置编码,放电多就代表信息多吗?
同走一条路线,两类海马细胞的放电方式却不同。小鼠研究发现,一类位置细胞的每次放电携带更多空间信息,而清醒和睡眠又显露出各自的时间分工。
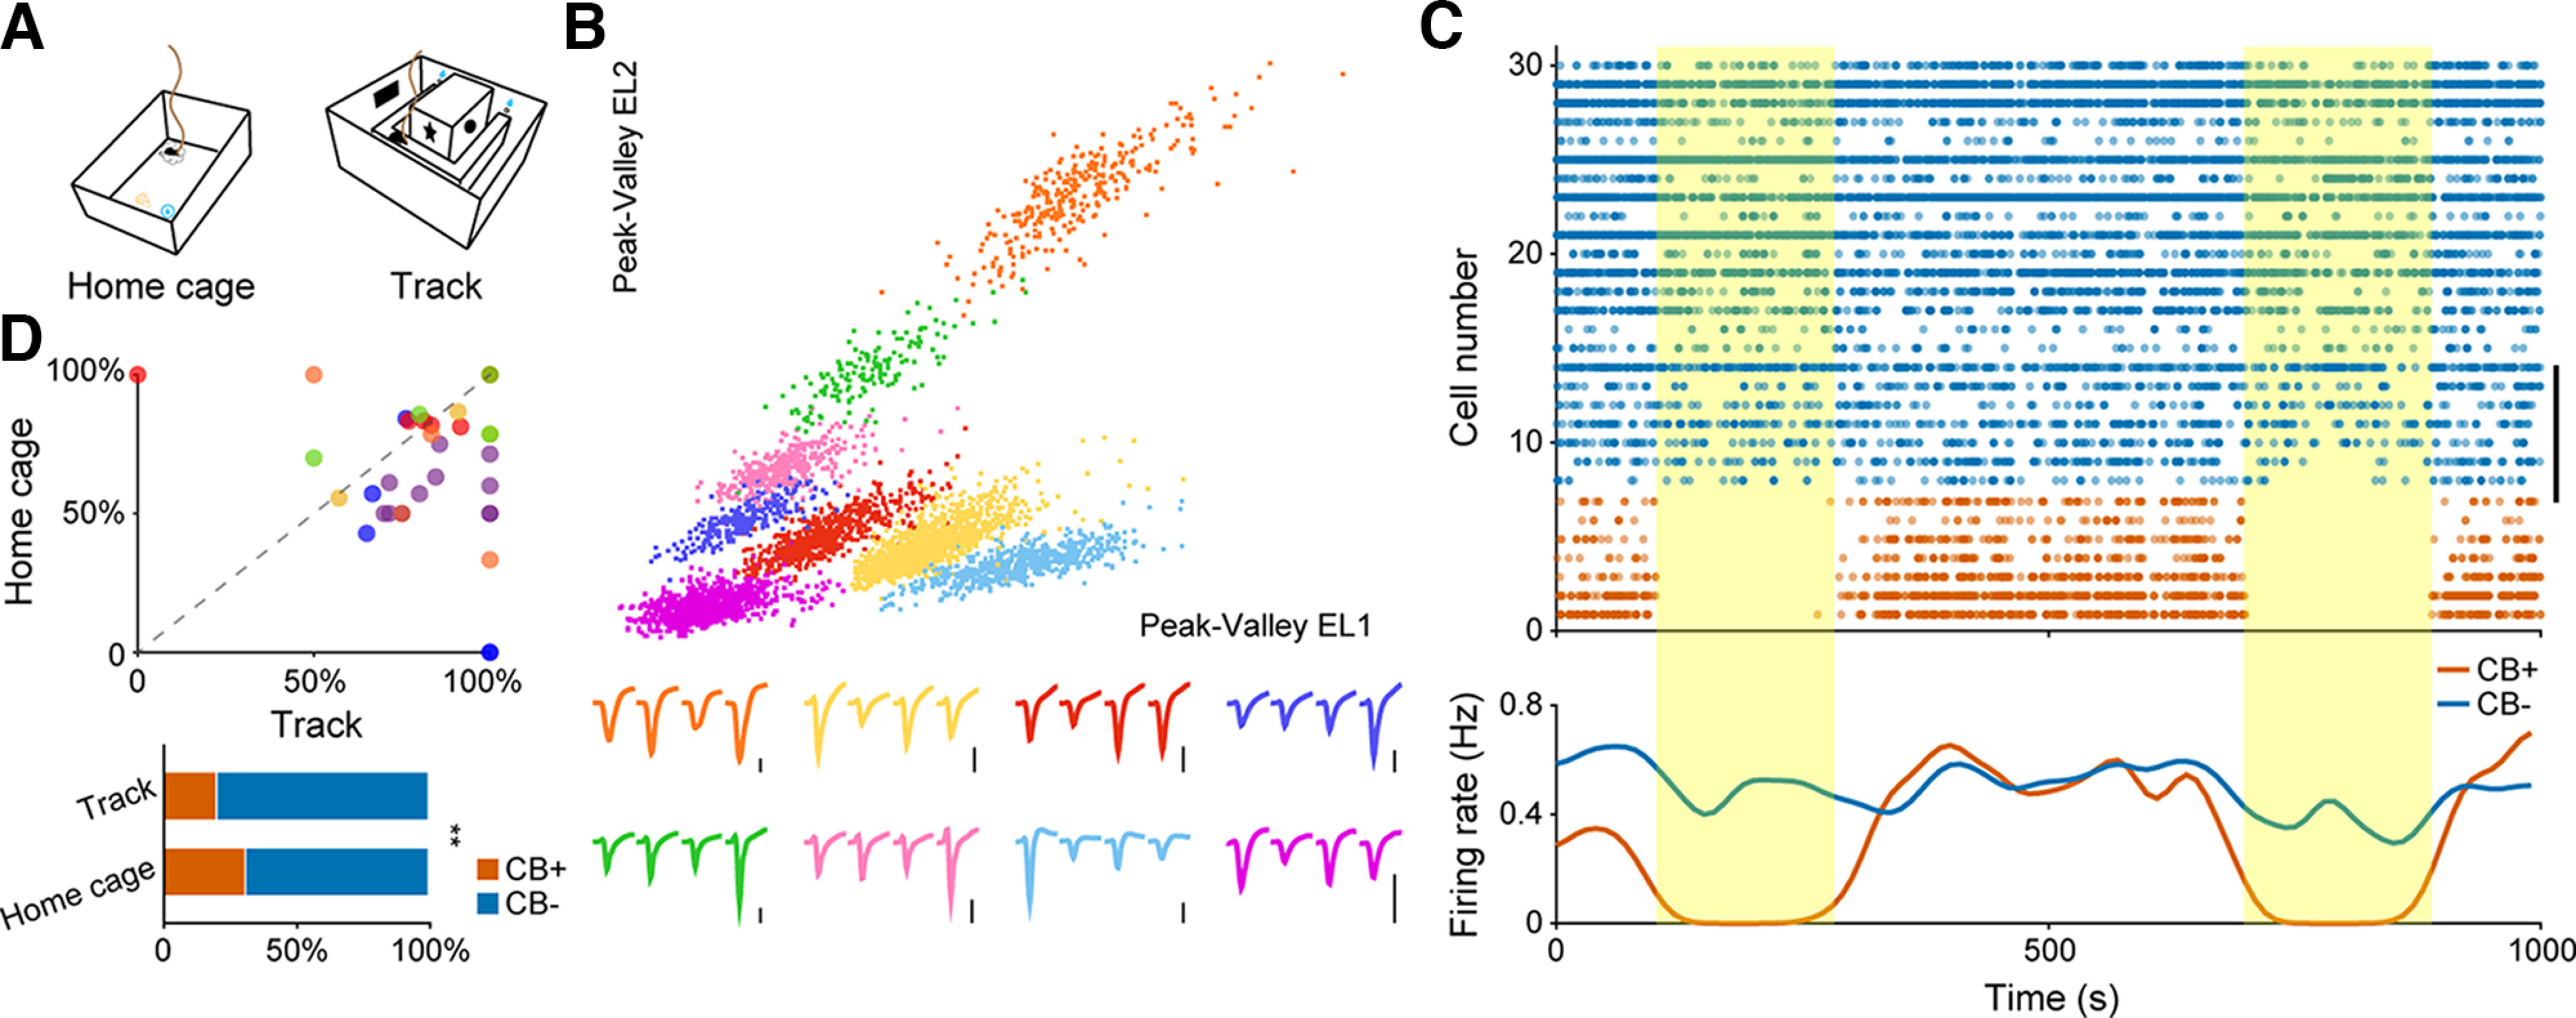
小鼠沿着轨道往返时,海马中的位置细胞会在特定地点更活跃。但如果一类细胞放电更多,它就一定把位置表达得更清楚吗?2023年3月14日发表于 eNeuro 的研究,按照钙结合蛋白Calbindin的表达,将CA1锥体细胞分成两群,比较它们在奔跑和睡眠中的活动。结果发现,平均活动高低与单次放电的信息量,并不是一回事。进入睡眠后,两群细胞与脑内节律的配合也继续分化,呈现出比“哪一群更活跃”更丰富的编码图景。
Calbindin阳性位置细胞的单次放电携带更多空间信息,但每秒信息量未显著增加。两类细胞在REM期θ调制强度,以及慢波睡眠涟漪事件中的时序与参与方式上也有差别,支持海马锥体细胞内部的功能分化。
阅读目录 · 7个部分
同为锥体细胞,也有不同的活动面貌
研究比较Calbindin阳性与阴性的CA1锥体细胞,简称CB阳性和CB阴性。小鼠既在熟悉环境中休息,也在U形轨道上往返。研究把细胞放电与行为、局部脑电放在一起,区分奔跑、慢波睡眠和快速眼动睡眠中的活动。
这里的Calbindin首先是一种识别细胞群的标记。研究利用标记相关的活动响应帮助分类,随后比较两群细胞的编码特征;它并没有直接证明,改变Calbindin蛋白本身就会改变位置记忆。细胞的位置与输入连接,也可能参与形成群体差别。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
奔跑时放电较少,睡眠时平均频率接近
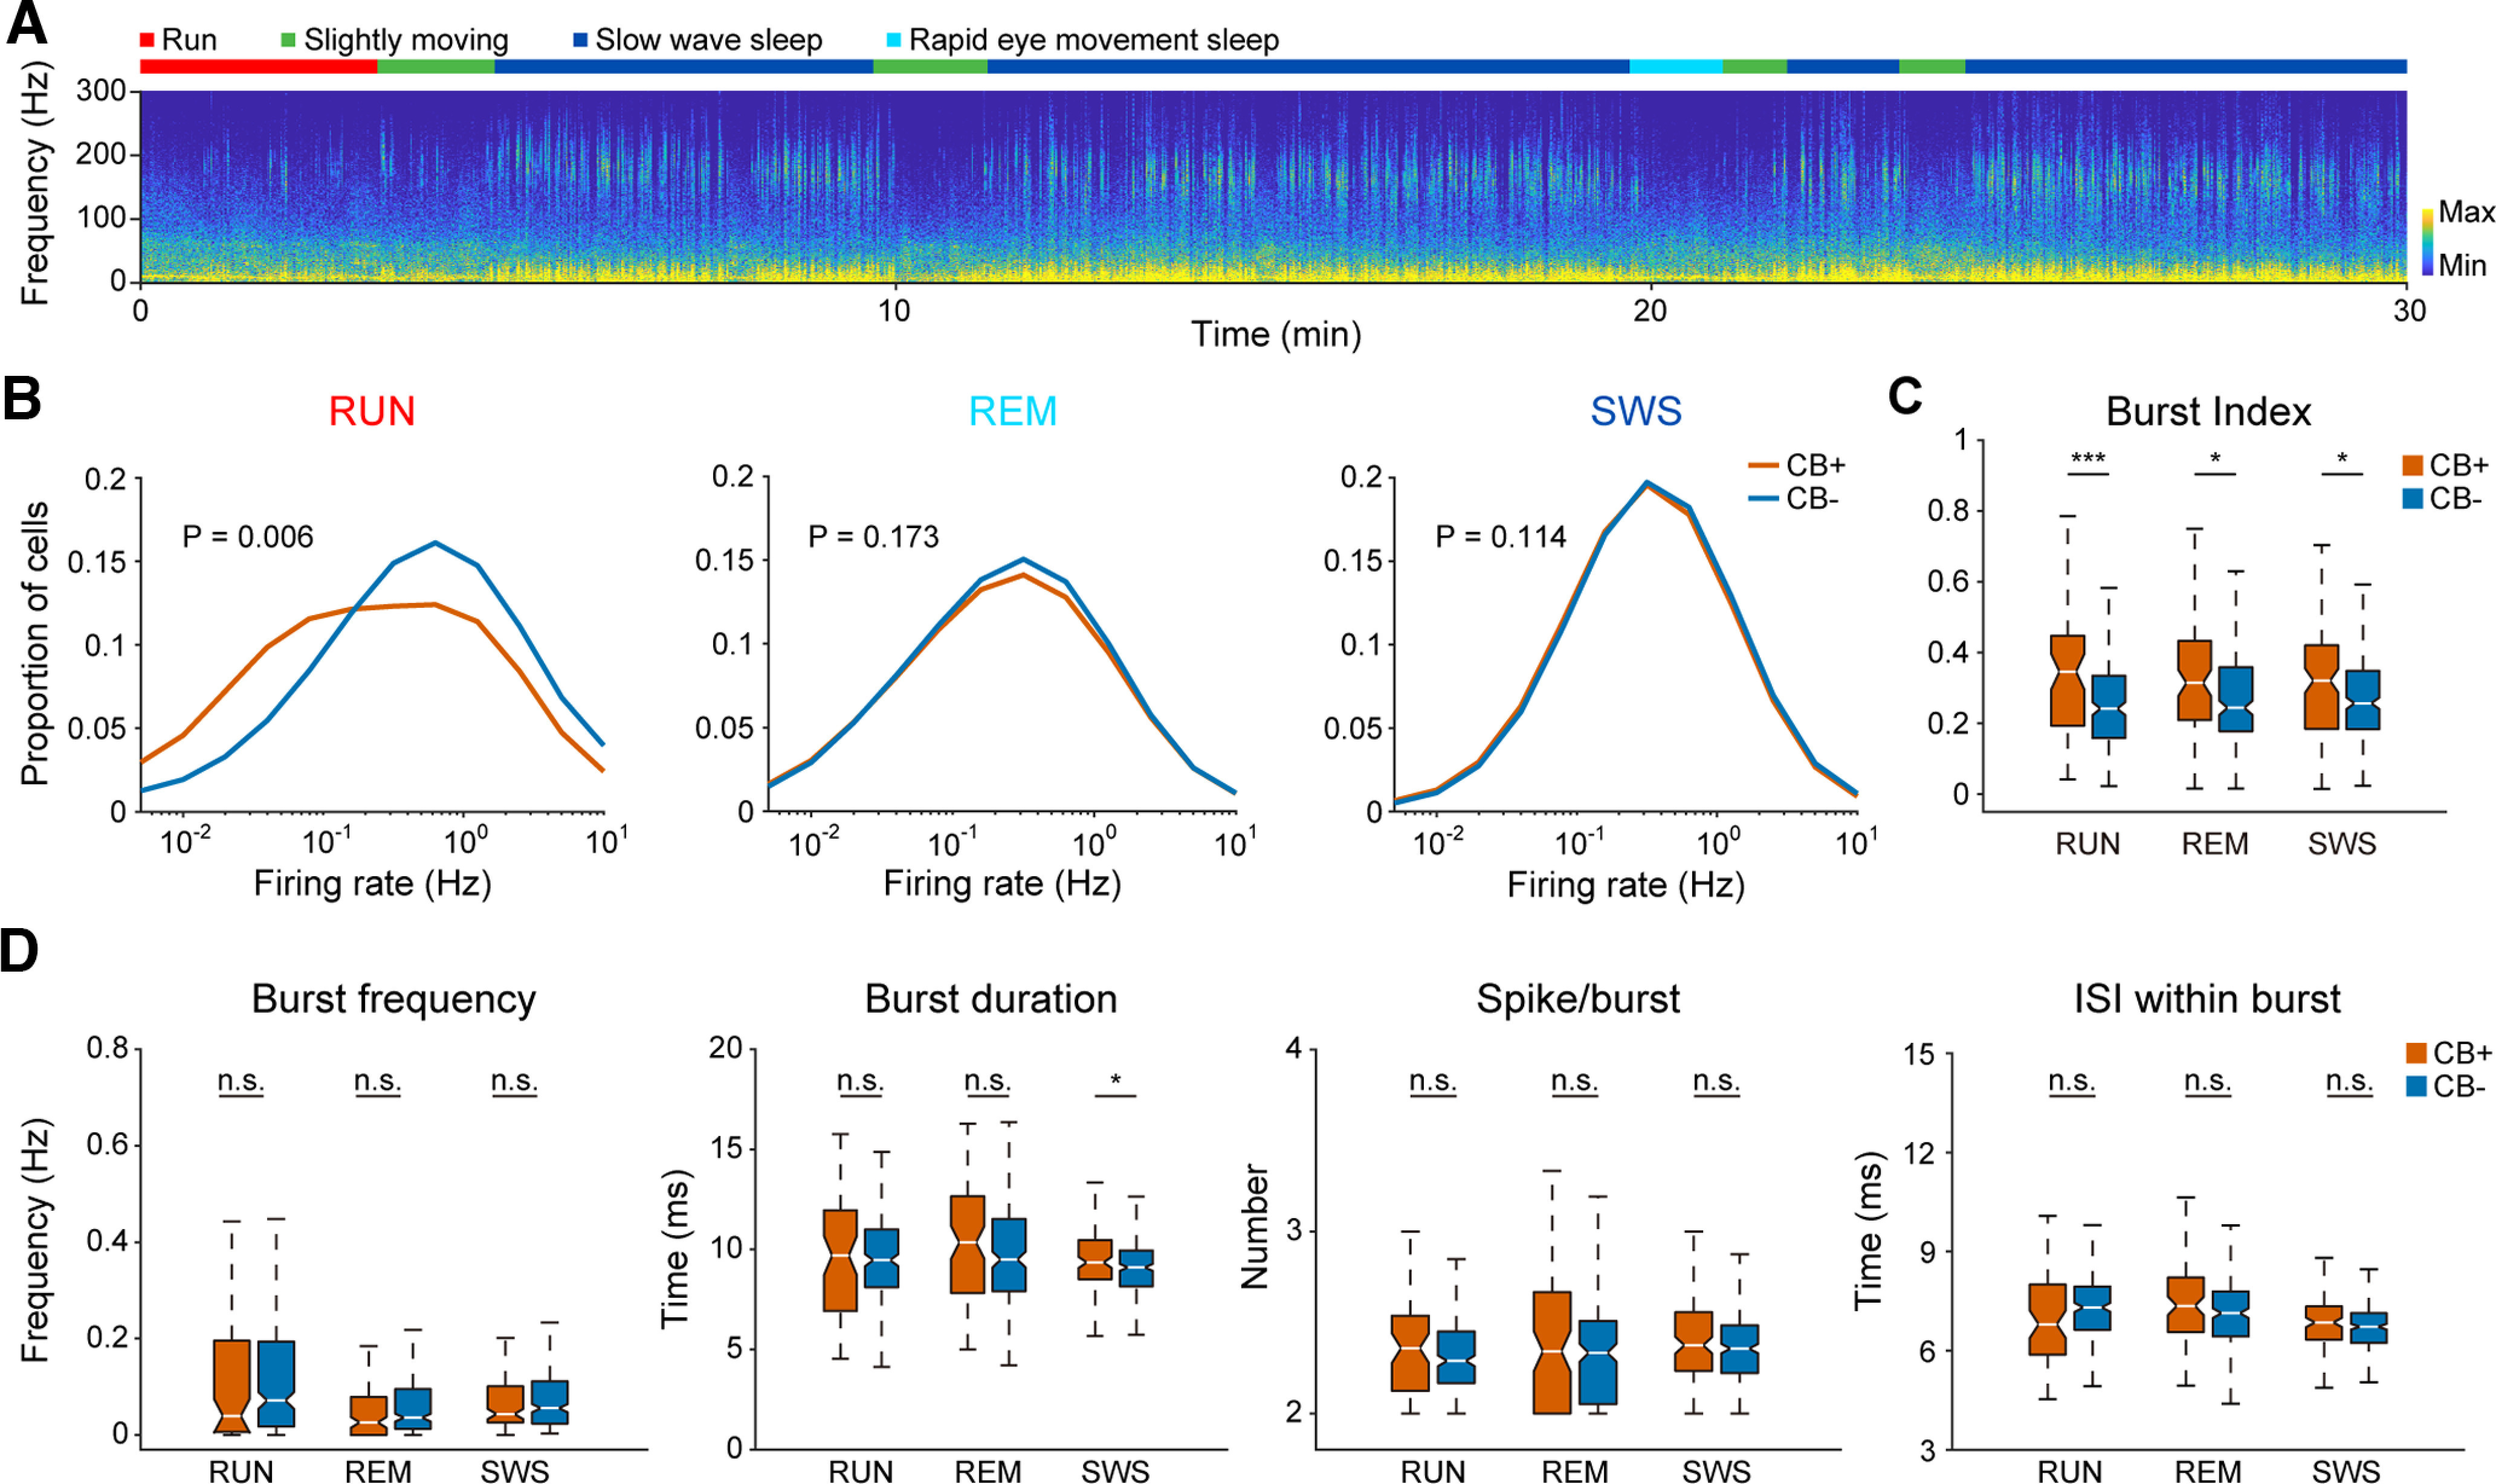
奔跑过程中,CB阴性细胞的平均放电频率高于CB阳性细胞;到了REM和慢波睡眠,这种平均频率差异没有达到显著。与此同时,CB阳性细胞在三个状态中的簇状放电指数都更高,说明放电的组织方式与总频率可以呈现不同关系。
簇状放电的多个细节并没有一起改变:发生频率、每簇脉冲数和簇内间隔等大多未见显著差别,较明确的持续时间差异出现在慢波睡眠。一个指数的升高,并不意味着所有放电特征都朝同一方向增强。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
每次放电的信息量,比总次数更耐人寻味
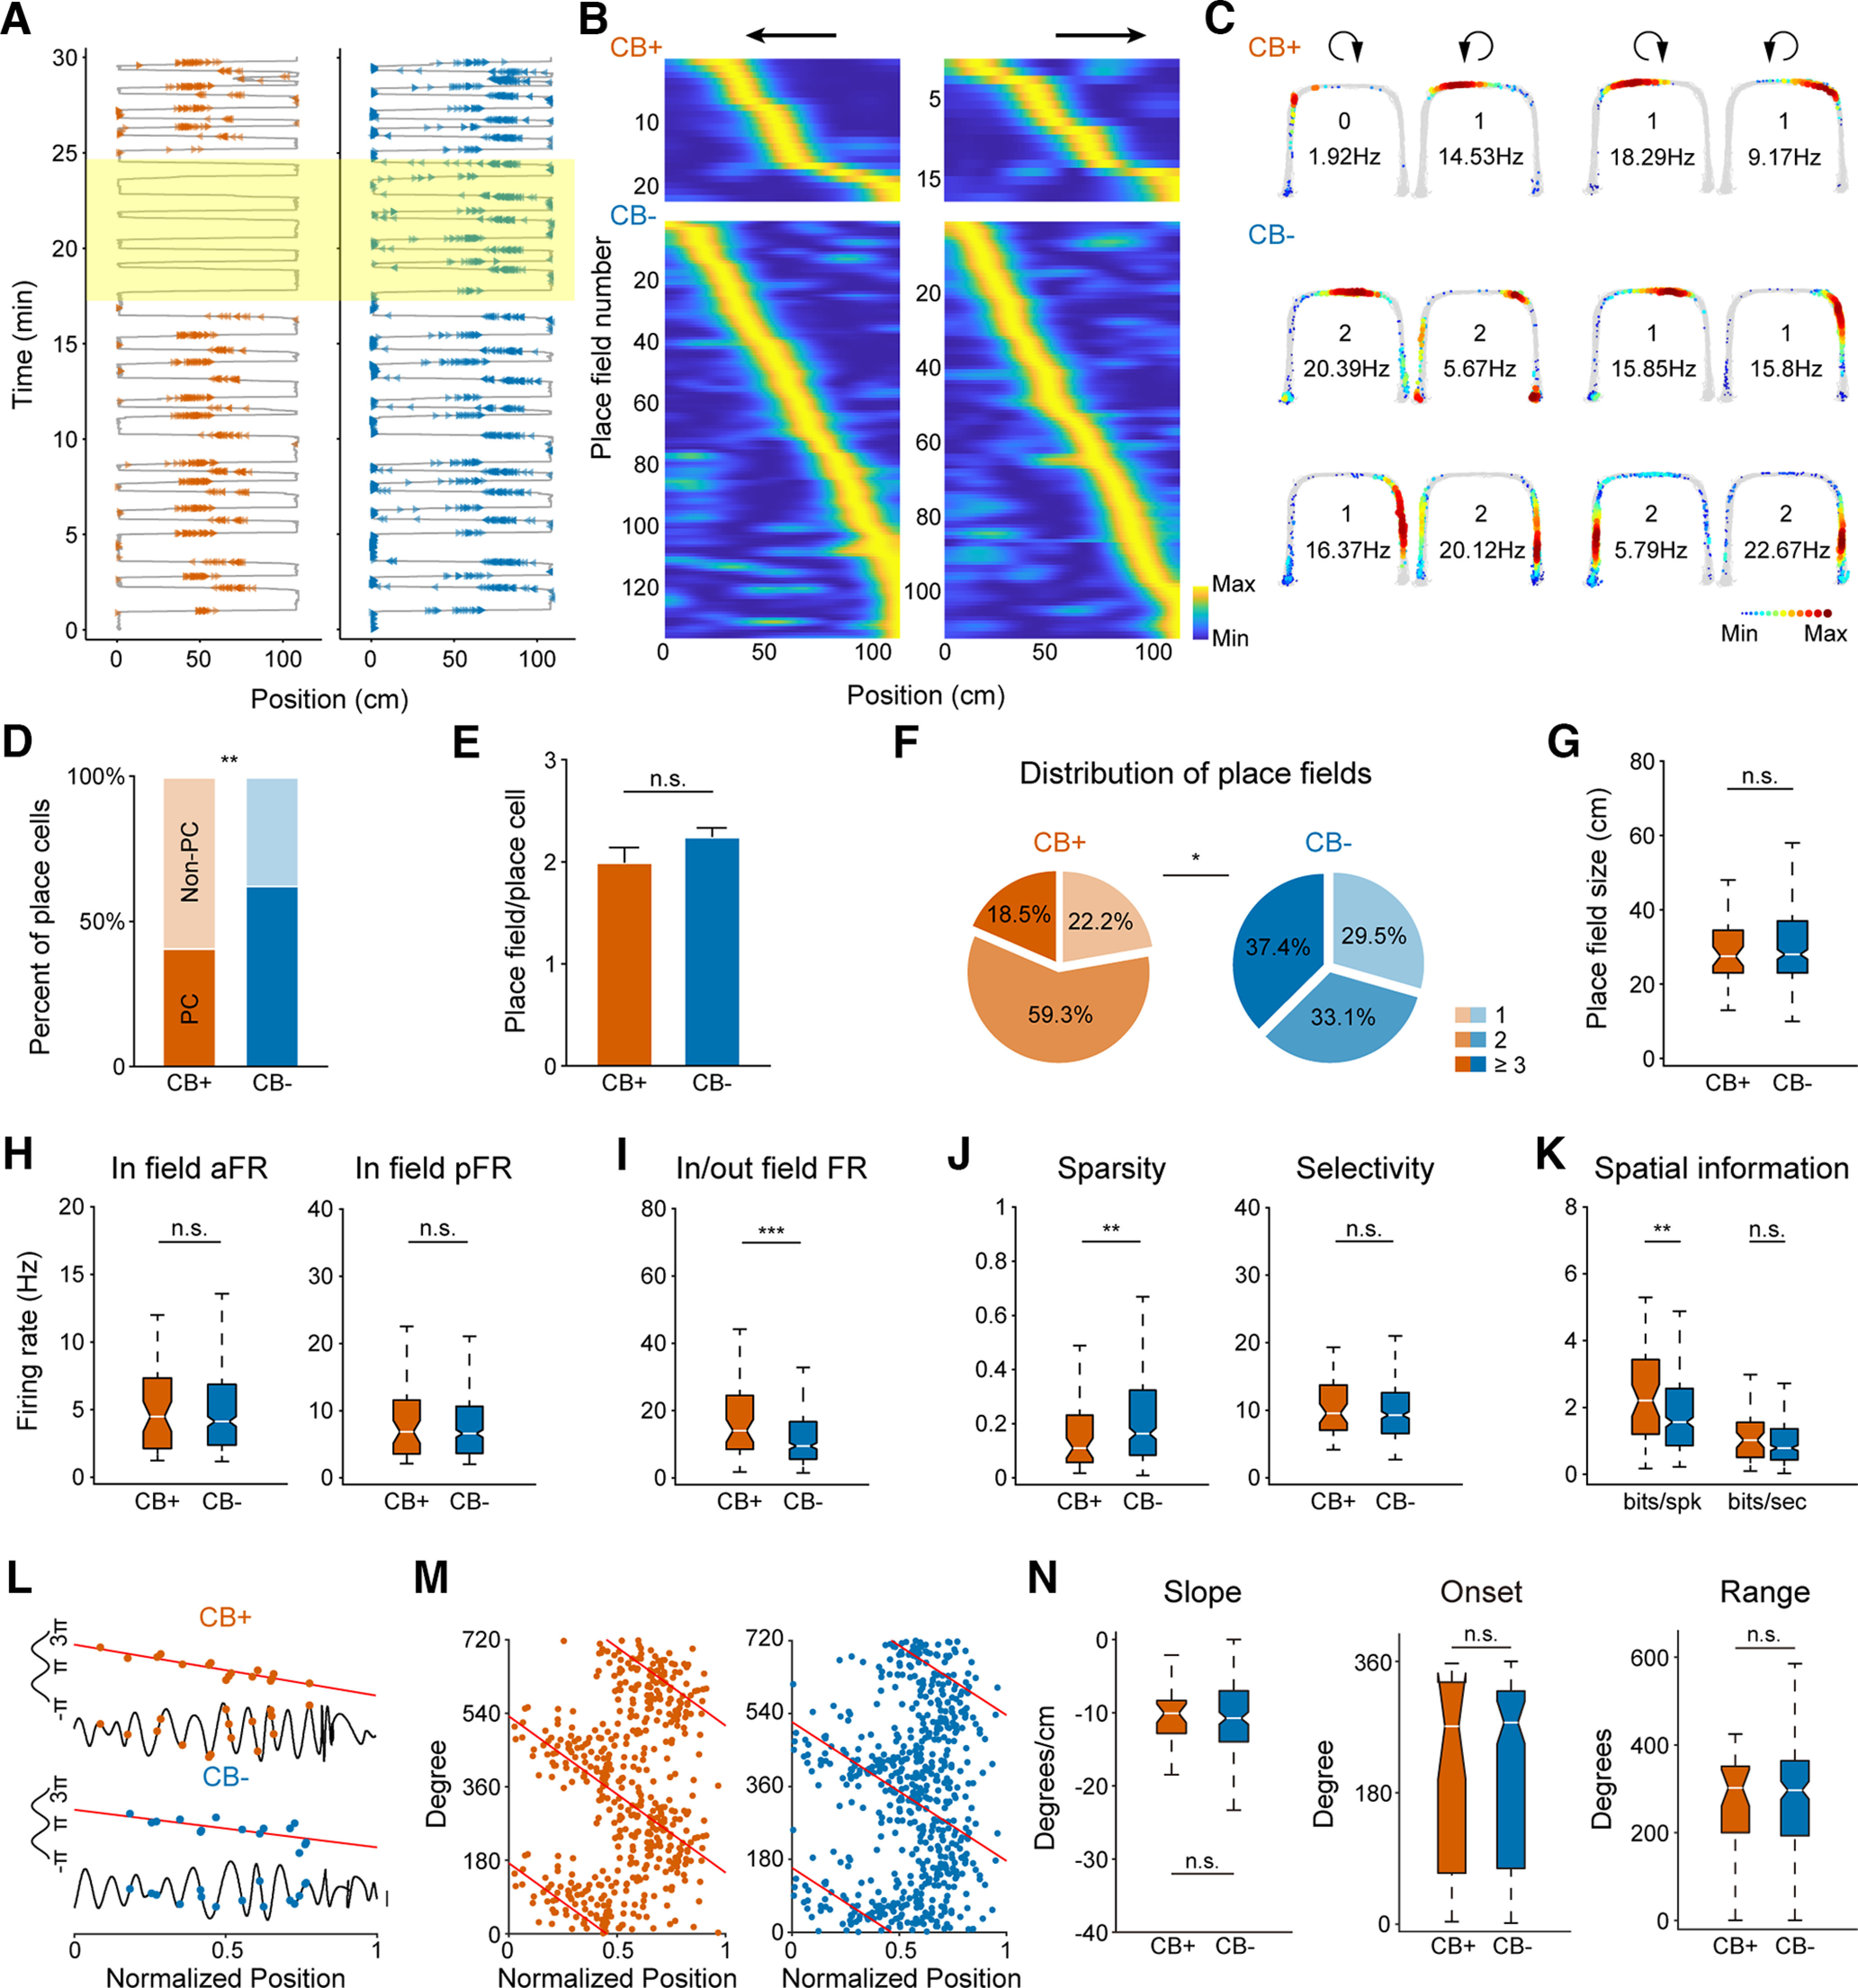
两群细胞中,都有在特定位置更活跃的位置细胞。但CB阳性细胞成为位置细胞的比例较低,约为41%,CB阴性则约为63%。在已经归入位置细胞的群体内,平均位置场数量、大小,以及场内平均和峰值放电频率,均没有显著差异。
两群位置细胞的活动都能覆盖整条轨道,往返方向中的响应又有所不同。CB阳性位置细胞更常形成两个位置场,常在两个方向各出现一个;这种数量分布的差异,与平均位置场数没有显著改变,可以同时存在。
真正拉开差别的,是位置场内外的放电对比。CB阳性位置细胞的响应更集中,每个脉冲携带的空间信息更多。不过,按每秒计算的信息量未见显著差异,位置场穿越中的相位进动参数也相近。这里的“更高效”,具体落在单次放电的空间信息上。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
睡着之后,部分细胞换了节律中的“出场点”
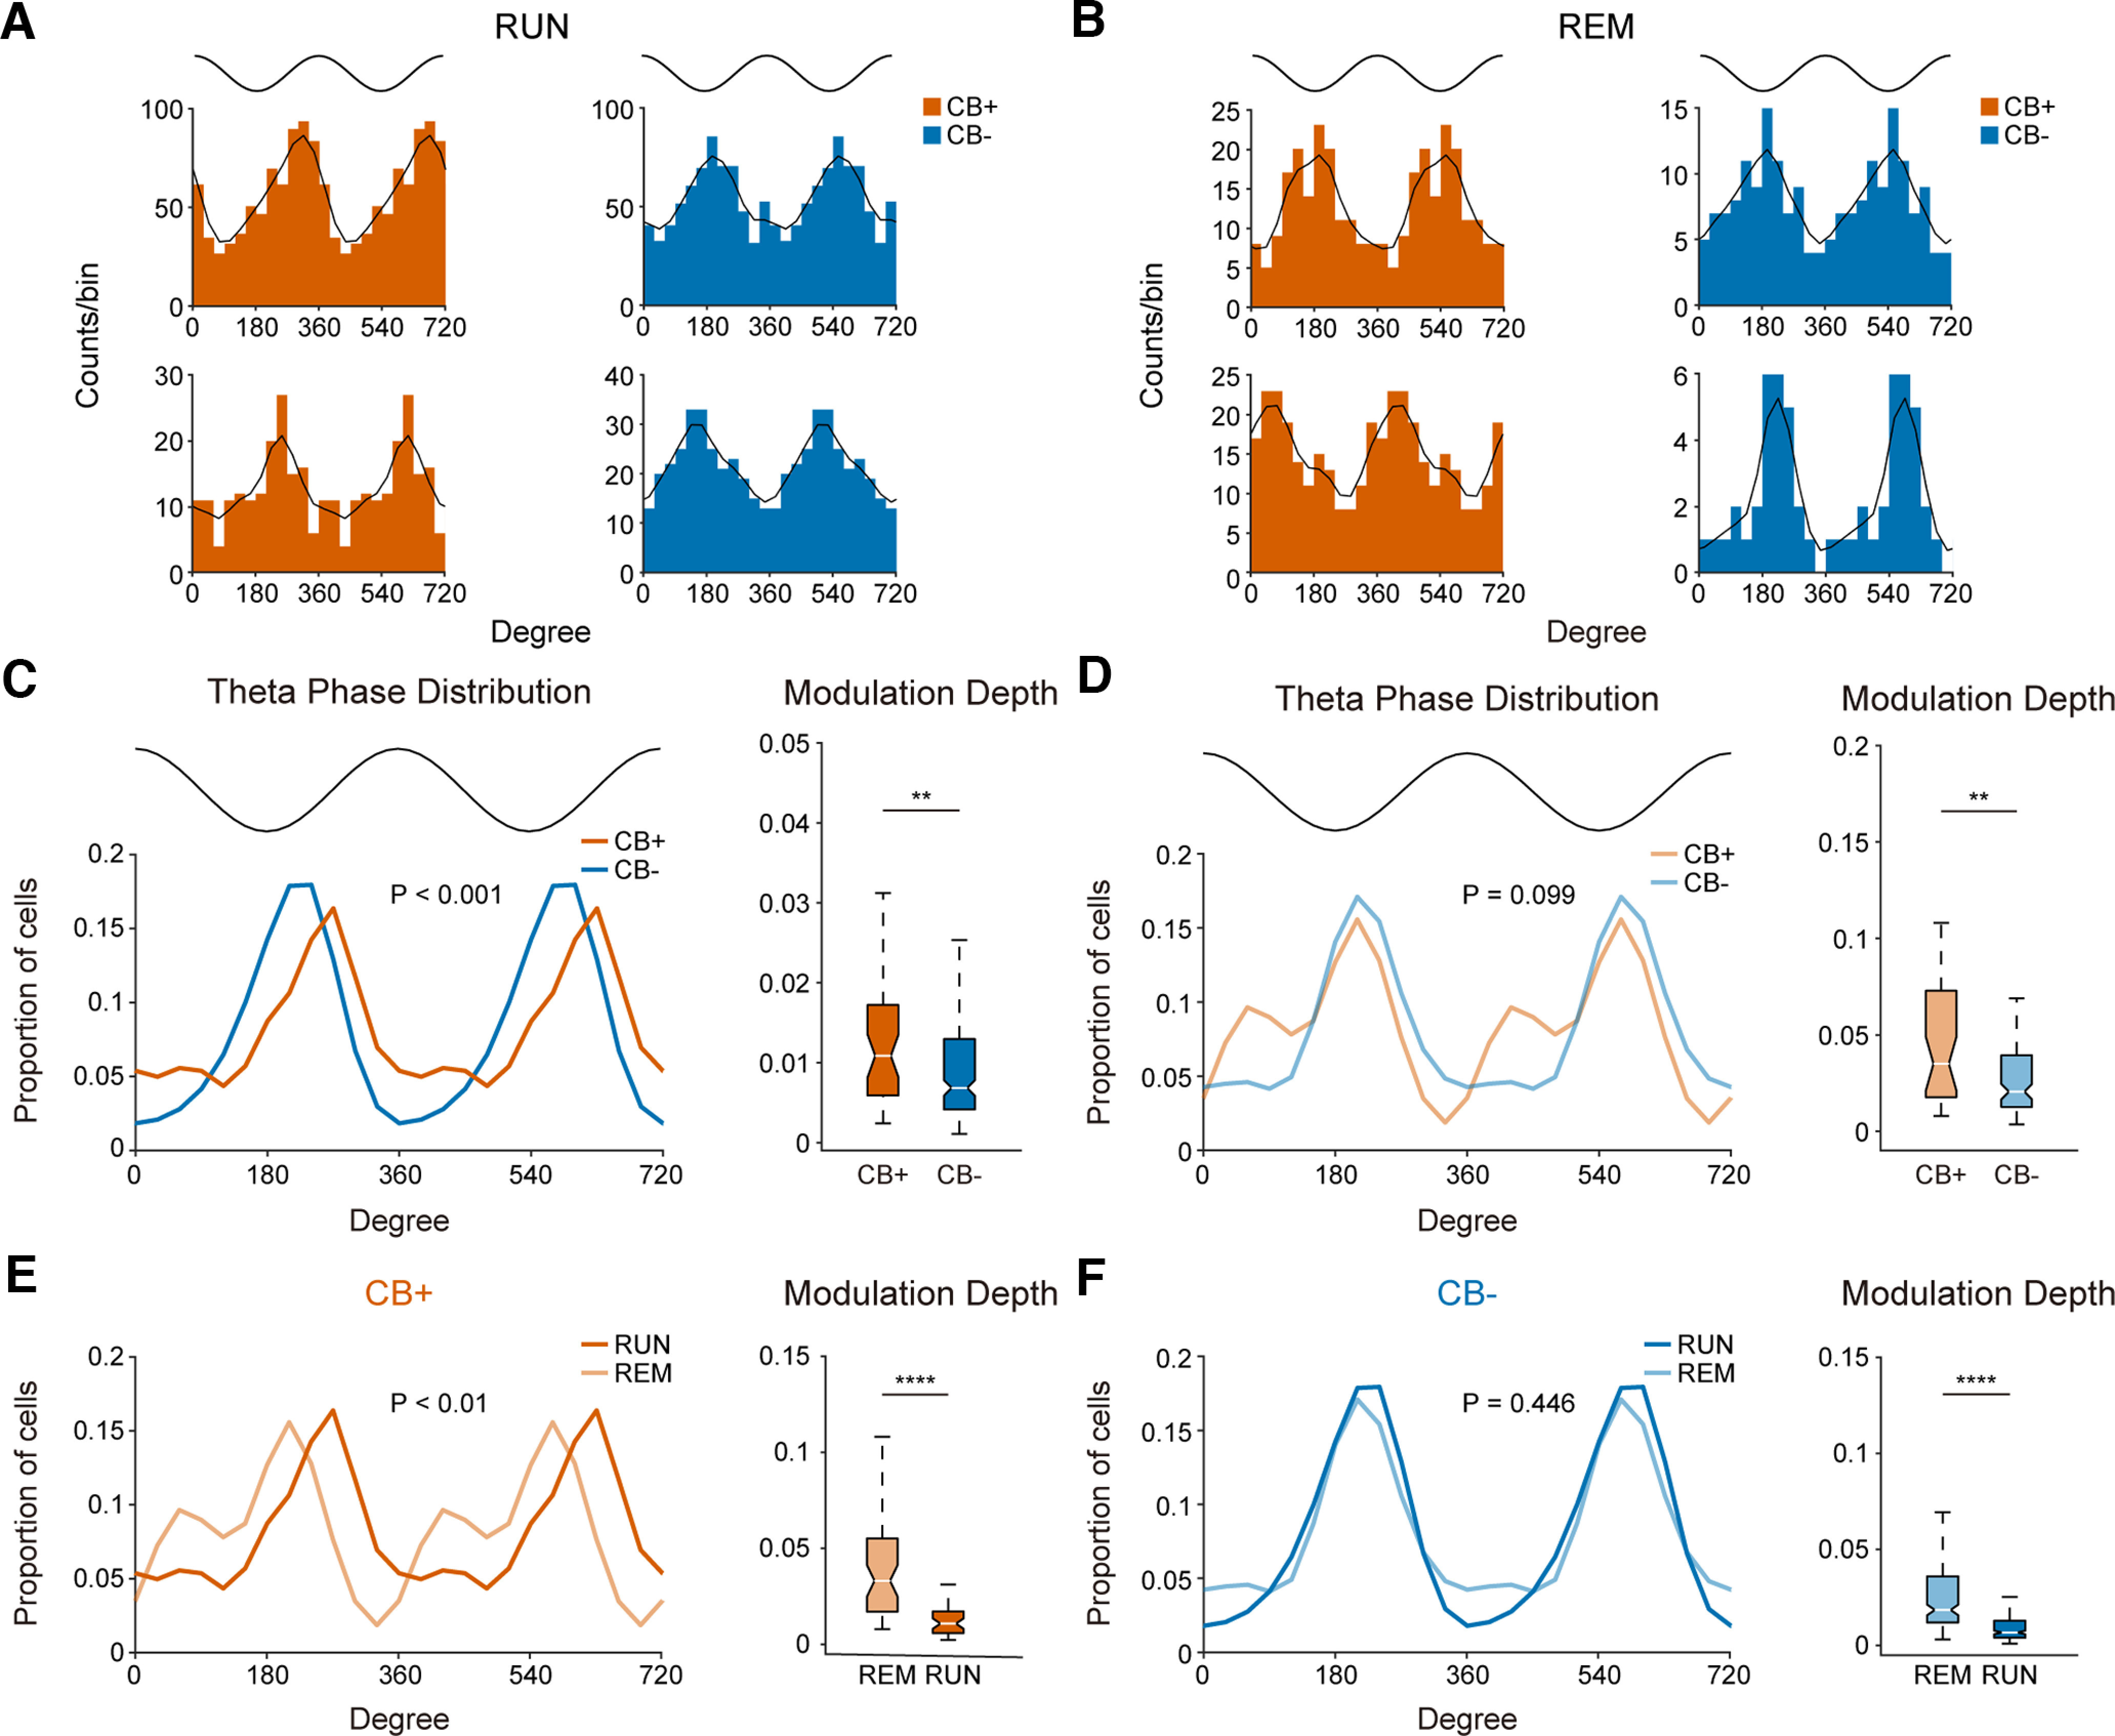
奔跑与REM睡眠都有明显θ节律,细胞往往偏爱在节律的某个阶段放电。CB阳性群体中,一部分细胞在REM期间改变了偏好时相;CB阴性群体从奔跑到REM的相位分布变化则没有达到显著。睡眠状态改变了部分细胞与节律配合的方式。
两群细胞在REM中的偏好相位分布未见显著差异,但CB阳性相位锁定更强。相比奔跑,两群细胞在REM中的θ调制都更深。偏好在哪个时相放电,与锁定那个时相有多紧密,是两个不同特征。这些时序结果提供了状态差异,还没有直接读取梦境内容或证明某种记忆在此完成巩固。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
参与得更多,和参与得更早,各有侧重
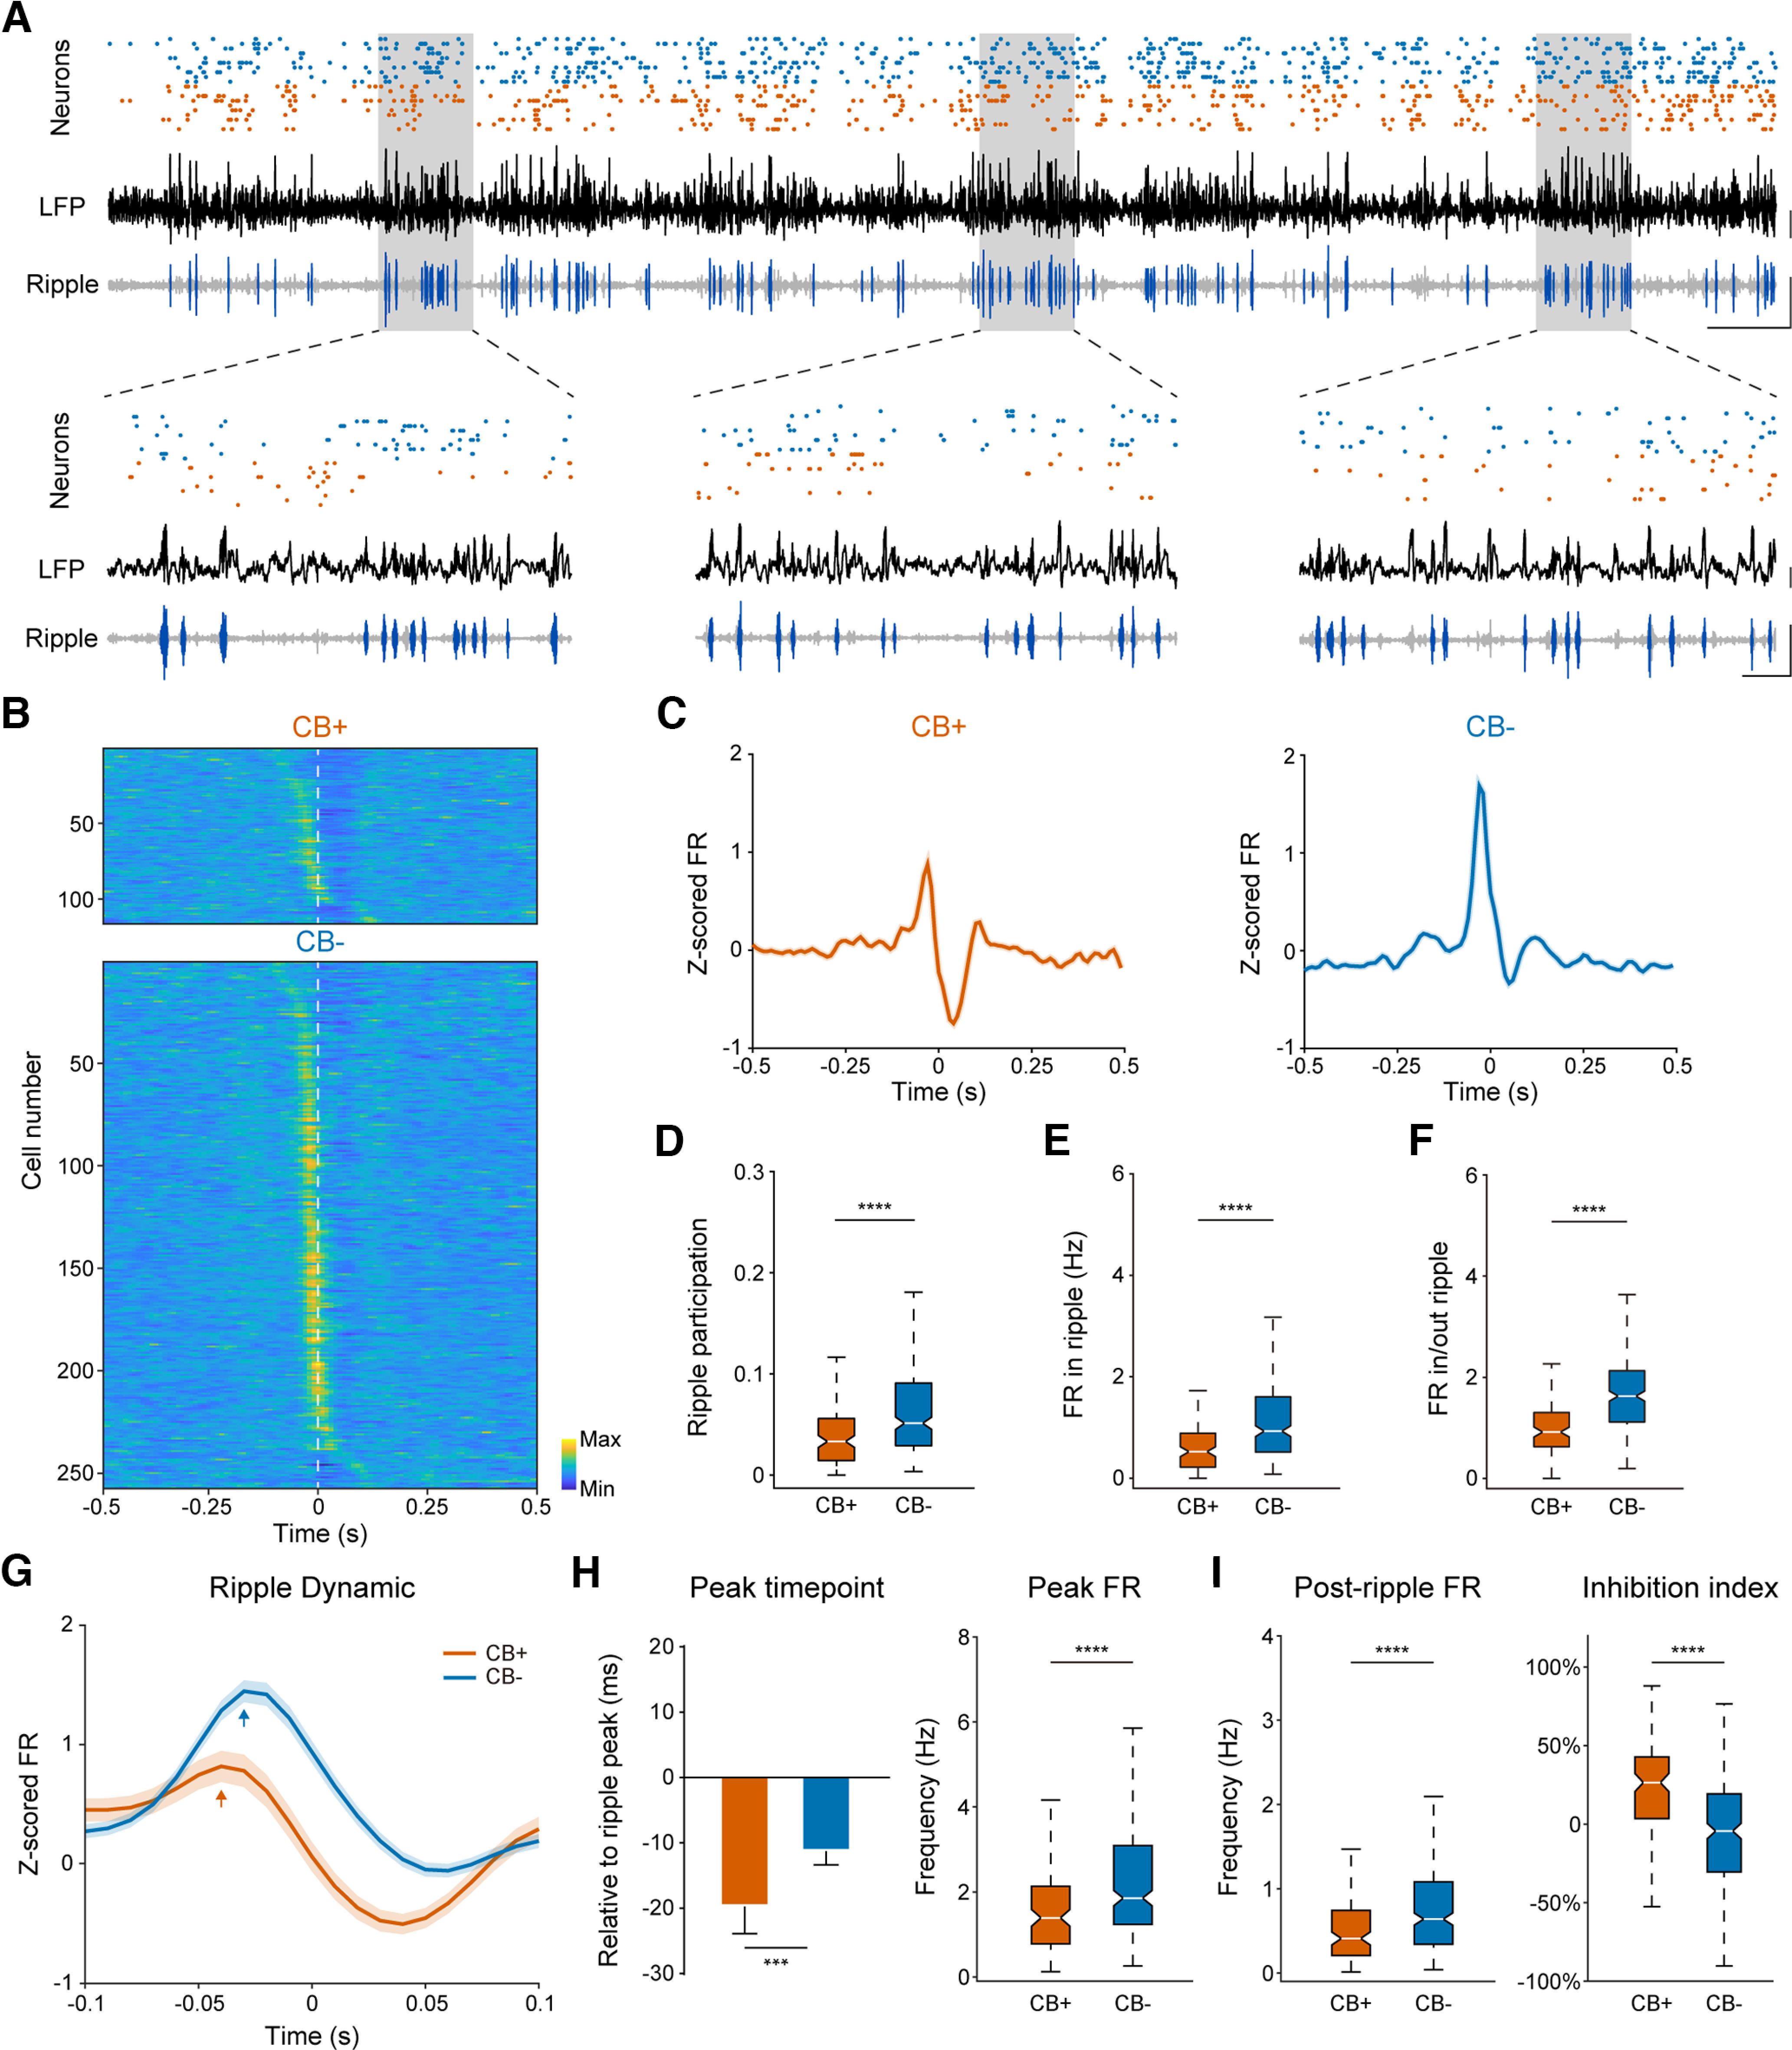
在慢波睡眠的短暂涟漪事件中,CB阴性细胞参与更频繁,事件内放电更多,事件内外的放电比值也更高。CB阳性细胞则更早进入活动高峰,并在涟漪峰值之后出现更明显的抑制。平均活动量相近的群体,进入具体网络事件后仍会显露不同分工。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
放电较少的一群,节律锁定反而更强
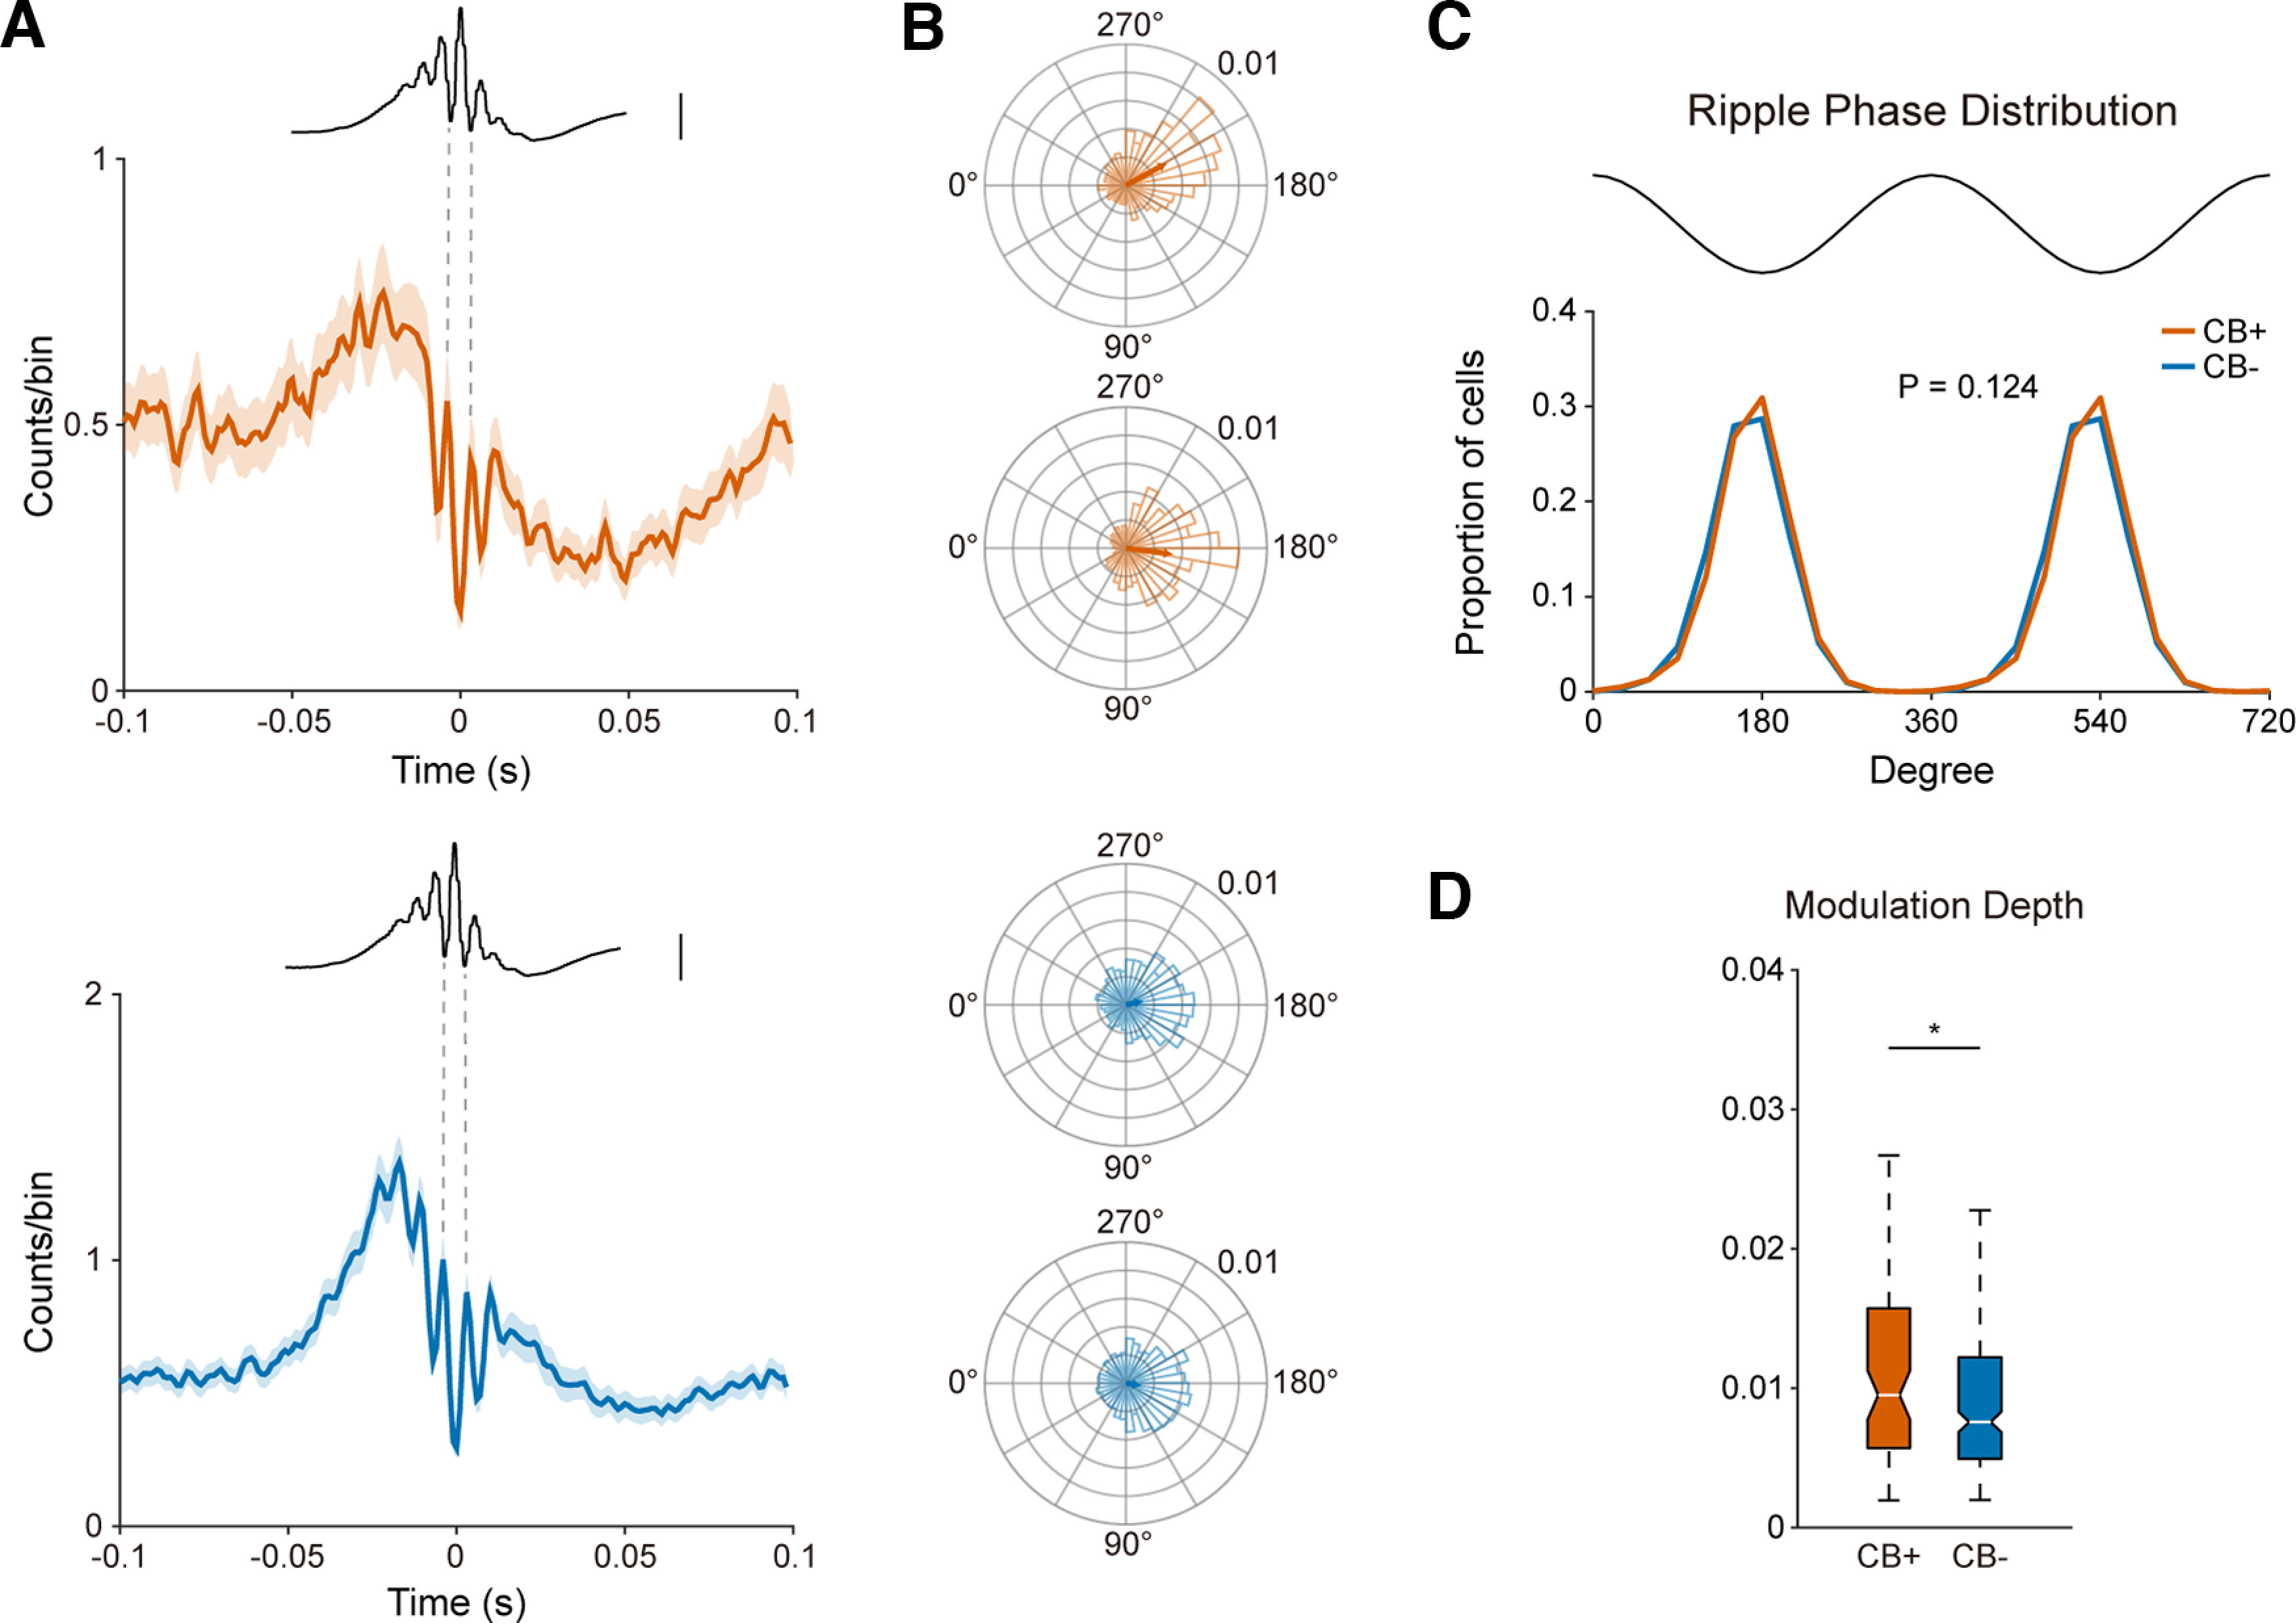
两群细胞都倾向于在涟漪节律的波谷附近放电,偏好相位分布没有显著差别;但CB阳性群体的相位锁定更强。于是,参与次数、放电多少、发生早晚和节律精度,共同组成了比单一活动强度更细的画像。
来源:Gu L et al. · eNeuro · CC BY
查看原图与英文图注 ↗
一张海马地图,可以由不同细胞分工绘成
这项成年雄性小鼠研究强调了CA1锥体细胞内部的多样性。Calbindin标记相关群体的输入差别,是解释这些现象的候选机制,尚未在本研究中直接验证。细胞分类也可能存在少量误分。随着研究继续,位置编码和睡眠节律怎样共同参与记忆,仍需要跨越记录相关性,获得更直接的功能证据。