脑干中的内源性刹车:一条脑啡肽相关通路调节痛敏
从基础阈值到炎症与神经损伤模型,RVM→SRD 连接为脑干怎样调节疼痛提供了细胞层面的线索。
疼痛相关信息向脑内传递时,脑干并非被动的中转站。这里的网络也会调节感觉输入,有些细胞促进痛敏,另一些则发挥抑制作用。怎样在混合的细胞群中找到明确的调节者?2026 年《CNS Neuroscience & Therapeutics》的一项研究关注延髓头端腹内侧区(RVM)的脑啡肽相关神经元,并沿着它们到背侧网状亚核(SRD)的投射继续追踪。增强与抑制带来的相反结果,揭示了一条参与基础痛敏调节、也能在两类疼痛模型中发挥作用的脑干连接。
RVM 脑啡肽相关神经元及其 SRD 投射参与基础抗痛敏调节;增强相关活动,提高基础阈值并减轻炎症与神经损伤模型中的痛敏。
阅读目录 · 6个部分
痛敏增强时,这群细胞也被招募
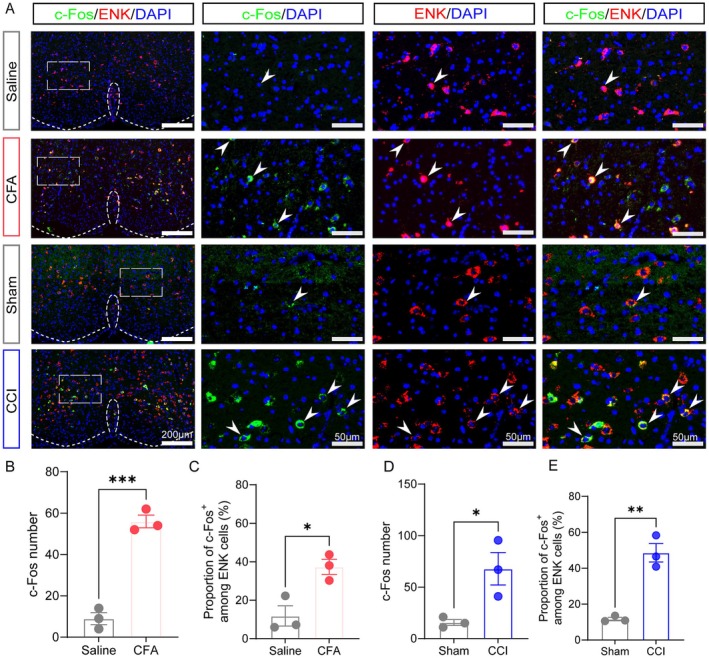
CFA 炎症痛与 CCI 神经损伤模型中,小鼠机械和热撤退阈值降低。与此同时,RVM 的 c-Fos 阳性细胞增加,脑啡肽相关细胞中也出现更多活动标记。持续疼痛与细胞招募相伴出现,让研究者关注这群细胞究竟怎样参与感觉调节。
RVM 内具有不同方向的调节功能,疼痛时活动增强也可能来自抵消持续输入的反馈。研究用 Penk 遗传标记识别脑啡肽相关细胞,再直接改变它们的活动,将分子身份与行为作用联系起来。由此,观察到的活动标记可以继续通向功能上的检验。
来源:Wan K et al. · CNS neuroscience & therapeutics · CC BY
查看原图与英文图注 ↗
增强与抑制,让阈值向相反方向移动
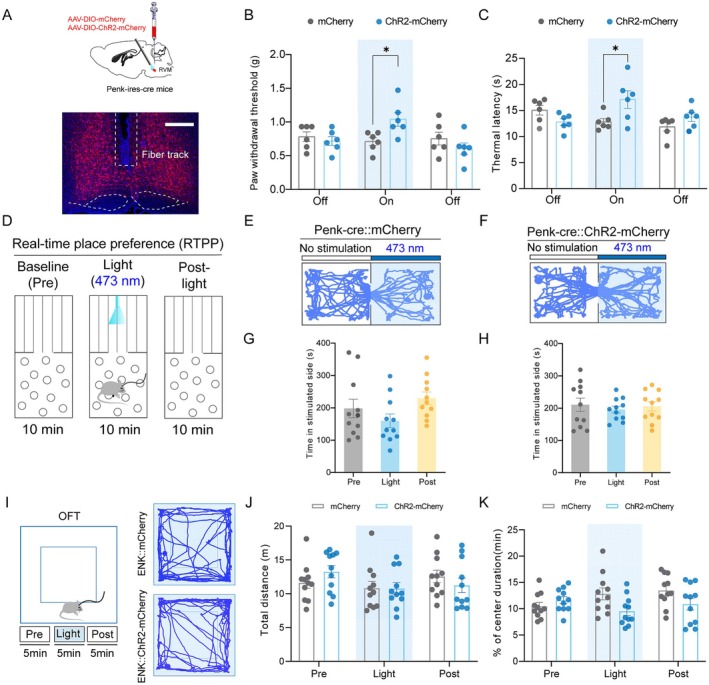
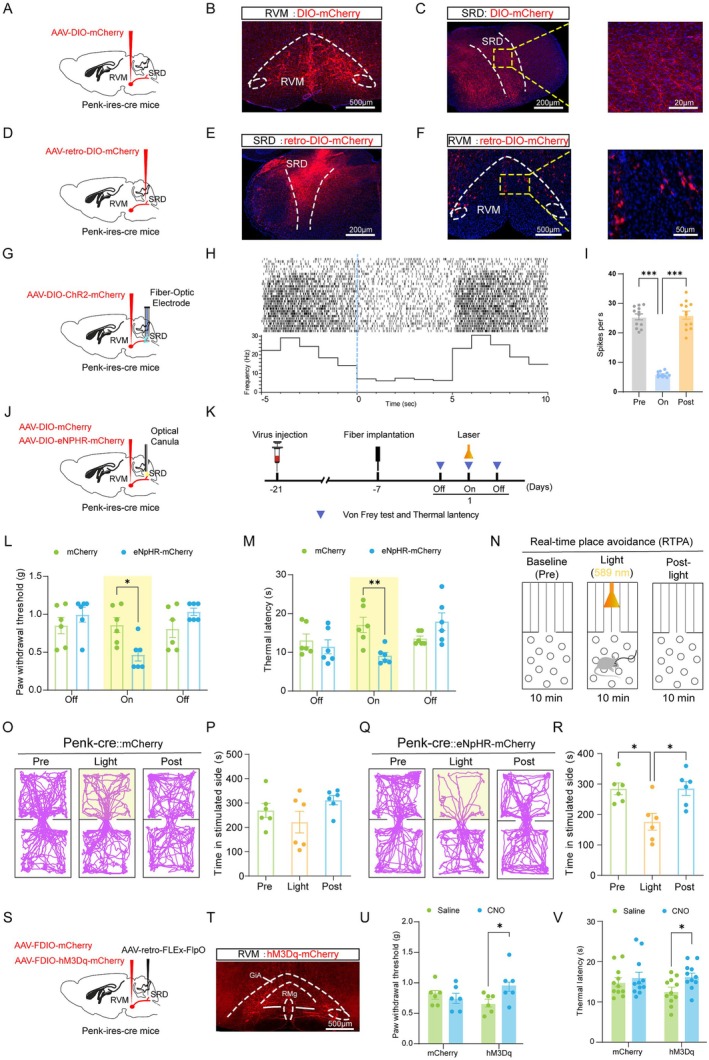
在正常小鼠中,化学遗传抑制这群 RVM 细胞降低机械与热撤退阈值;光遗传抑制也带来快速、可恢复的痛敏变化。反过来,增强活动提高基础阈值。两种策略呈现相近方向,说明这些细胞在没有损伤的状态下,也参与维持对感觉刺激的调节。
运动距离与旷场焦虑相关指标保持相近。短时抑制这些细胞时,小鼠会避开配对的位置;较长时程的条件性位置实验中,组间差异则不显著。反过来,增强活动虽然提高了正常小鼠的阈值,却没有让它们偏爱配对位置。同一群细胞对感觉刺激和位置选择的影响,因而显露出时间与状态上的不同。
来源:Wan K et al. · CNS neuroscience & therapeutics · CC BY
查看原图与英文图注 ↗
同样的增强活动,出现了位置偏好
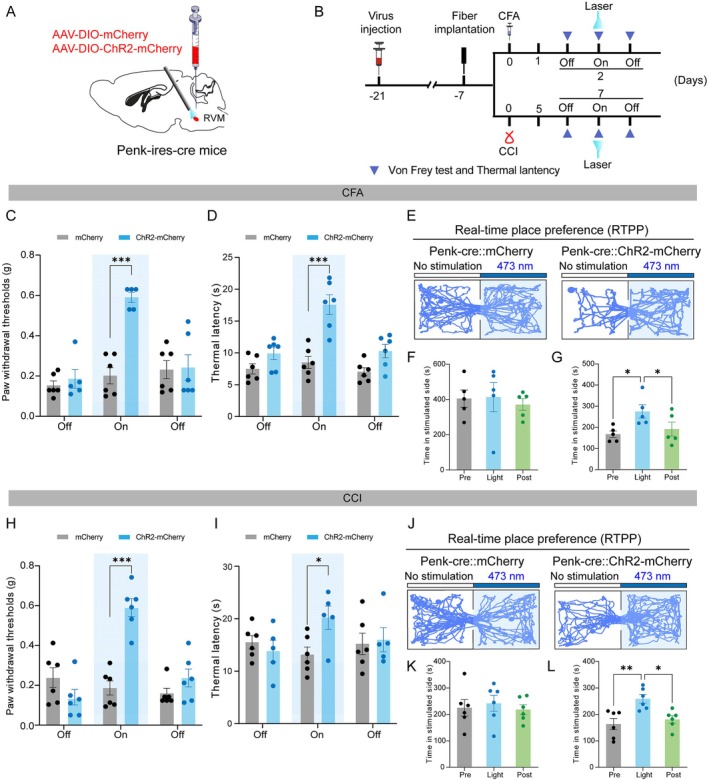
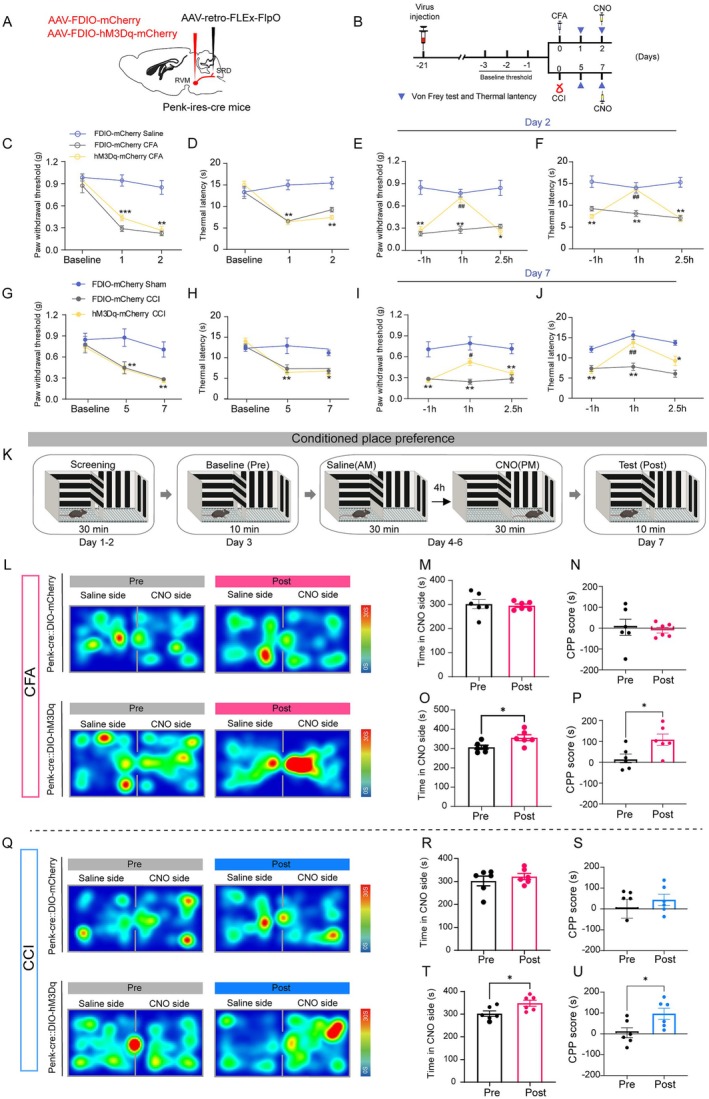
在 CFA 与 CCI 模型中,增强这群 RVM 细胞活动提高机械与热阈值,动物也更愿意停留在刺激配对的位置。这个位置偏好与持续疼痛中的缓解相关动机一致。正常小鼠和疼痛模型中的差异,显示脑干调节与行为选择之间具有状态依赖性。
同一种细胞调节,在不同背景下可以带来不同的动机结果。化学遗传效应约在两点五小时后回落,也让这种调节显示出可逆的时间过程。阈值与位置选择共同描绘的,是疼痛状态中可以被短时改变的感觉与动机反应。
来源:Wan K et al. · CNS neuroscience & therapeutics · CC BY
查看原图与英文图注 ↗
一部分 RVM 细胞,将信号送到 SRD
双向追踪确认 RVM 与 SRD 的连接,投向 SRD 的细胞约占 RVM 脑啡肽相关群体的 35.06%。在 SRD 增强这些末梢活动时,靶区神经元放电受到抑制。分子身份、解剖连接与局部放电变化共同聚焦到这一输出,为脑干内的抑制性调节提供了具体位置。
抑制 SRD 内的相关末梢,降低基础机械和热阈值,并伴随实时位置回避;增强 SRD 投射细胞活动,则提高基础阈值。运动与旷场表现仍保持相近。整个细胞群与这段输出得到的方向一致结果,使 RVM→SRD 成为理解基础抗痛敏调节的重要连接。
来源:Wan K et al. · CNS neuroscience & therapeutics · CC BY
查看原图与英文图注 ↗
增强 SRD 投射细胞,减轻痛敏
进一步增强 SRD 投射细胞,在 CFA 与 CCI 模型中都提高机械及热撤退阈值,条件性位置偏好也呈现与缓解相关的变化。两类模型得到同向结果,显示这群投射细胞的调节能力可以出现在不同的损伤背景中。
效应约在两点五小时后回落,与整个 RVM 脑啡肽相关群体的可逆调节相呼应。现有抑制实验主要描绘基础状态下的作用,增强实验则将这条连接带入疼痛模型。继续观察疼痛状态下减少其活动的结果,将帮助理解损伤后已有的细胞招募承担了多少代偿。
来源:Wan K et al. · CNS neuroscience & therapeutics · CC BY
查看原图与英文图注 ↗
给脑干痛敏调节增加细胞身份与连接
这项研究为脑干中的抗痛敏调节增加了明确的细胞群与输出位置。脑啡肽相关身份也提供了一个分子入口:肽释放、共递质与 SRD 内的受体如何参与,构成值得继续深入的机制问题。靶区放电与动物行为的同向线索,为连接这些层面提供了基础。
结果来自成年雄性小鼠。不同性别、其他输出侧支及更长期的调节过程,将帮助拓展这条连接的作用图景。已经获得的发现表明,疼痛状态中的细胞招募可以蕴含可进一步增强的调节能力,也让内源性“刹车”成为更具体的回路问题。