睡不好为何伤及肠道?从脑干迷走通路追踪肠干细胞的压力信号
小鼠研究将睡眠剥夺、迷走神经背核胆碱能输出与肠嗜铬细胞五羟色胺释放联系起来,解析睡眠紊乱影响肠道干细胞的跨器官通路。
睡眠不足与昼夜节律紊乱已成为现代社会的普遍健康问题,流行病学研究显示其显著增加炎症性肠病(IBD)等胃肠道疾病的发生与复发风险。小肠上皮每3–5天即完成一次快速自我更新,这一稳态高度依赖于隐窝基底部的Lgr5+/Olfm4+肠道干细胞(ISCs)。然而,大脑在睡眠缺失状态下如何跨越长距离解剖边界,向肠道隐窝传递致病信号并直接破坏肠道干细胞的自我更新与再生潜能,其完整的脑-肠神经环路与分子接力机制仍不清楚。 2026年2月1日,中国农业大学于政权、吕聪团队联合郑州大学王峰团队、中国科学院深圳先进技术研究院王立平团队及加州大学欧文分校Maksim V. Plikus等合作者在《Cell Stem Cell》发表题为“Sleep disturbance triggers aberrant activation of vagus circuitry and induces intestinal stem cell dysfunction”的研究论文。该研究综合运用跨器官神经示踪、在体光纤钙成像、空间与单细胞多组学及条件性基因敲除,完整阐明了“睡眠剥夺→迷走神经背核(DMV)胆碱能神经元持续激活→迷走神经乙酰胆碱(ACh)释放→肠嗜铬细胞(EC)M3受体激活与SERT下调→肠道5-HT暴增→肠道干细胞HTR4受体过度激活→内质网应激与活性氧(ROS)累积”的脑-肠致病轴。
急性睡眠剥夺诱发脑干迷走神经背核(DMV)胆碱能神经元持续性异常高兴奋,经膈下迷走神经在肠道释放乙酰胆碱并作用于肠嗜铬细胞CHRM3受体,引起肠道5-HT大量释放与重摄取受阻;高浓度5-HT直接激活肠道干细胞上的HTR4受体,触发内质网应激与活性氧累积,最终损害肠道干细胞自我更新与损伤后再生。
阅读目录 · 5个部分
两天急性睡眠剥夺显著损害肠道干细胞自我更新与辐射后上皮再生
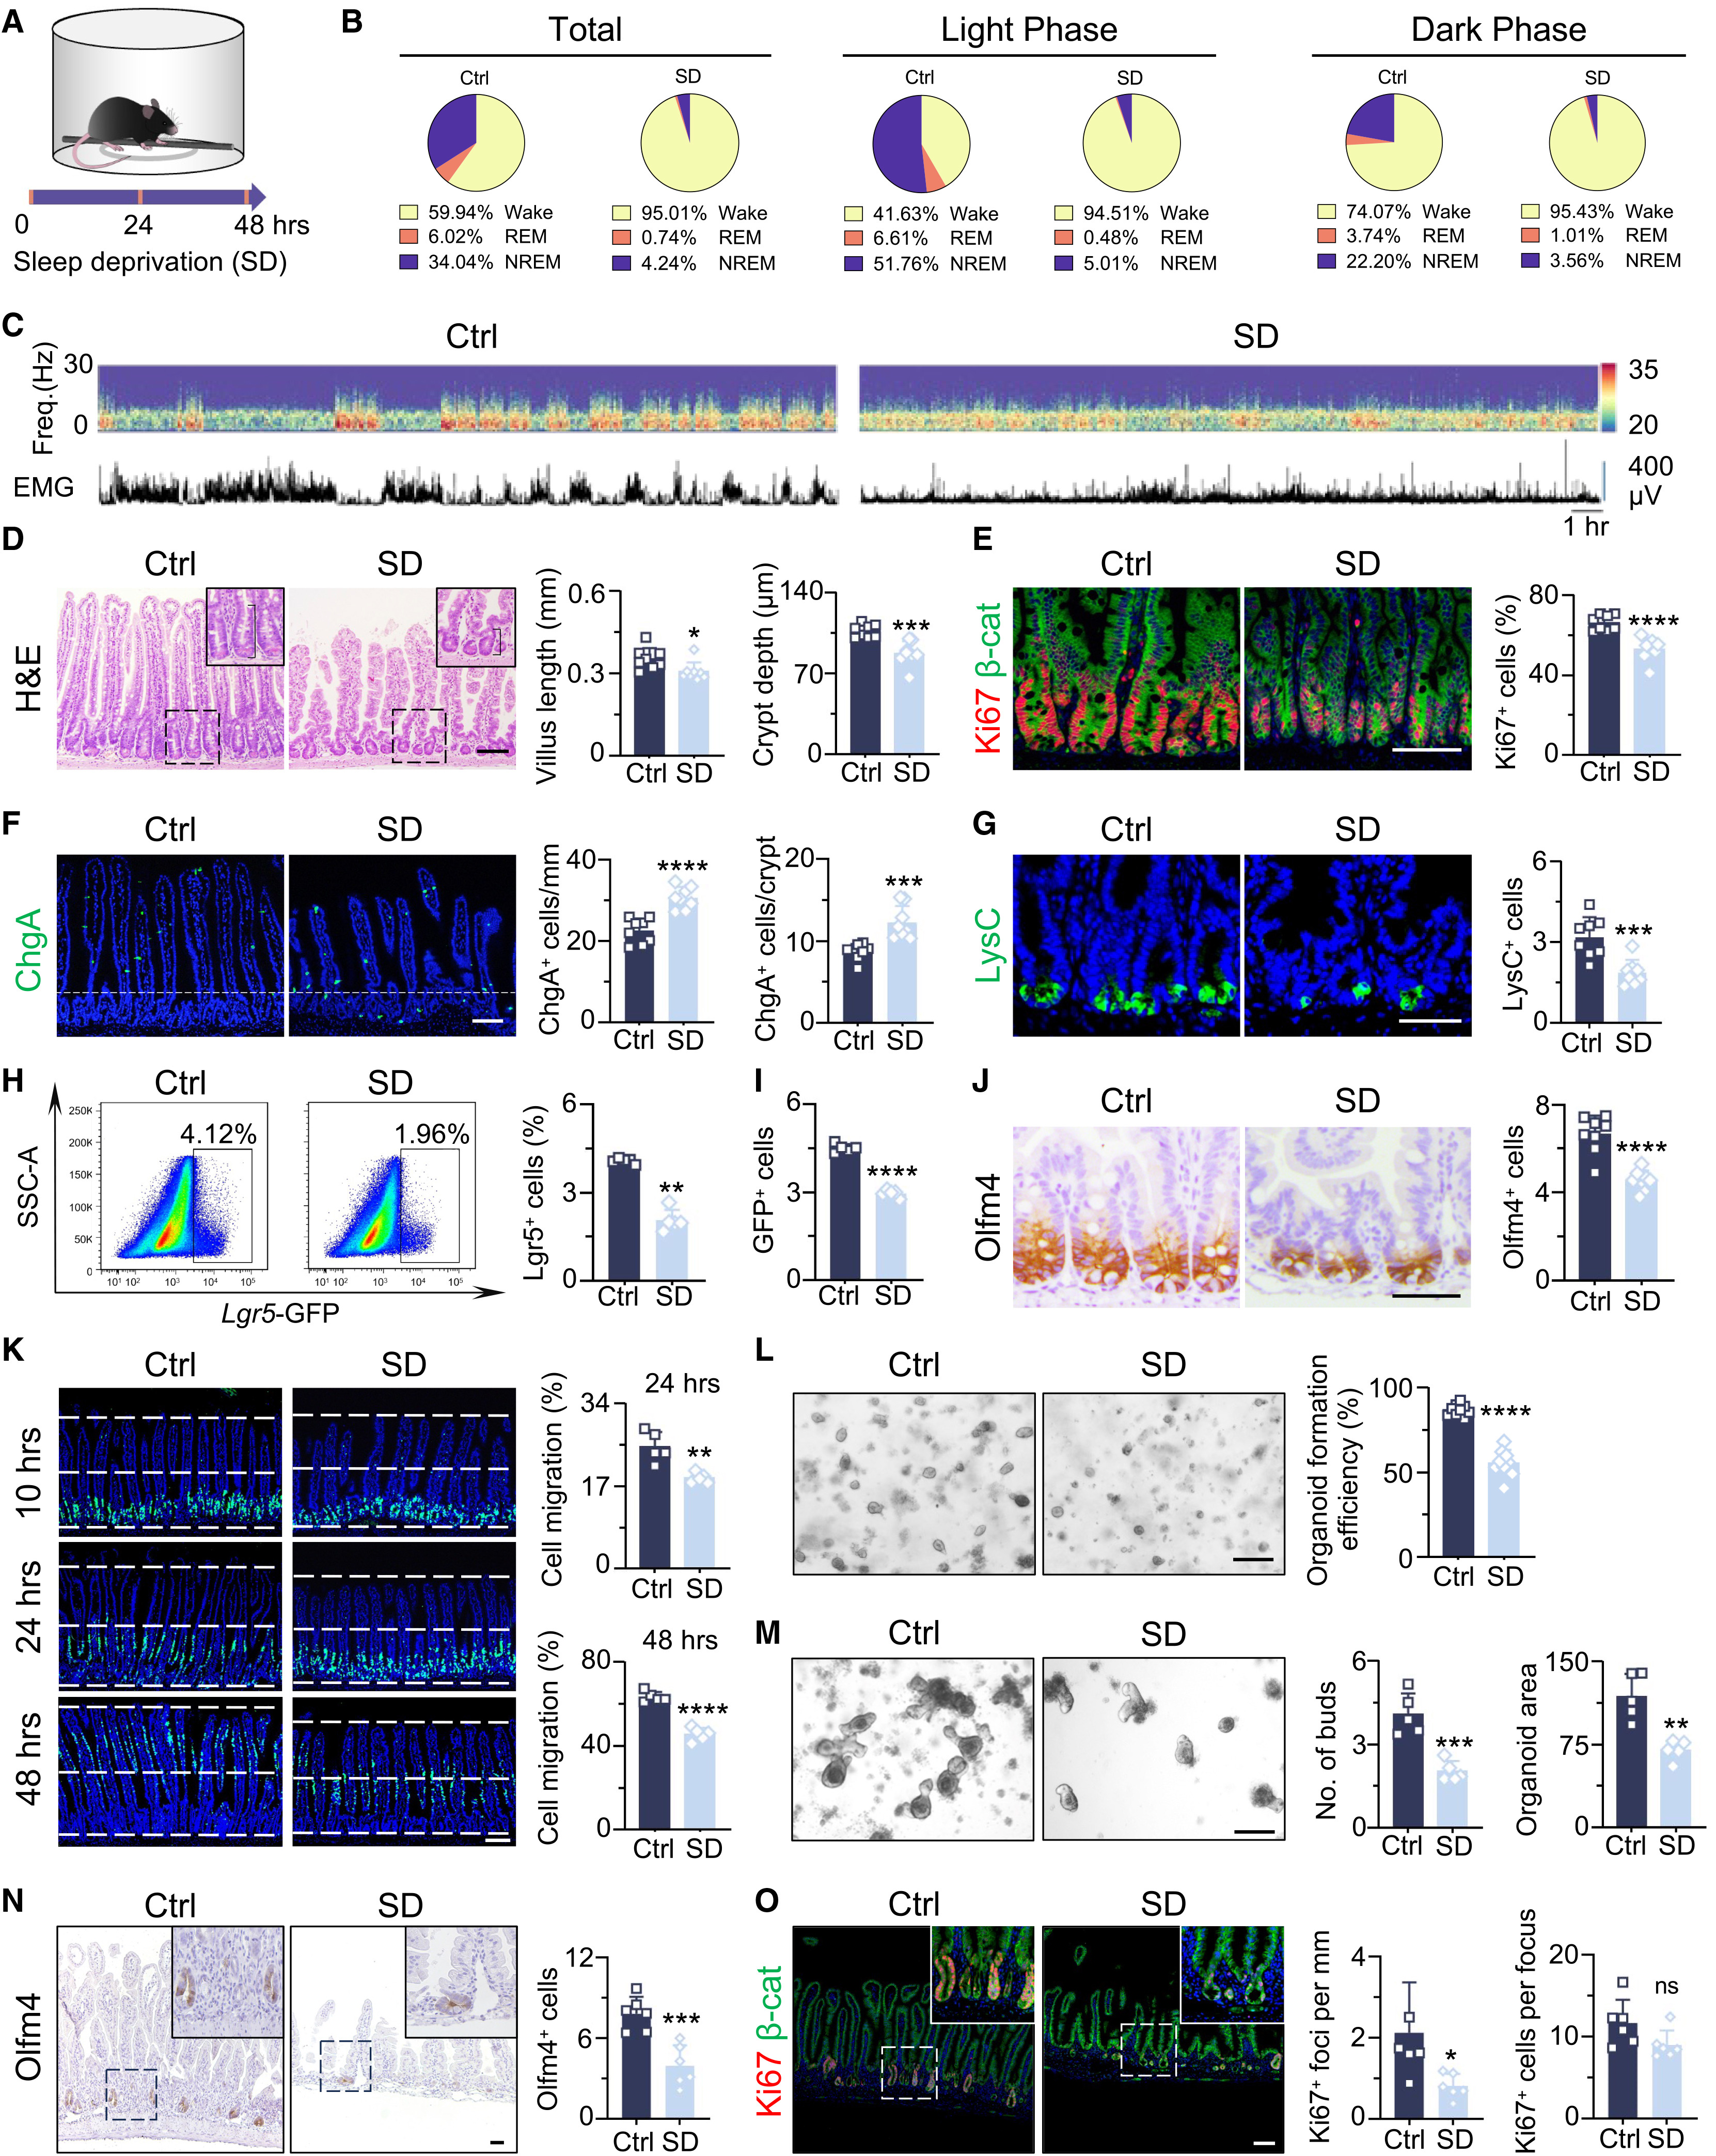
为了避免长期睡眠剥夺带来的全身性衰竭干扰,研究团队采用2天(48小时)温和机械剥夺或多平台水环境睡眠剥夺(SD)模型。组织学与免疫荧光分析显示,仅2天的睡眠剥夺即可导致小鼠小肠绒毛与隐窝显著缩短,隐窝内Ki67阳性增殖细胞和溶菌酶(LysC)阳性潘氏细胞数量大幅减少,而嗜铬粒蛋白A(ChgA)阳性的肠内分泌细胞显著增加。在Lgr5-EGFP-IRES-CreERT2报告小鼠中,睡眠剥夺使隐窝基底部的Lgr5-GFP+和Olfm4+肠道干细胞数量减少约一半,BrdU脉冲追踪也证实上皮细胞向绒毛顶端的迁移与更新速率显著放缓。
离体隐窝类器官培养实验进一步表明,取自睡眠剥夺小鼠的肠道隐窝在体外形成类器官的效率、出芽数量及克隆体积均显著下降;在12 Gy γ射线照射诱导的急性放射性肠损伤模型中,睡眠剥夺小鼠的隐窝再生能力受到严重破坏。值得注意的是,利用广谱抗生素(ABX)预先清除肠道菌群并不能阻止2天睡眠剥夺引发的隐窝增殖受损与干细胞丢失,说明这一急性期肠道干细胞功能障碍主要受宿主内源性信号驱动。
来源:Mingxin Zhang et al. · Cell Stem Cell · © Elsevier Inc.
查看原图与英文图注 ↗
内质网应激、整合应激反应与肠道特异性活性氧累积驱动干细胞损伤
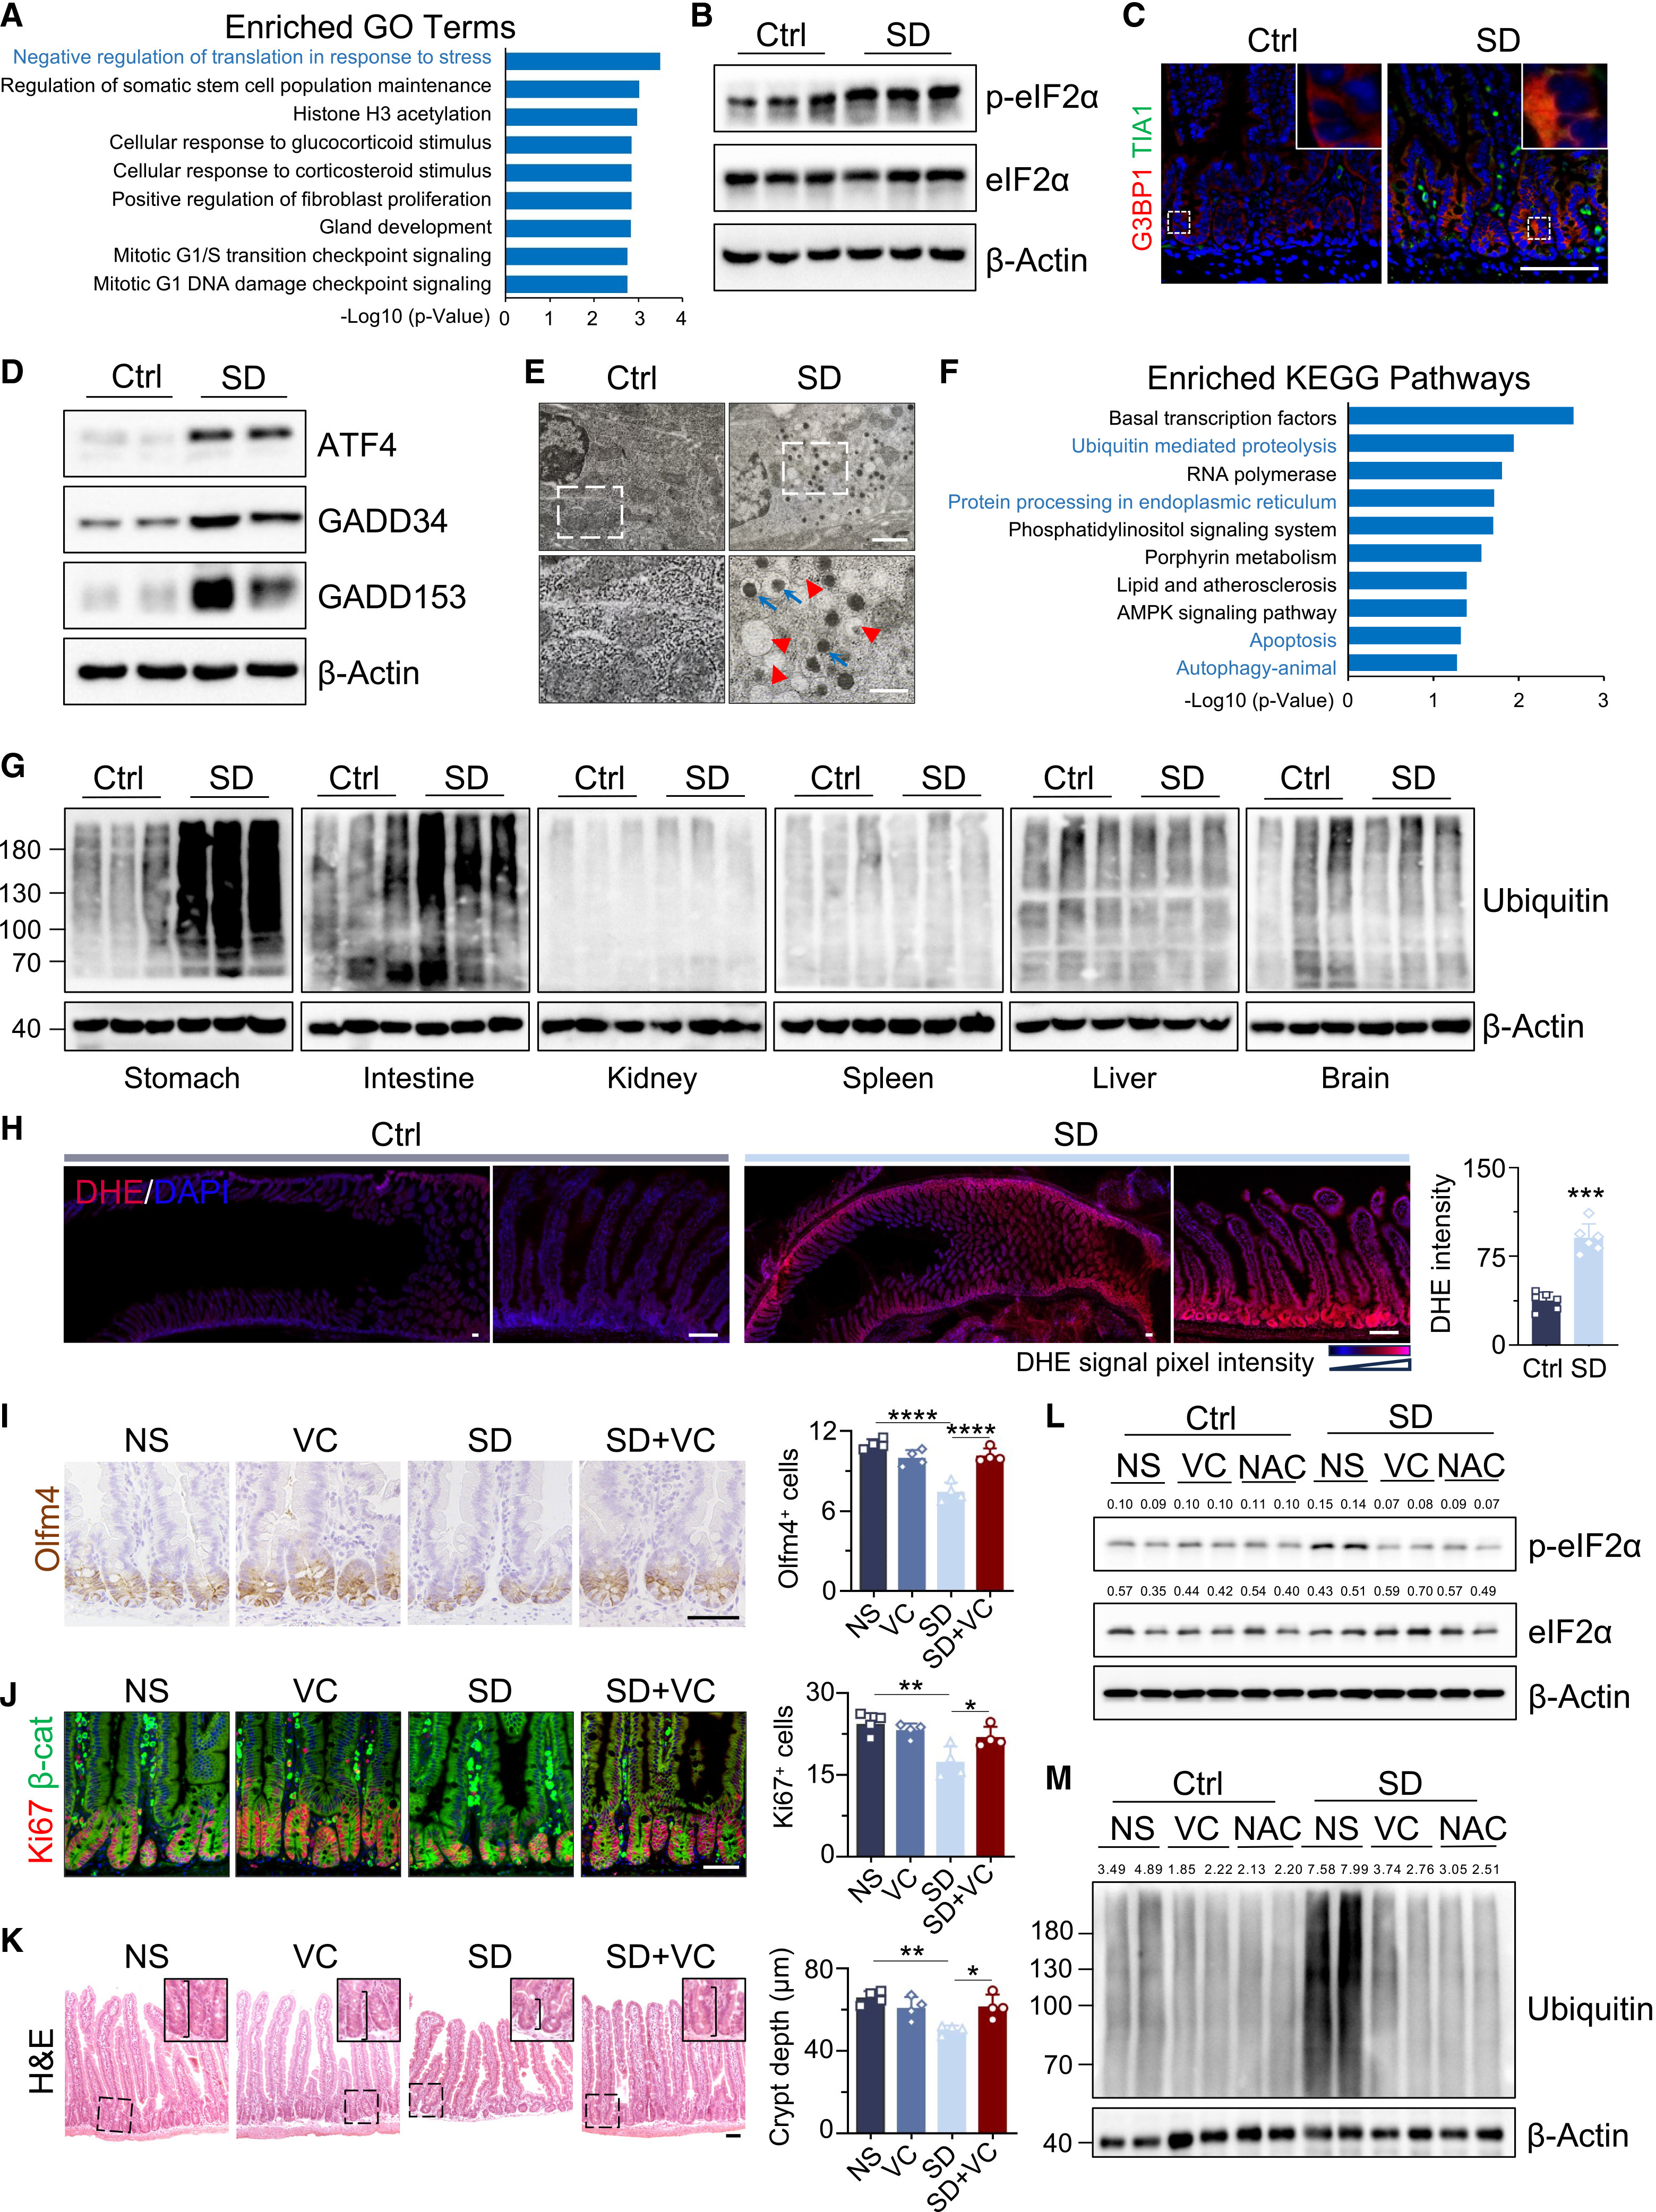
为解析睡眠剥夺损伤肠道干细胞的分子机制,研究人员对分离的小肠隐窝进行了4D无标记定量蛋白质组学分析。结果显示,睡眠剥夺显著下调了隐窝中的Wnt/β-catenin靶蛋白(TCF1、LEF1、c-Myc),同时强烈激活了内质网应激(ER stress)与整合应激反应(ISR)通路,表现为p-eIF2α、ATF4、GADD34和CHOP(GADD153)蛋白水平急剧升高,并在隐窝细胞胞质中诱发大量G3BP1+/TIA1+应激颗粒(stress granules)聚集、K48泛素化错误折叠蛋白堆积以及LC3B自噬激活。
二氢乙锭(DHE)活性氧染色揭示了一个极具器官特异性的现象:2天睡眠剥夺仅在小肠隐窝和上皮中诱发强烈的活性氧(ROS)暴增,而在肝脏、肺、脾脏、心脏、肾脏及大脑中均未见明显的DHE荧光升高;同时肠道抗氧化转录因子Nrf2及SOD、CAT、GPX等抗氧化酶活性显著下降。在饮水中补充抗氧化剂维生素C(VC)或N-乙酰半胱氨酸(NAC),不仅清除了肠道隐窝内的过量ROS和应激颗粒,还完全挽救了Olfm4+肠道干细胞数量与隐窝增殖稳态。
来源:Mingxin Zhang et al. · Cell Stem Cell · © Elsevier Inc.
查看原图与英文图注 ↗
肠嗜铬细胞源性5-HT暴增通过肠道干细胞HTR4受体诱发氧化应激
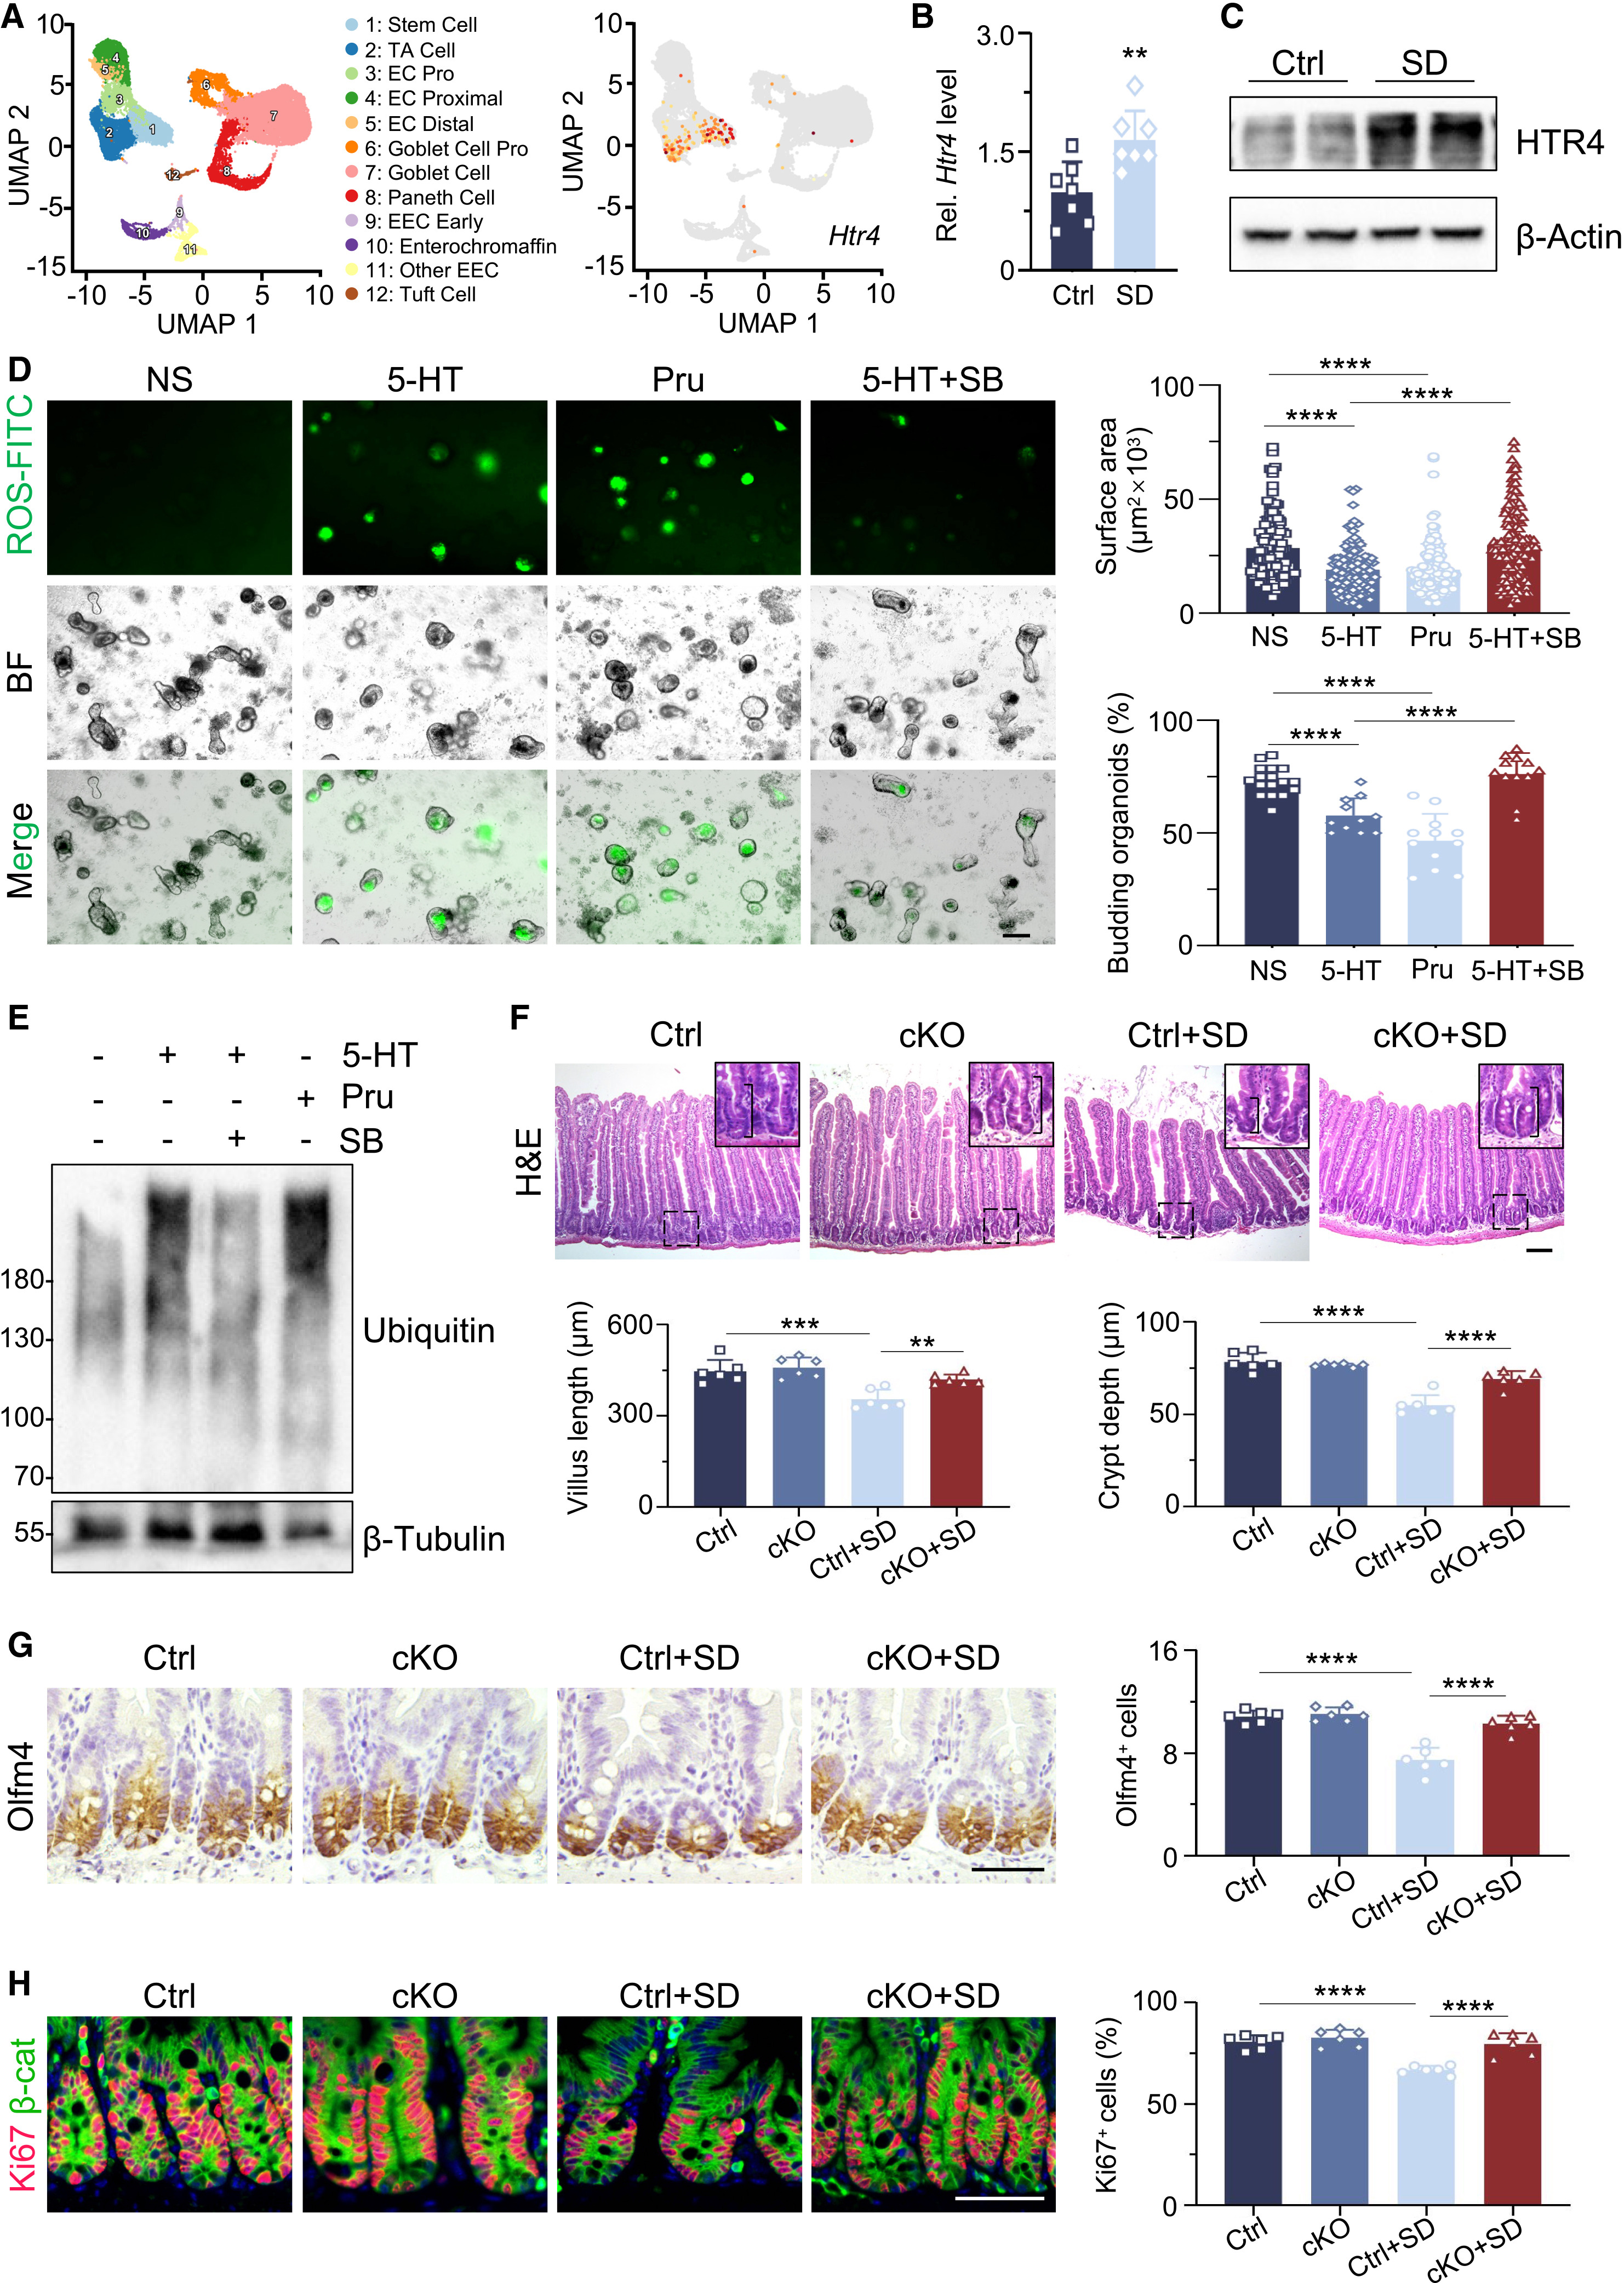
为什么睡眠剥夺会选择性在肠道引发氧化应激?靶向神经递质代谢组学与ELISA检测发现,睡眠剥夺后小肠组织和血清中的5-羟色胺(5-HT)水平居所有神经递质升幅之首。这源于双重机制:一方面,合成外周5-HT的Tph1+肠嗜铬细胞(EC cells)显著扩增;另一方面,负责清除胞外5-HT的血清素转运体基因Slc6a4(编码SERT)因启动子区DNA高甲基化而表达下调。在外周5-HT合成缺陷的Tph1-/-基因敲除小鼠中,睡眠剥夺不再诱发肠道ROS累积、应激颗粒形成或肠道干细胞丢失。
单细胞转录组测序(scRNA-seq)与原位杂交进一步锁定,5-HT受体亚型Htr4在肠道干细胞和潘氏细胞中高表达且在睡眠剥夺后显著上调。给正常小鼠注射HTR4激动剂普芦卡必利(prucalopride)或5-HT可重现睡眠剥夺引发的隐窝ROS累积与干细胞减少;反之,给予HTR4拮抗剂(SB-203186或GR113808)或在肠上皮及Lgr5+干细胞中条件性敲除Htr4(Villin-Cre;Htr4fl/fl和Lgr5-CreERT2;Htr4fl/fl),均能经由抑制Gαs-cAMP-PKA-Ca2+级联过载,完全阻断睡眠剥夺或高5-HT对肠道干细胞的氧化应激损伤。
来源:Mingxin Zhang et al. · Cell Stem Cell · © Elsevier Inc.
查看原图与英文图注 ↗
膈下迷走神经切断与肠上皮M3胆碱能受体敲除阻断睡眠剥夺致病级联
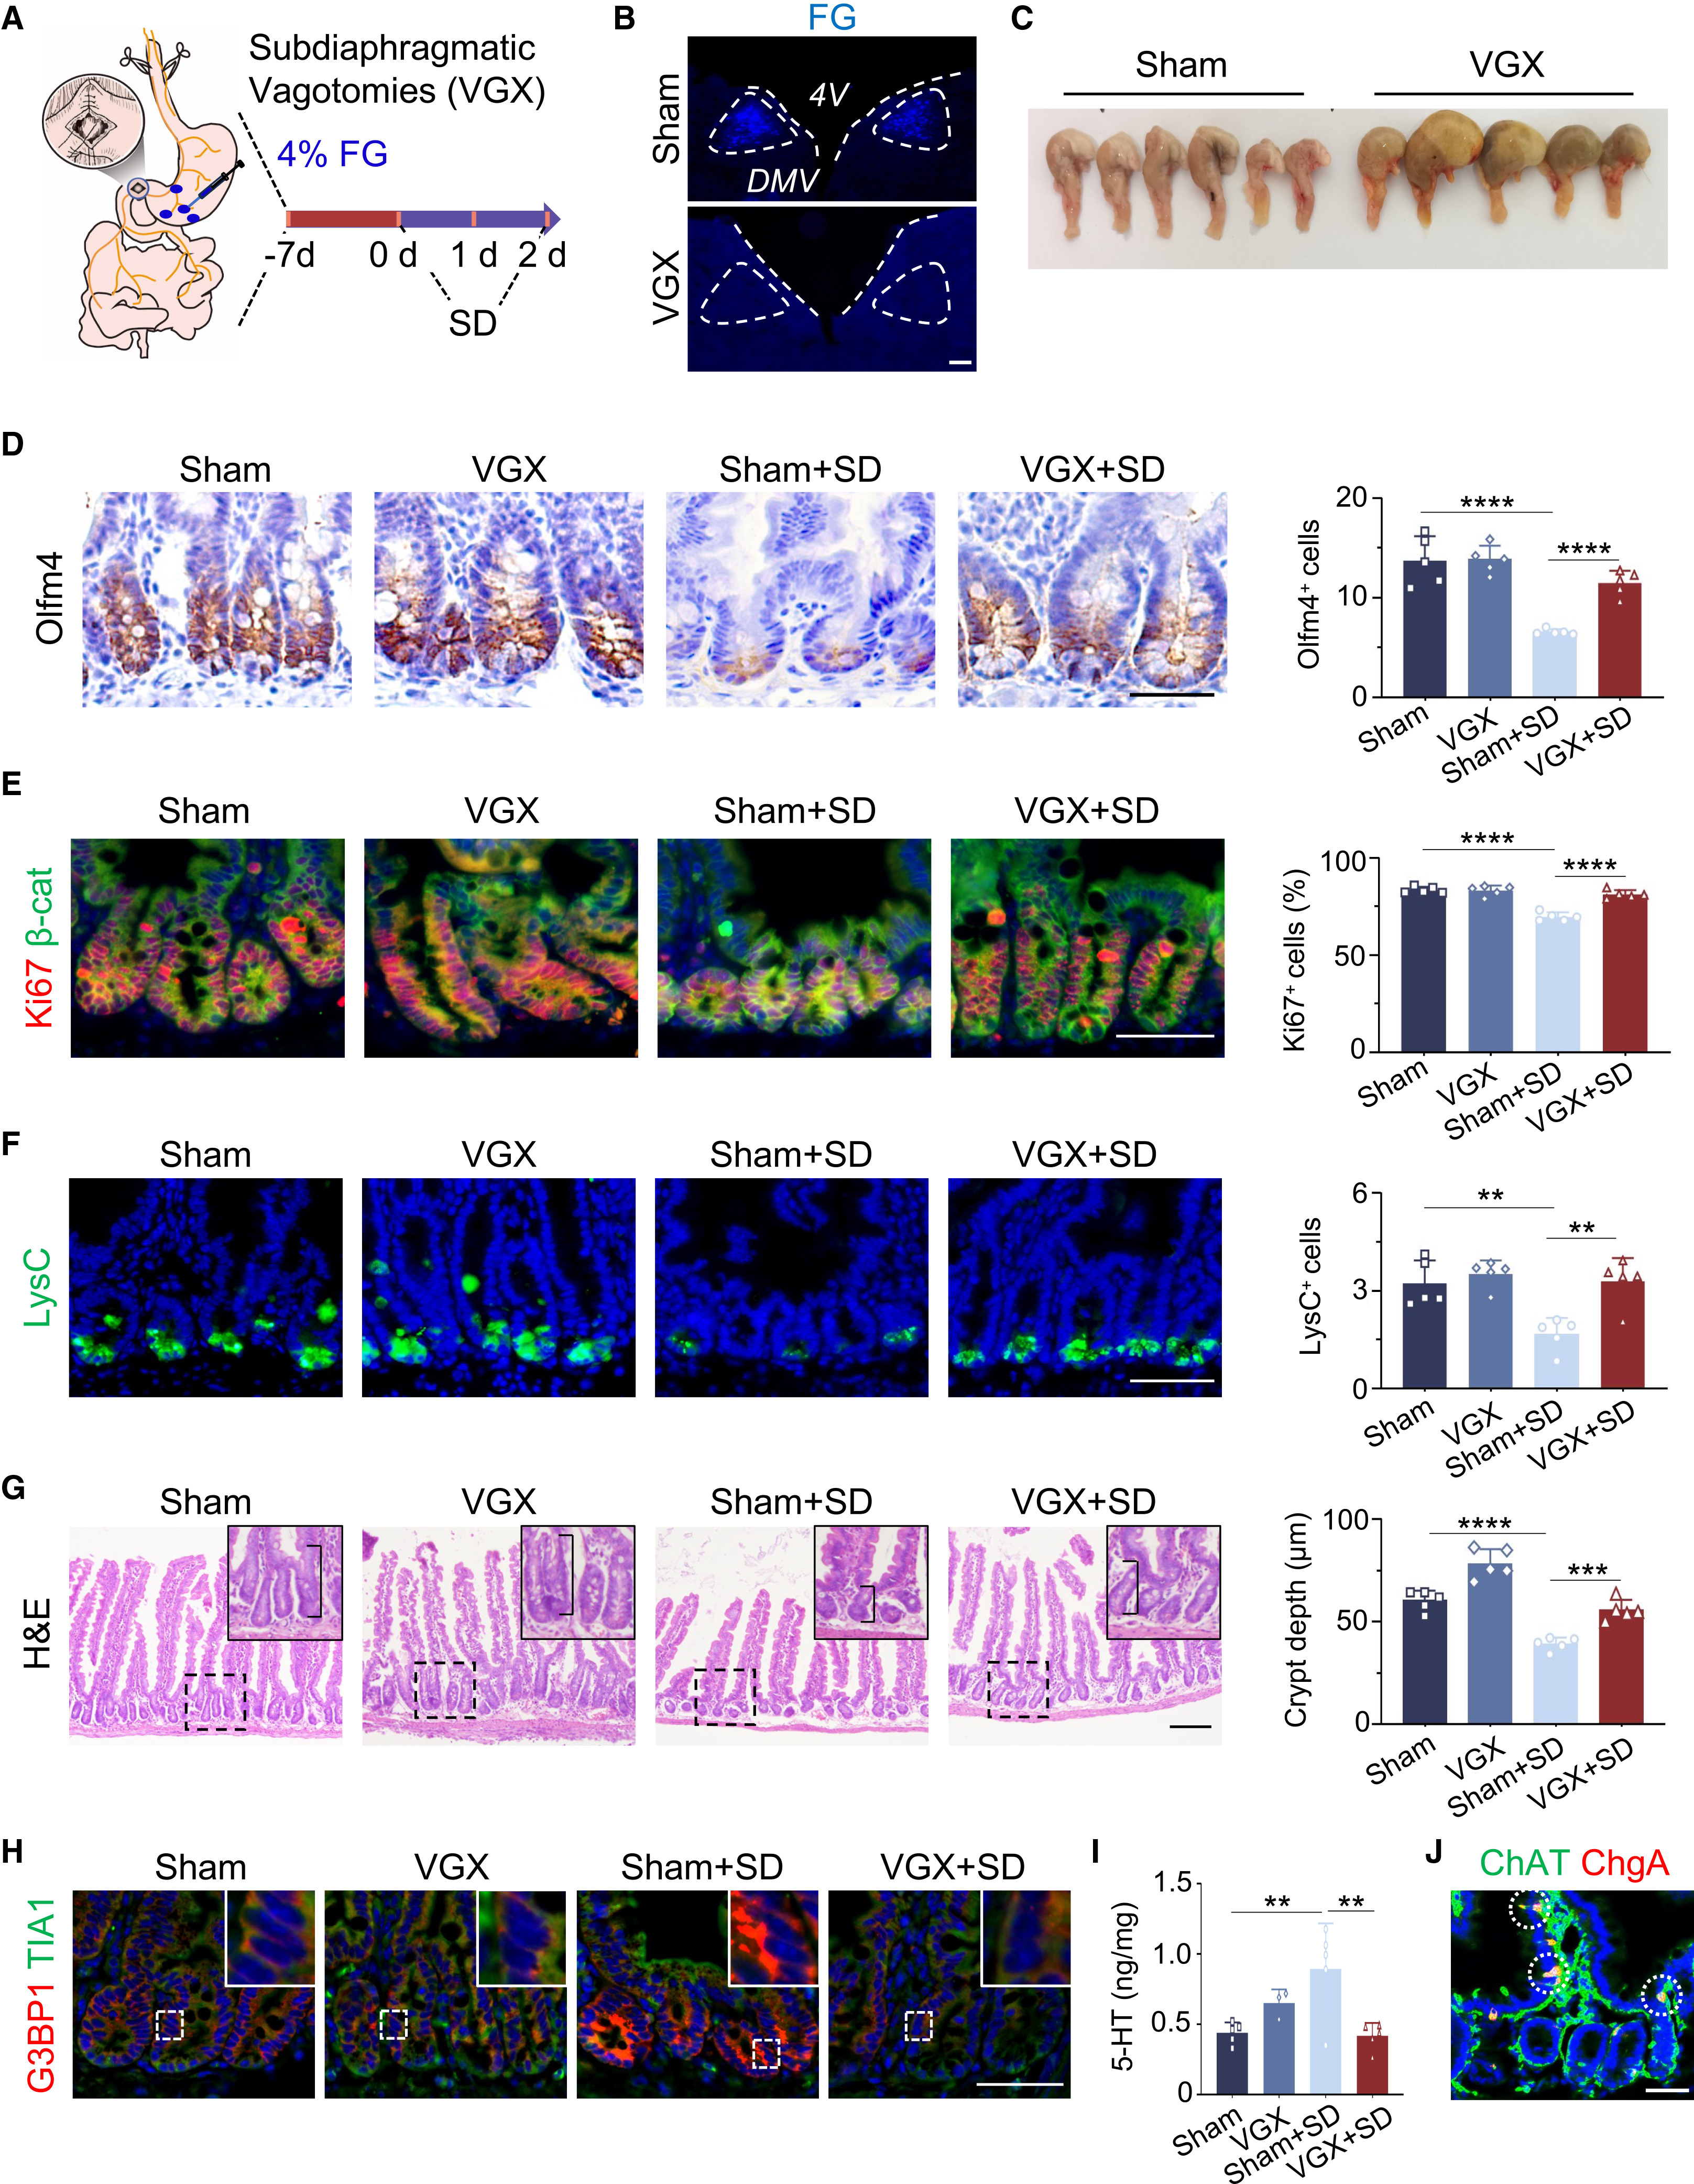
大脑是如何将睡眠剥夺信号传递至肠道并引爆5-HT风暴的?研究团队系统排查了三大脑-肠下行通路:通过肾上腺切除(ADX)或糖皮质激素受体拮抗剂米非司酮阻断HPA轴、以及利用6-羟基多巴胺(6-OHDA)化学损毁交感神经,均无法挽救睡眠剥夺引起的肠道干细胞损伤。然而,实施双侧膈下迷走神经切断术(VGX,经荧光金逆行示踪验证),却彻底阻断了睡眠剥夺诱导的肠道5-HT暴增、SERT下调、隐窝应激颗粒形成以及Olfm4+肠道干细胞和Ki67+增殖细胞的丢失。
作为迷走神经的主要递质,肠道乙酰胆碱(ACh)水平在睡眠剥夺后显著升高,且这一升高可被迷走神经切断术消除。外源给予ACh或胆碱能激动剂卡巴胆碱(carbachol)可直接刺激肠嗜铬细胞释放5-HT并抑制SERT表达;药理学阻断毒蕈碱型胆碱能受体(阿托品AT,而非烟碱型受体拮抗剂六甲溴铵HB),或在肠上皮中特异性敲除M3毒蕈碱型受体(Villin-Cre;Chrm3fl/fl),均能完全消除睡眠剥夺诱发的肠道5-HT升高和肠道干细胞功能障碍。
来源:Mingxin Zhang et al. · Cell Stem Cell · © Elsevier Inc.
查看原图与英文图注 ↗
脑干迷走神经背核胆碱能神经元的持续性异常激活启动脑-肠致病轴
为了在全脑范围内精确定位投射至小肠并被睡眠剥夺激活的上游核团,研究团队在小肠壁注射跨多突触逆行示踪伪狂犬病毒PRV-724,并结合全脑c-Fos免疫荧光筛查。在所有支配肠道的脑区中,仅有脑干迷走神经背核(DMV)在睡眠剥夺后出现显著的PRV+/c-Fos+共标激活,且这种跨突触标记在膈下迷走神经切断后完全消失,证明DMV完全通过迷走神经支配小肠。
在体光纤光度钙成像(在DMV表达GCaMP6s)纵向追踪揭示,睡眠剥夺24小时和48小时均引起DMV神经元自发钙瞬变振幅与频率显著升高;令人警惕的是,即便恢复正常睡眠,DMV神经元的这种异常高兴奋状态仍持续长达7天,直到恢复第14天方才回落至基线。在ChAT-Cre小鼠中,化学遗传学激活(hM3Dq)DMV胆碱能神经元足以在正常睡眠小鼠中诱发肠道ACh与5-HT升高并损伤肠道干细胞;反之,在睡眠剥夺期间利用hM4Di化学遗传学抑制DMV神经元,则显著降低了肠道ACh和5-HT水平,彻底保护了肠道干细胞免受睡眠紊乱的侵害。
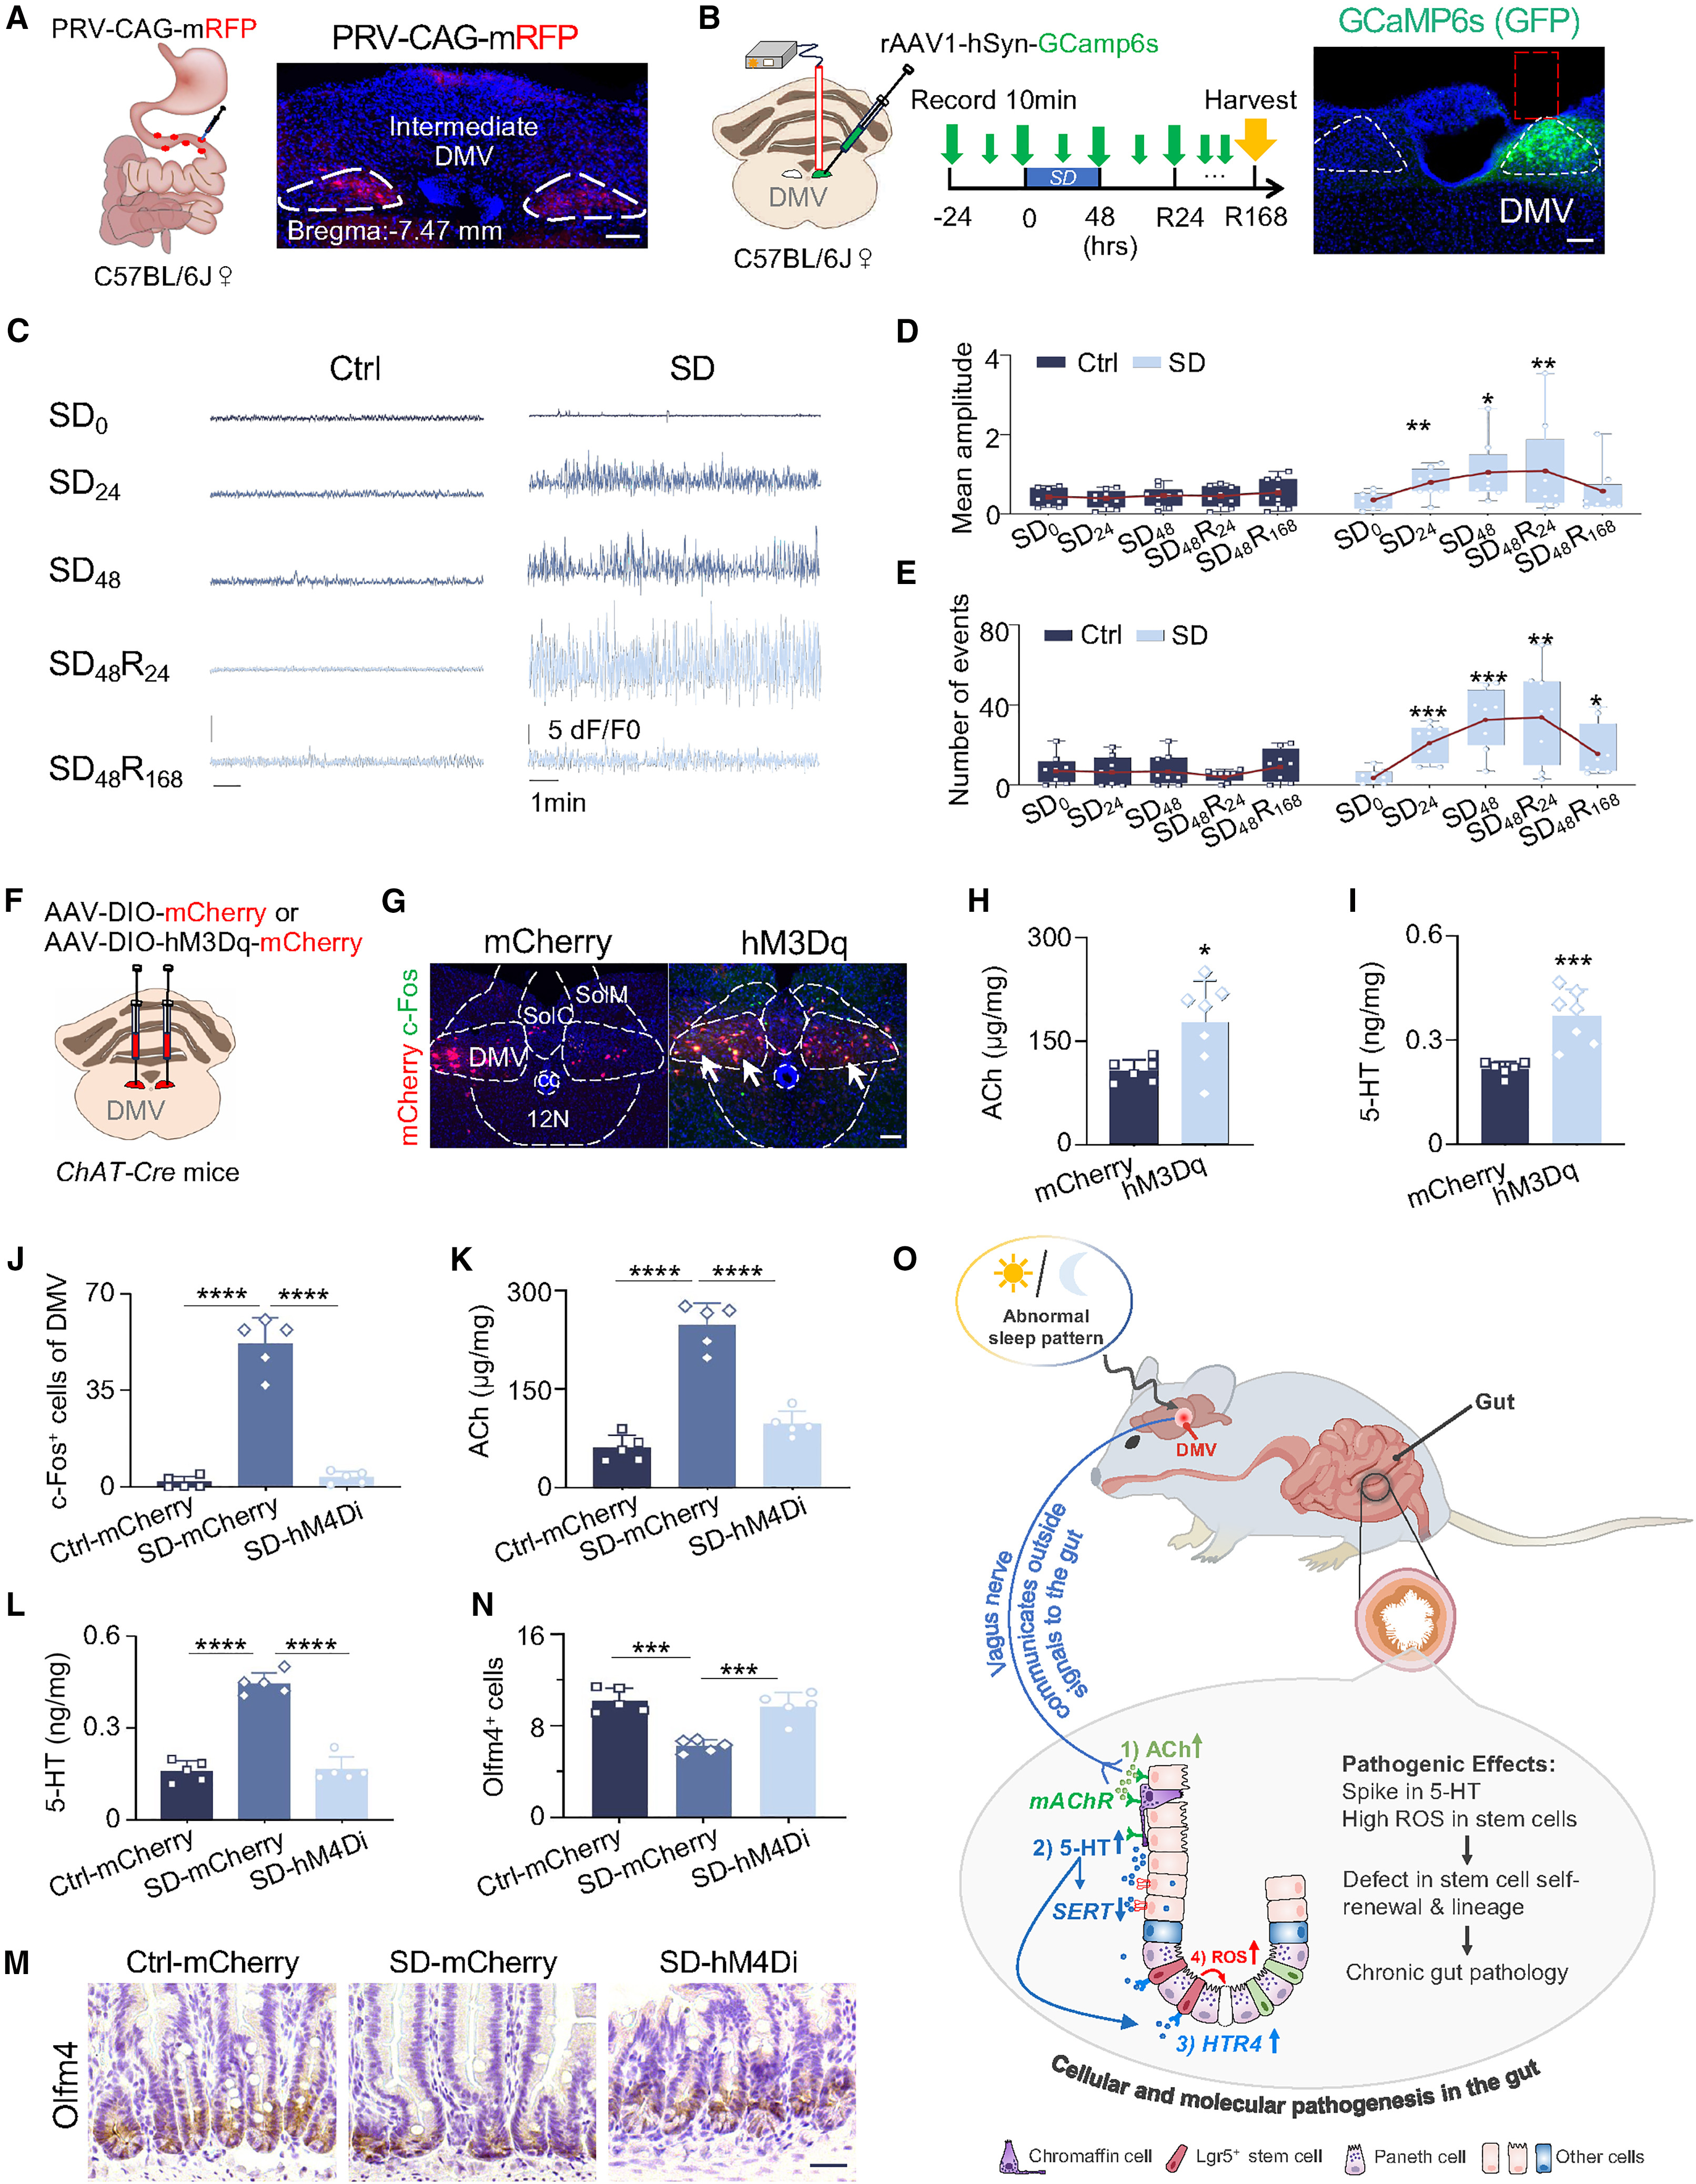
来源:Mingxin Zhang et al. · Cell Stem Cell · © Elsevier Inc.
查看原图与英文图注 ↗