少数细胞如何掀起情绪失衡?下丘脑—外侧缰核回路里的应激起点
小鼠研究在下丘脑与外侧缰核之间识别出一小群应激敏感神经元,追踪它们如何通过突触增强与核内微环路逐步扩大激活范围。
单次急性应激通常只引起外侧下丘脑(LH)与外侧缰核(LHb)中极小比例神经元的激活,但长期反复的慢性应激却能导致LHb广泛过度兴奋并诱发抑郁样行为。这一小群在初次应激中即被激活的“起始神经元”(starter cells)究竟如何通过环路连接与突触可塑性,在慢性应激进程中将局部激活放大为全核团水平的病理重塑,一直是抑郁神经生物学悬而未决的核心问题。 2024年10月9日,浙江大学医学院董一言(Yiyan Dong)博士、崔一卉(Yihui Cui)研究员团队(与邱爽教授等合作)在《Neuron》发表题为“A small population of stress-responsive neurons in the hypothalamus-habenula circuit mediates development of depression-like behavior in mice”的研究论文。研究结合活动依赖性RAM基因标记系统、Cre-on/Cre-off双通道光遗传学脑片膜片钳、40 Hz相位性光刺激突触可塑性诱导、光纤钙成像及突触素示踪,系统阐明了外侧下丘脑中部应激起始神经元(mLH+)优先支配外侧缰核内侧部应激起始神经元(LHbM+),并通过EPSP-簇状放电依赖性可塑性(EBDP)及LHbM+向周围非起始神经元(LHbM-与LHbL-)的核内局部兴奋性连接,在14天慢性束缚应激(CRS)中驱动LHb激活集群由内侧向外侧渐进扩张的完整机制。
急性应激在mLH与LHb中仅激活约7%–8%的“起始神经元”(mLH+与LHbM+);mLH+与LHbM+之间形成高权重优先突触连接并发生40 Hz相位性刺激诱发的EPSP-簇状放电依赖性长时程增强(EBDP),进而通过LHbM+向LHbM-和LHbL-的核内局部兴奋性突触,在14天慢性束缚应激中驱动LHb激活神经元由内侧部(LHbM)向外侧部(LHbL)渐进扩张。
阅读目录 · 5个部分
RAM系统捕获mLH+与LHbM+应激起始神经元,慢性应激期间沉默该集群可预防抑郁样行为
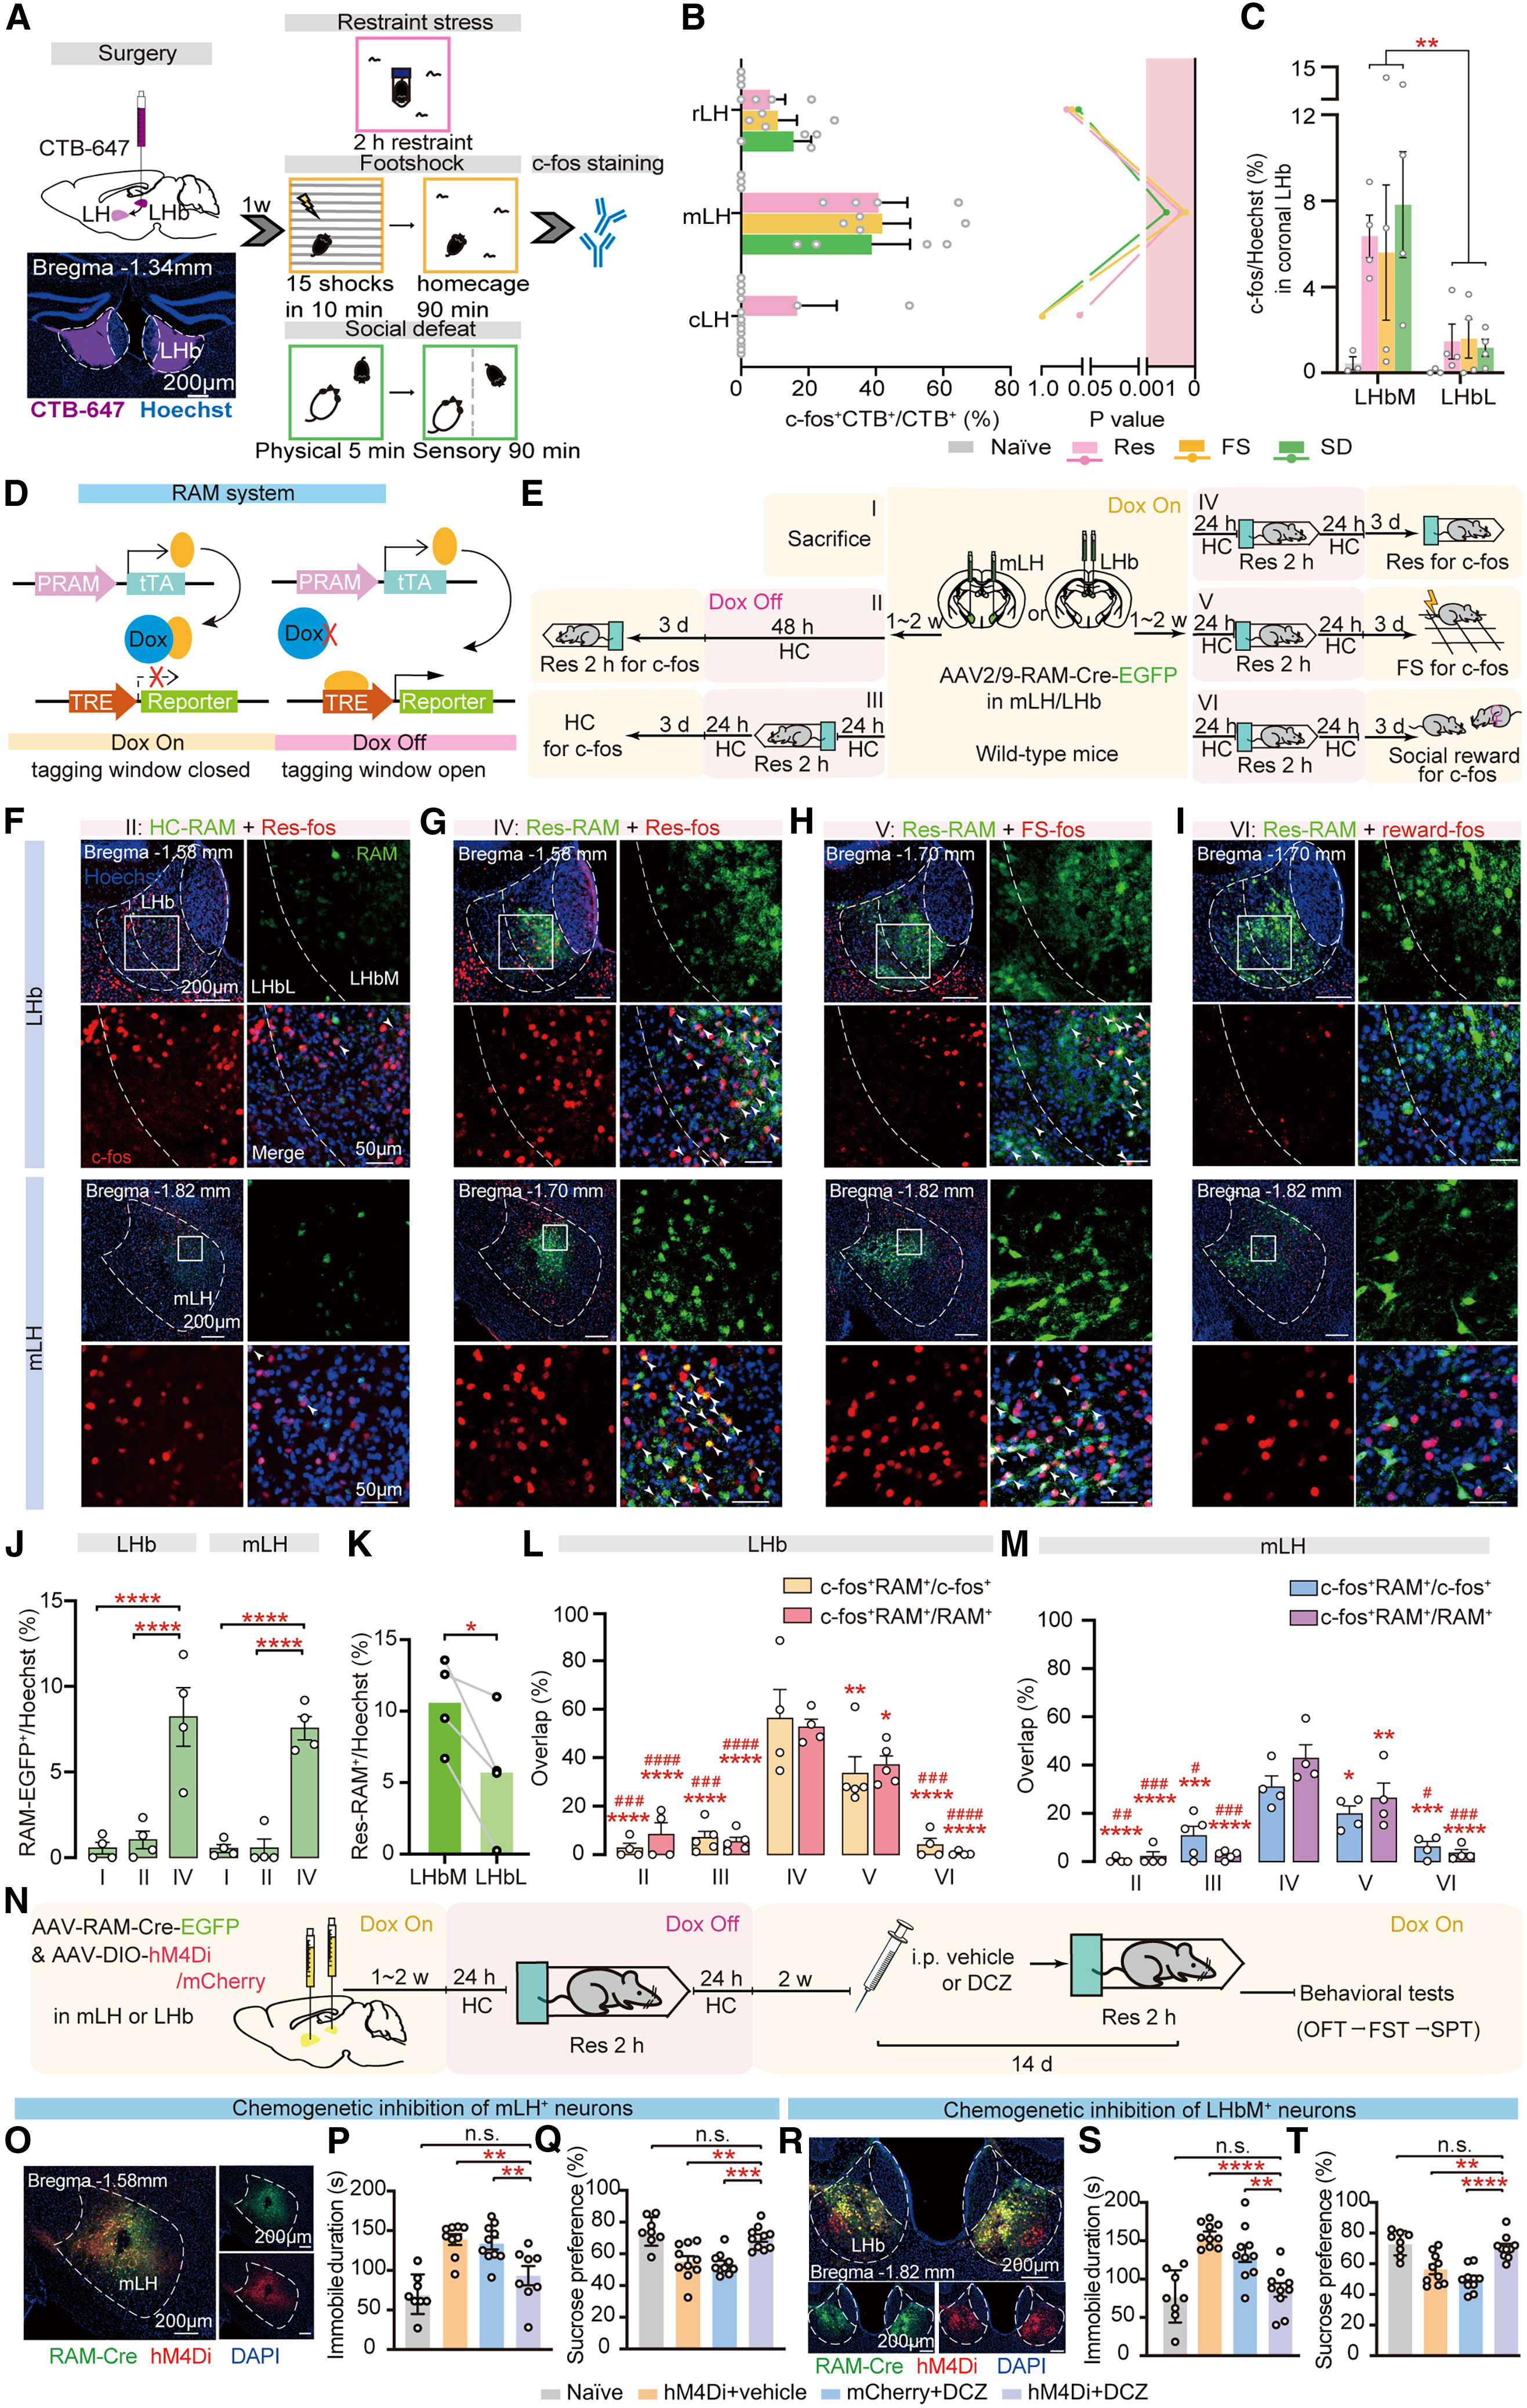
研究团队首先比较了急性束缚(Res)、足底电击(FS)与社交挫败(SD)三种应激范式下的c-fos表达,发现三者均仅激活外侧下丘脑(LH)与外侧缰核(LHb)中约5%的细胞;从LHb注射逆行示踪剂CTB-647证实,投射至LHb的应激激活神经元高度富集于外侧下丘脑中部(mLH,c-fos+CTB+/CTB+比例约40%),而LHb内的c-fos+神经元则主要集中于内侧部(LHbM)而非外侧部(LHbL)。利用四环素调控的RAM系统(AAV-RAM-Cre-EGFP)在单次2小时束缚应激后进行标记,在LHb和mLH中分别捕获了约7%–8%的总细胞(约占LHb NeuN+神经元的10%,主要位于LHbM;占mLH NeuN+神经元的约5%),其在二次束缚重暴露时的重激活效率(LHb 56.22% ± 11.93%,mLH 30.91% ± 4.60%)和特异性(LHb 52.57% ± 3.39%,mLH 42.82% ± 5.64%)均显著高于基线,且与足底电击高度重叠而与雌鼠社交奖赏刺激重叠度仅处于基线水平。
为检验这群初次应激激活的“起始神经元”(mLH+与LHbM+)在慢性应激致郁中的必要性,作者在mLH+或LHbM+神经元中特异性表达抑制性受体hM4Di,并在14天慢性束缚应激(CRS)期间每天束缚前腹腔注射激动剂DCZ(10 μg/kg)进行同步沉默。行为学测试显示,在CRS期间沉默mLH+或LHbM+起始神经元均可完全预防强迫游泳测试(FST)不动时间增加及糖水偏好测试(SPT)快感缺失表型的发生。
来源:Zhiwei Zheng et al. · Neuron · © Elsevier Inc.
查看原图与英文图注 ↗
mLH+起始神经元与LHbM+起始神经元之间形成高响应率、高突触权重的优先兴奋性连接
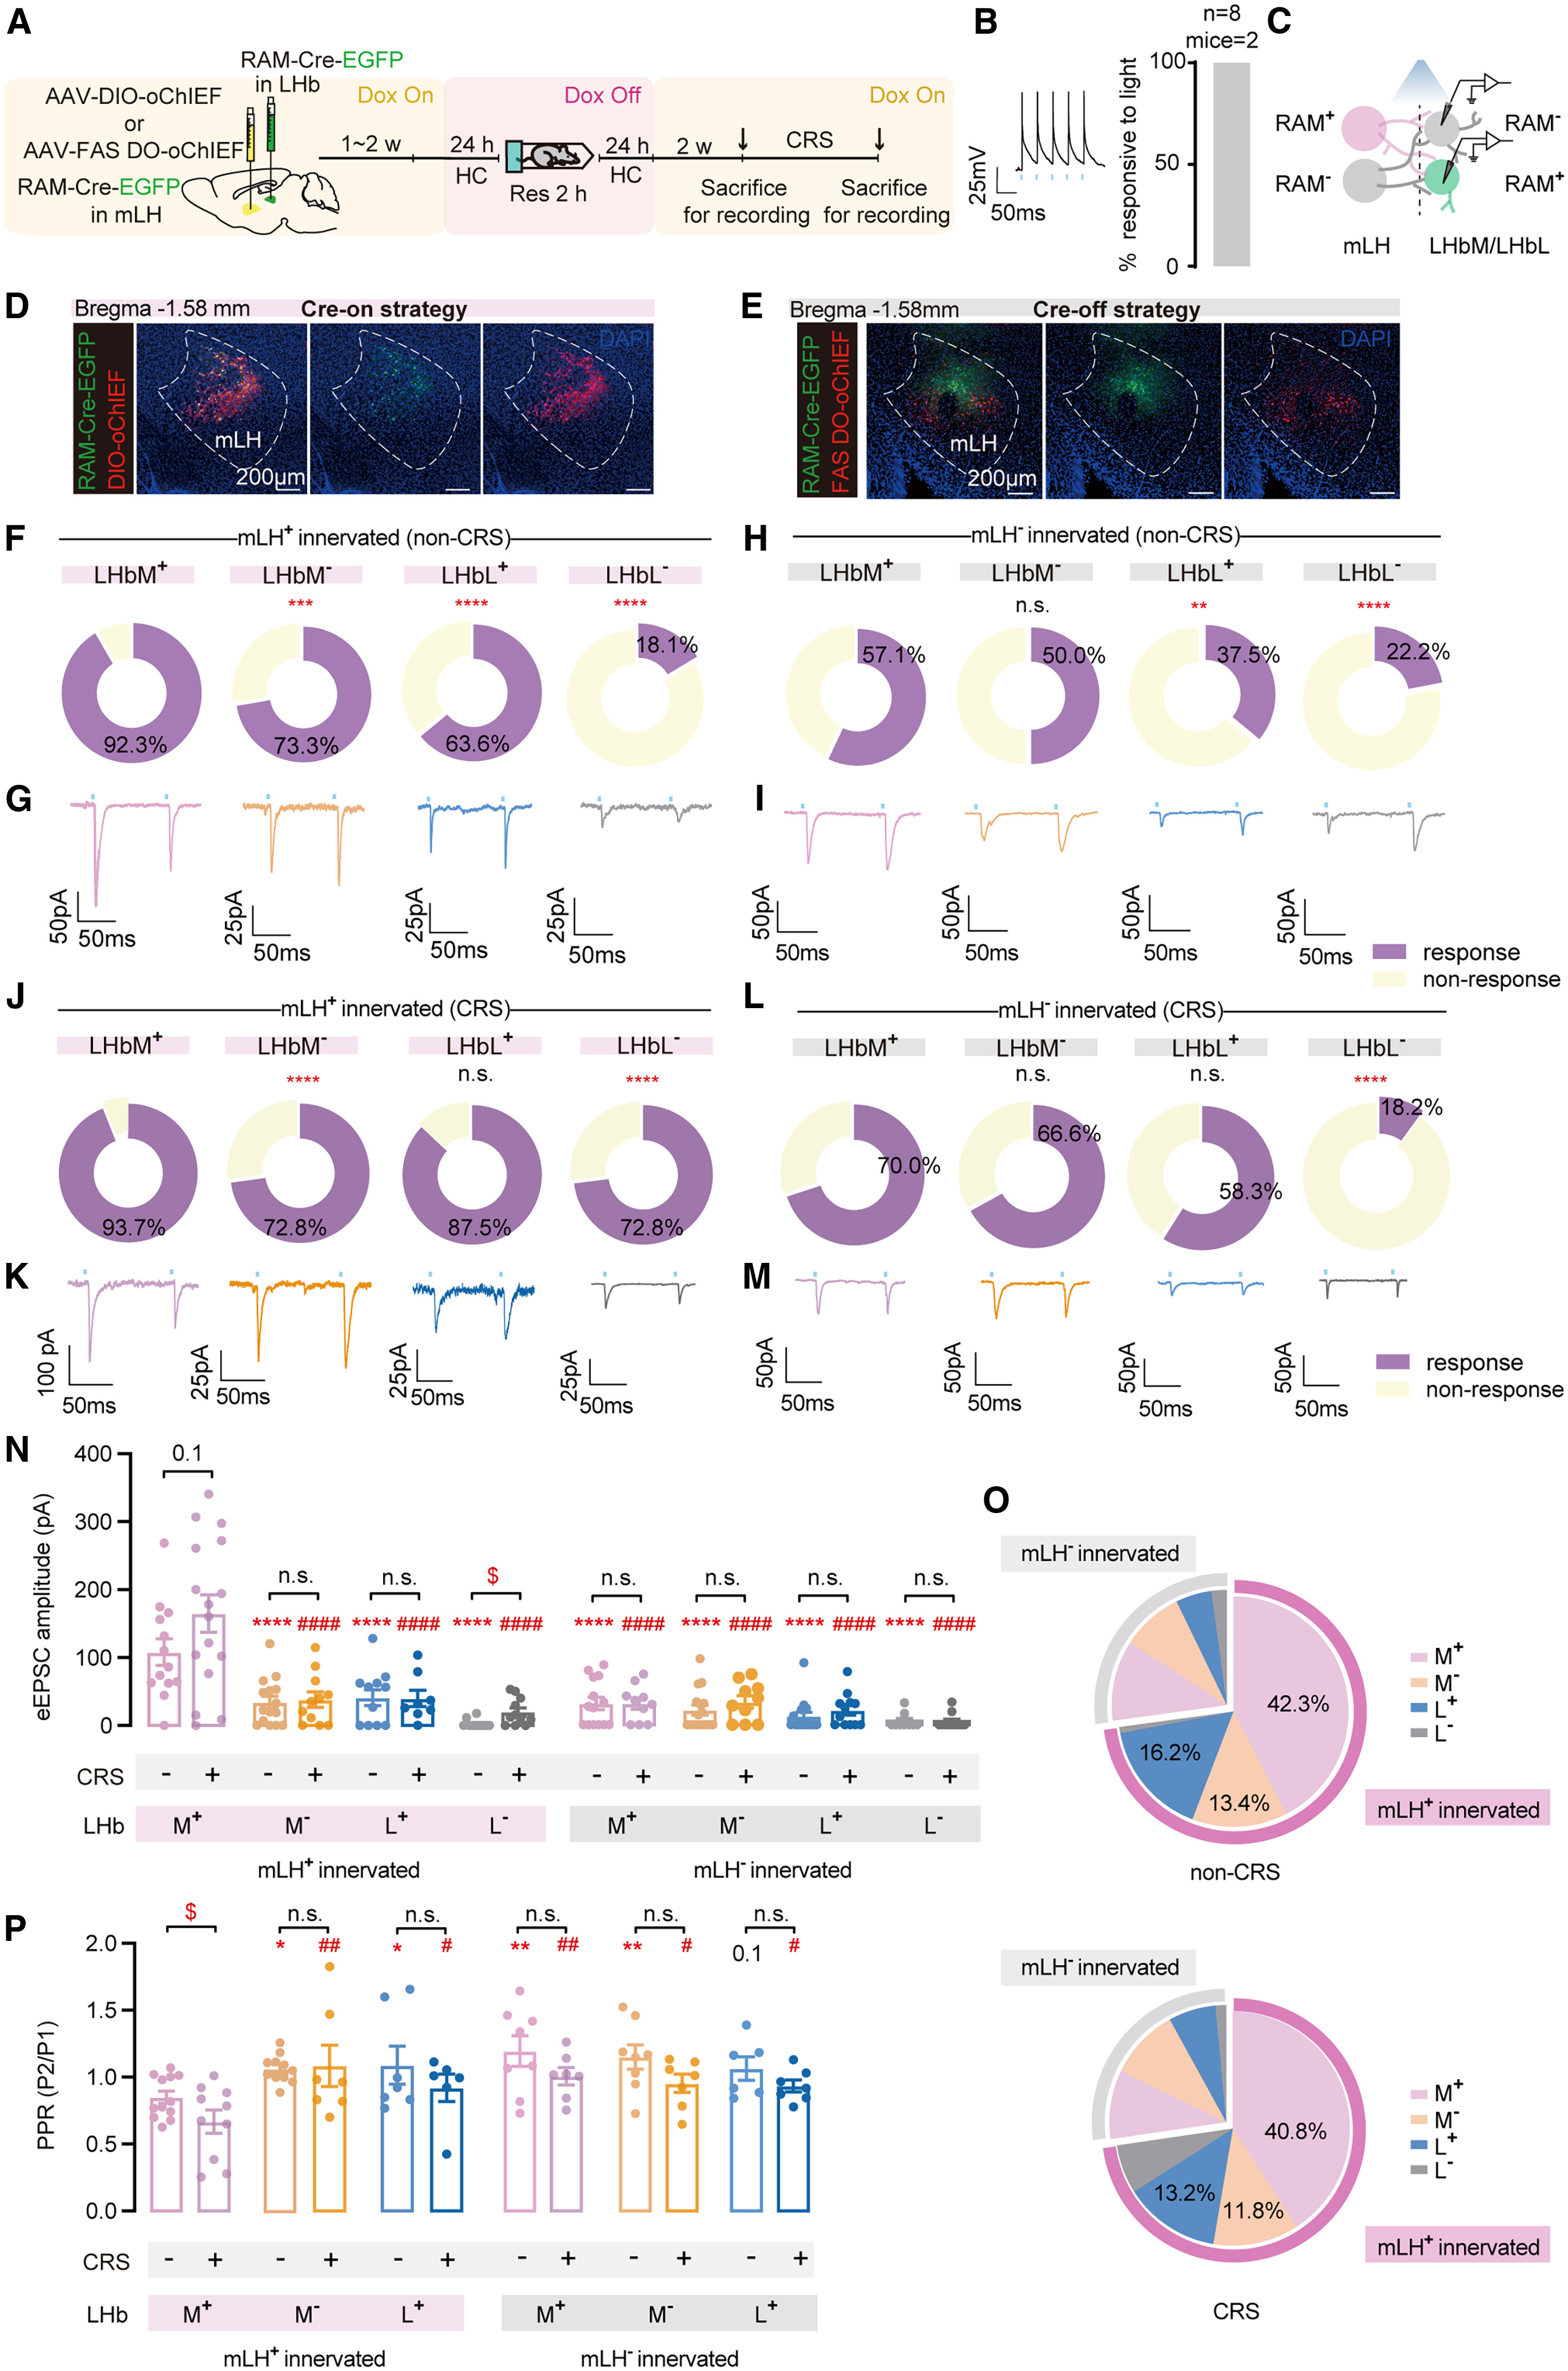
mLH内的应激起始神经元(mLH+)与非起始神经元(mLH-)如何支配下游LHb的不同空间与功能亚群?作者结合RAM系统与Cre-on(AAV-DIO-oChIEF)或Cre-off(AAV-FAS-DO-oChIEF)光遗传学策略,在区分LHb内四个亚群——内侧部起始细胞(LHbM+)、内侧部非起始细胞(LHbM-)、外侧部起始细胞(LHbL+)与外侧部非起始细胞(LHbL-)的基础上开展离体脑片全细胞膜片钳记录。在未经历慢性应激的小鼠中,光激活mLH+投射终末在LHbM+神经元中诱发兴奋性突触后电流(eEPSC)的响应比例高达92.3%(显著高于LHbM-的73.3%、LHbL+的63.6%及LHbL-的18.1%),而光激活mLH-终末在四个亚群中的响应比例则明显较低(分别为57.1%、50.0%、37.5%和22.2%)。
定量分析进一步显示,mLH+→LHbM+子环路不仅具有最大的eEPSC幅值、占据最大的总突触权重份额(synaptic weight),还表现出更低的配对脉冲比(PPR,提示更高的突触前谷氨酸释放概率)。经历14天CRS后,mLH+→LHbM+突触继续保持最大的eEPSC幅值与突触权重,且其PPR在CRS后进一步显著下降,证实mLH+→LHbM+优先连接通道在慢性应激中被选择性强化。
来源:Zhiwei Zheng et al. · Neuron · © Elsevier Inc.
查看原图与英文图注 ↗
40 Hz相位性刺激在mLH+→LHbM+突触选择性诱导EPSP-簇状放电依赖性LTP(EBDP)并驱动抑郁样行为
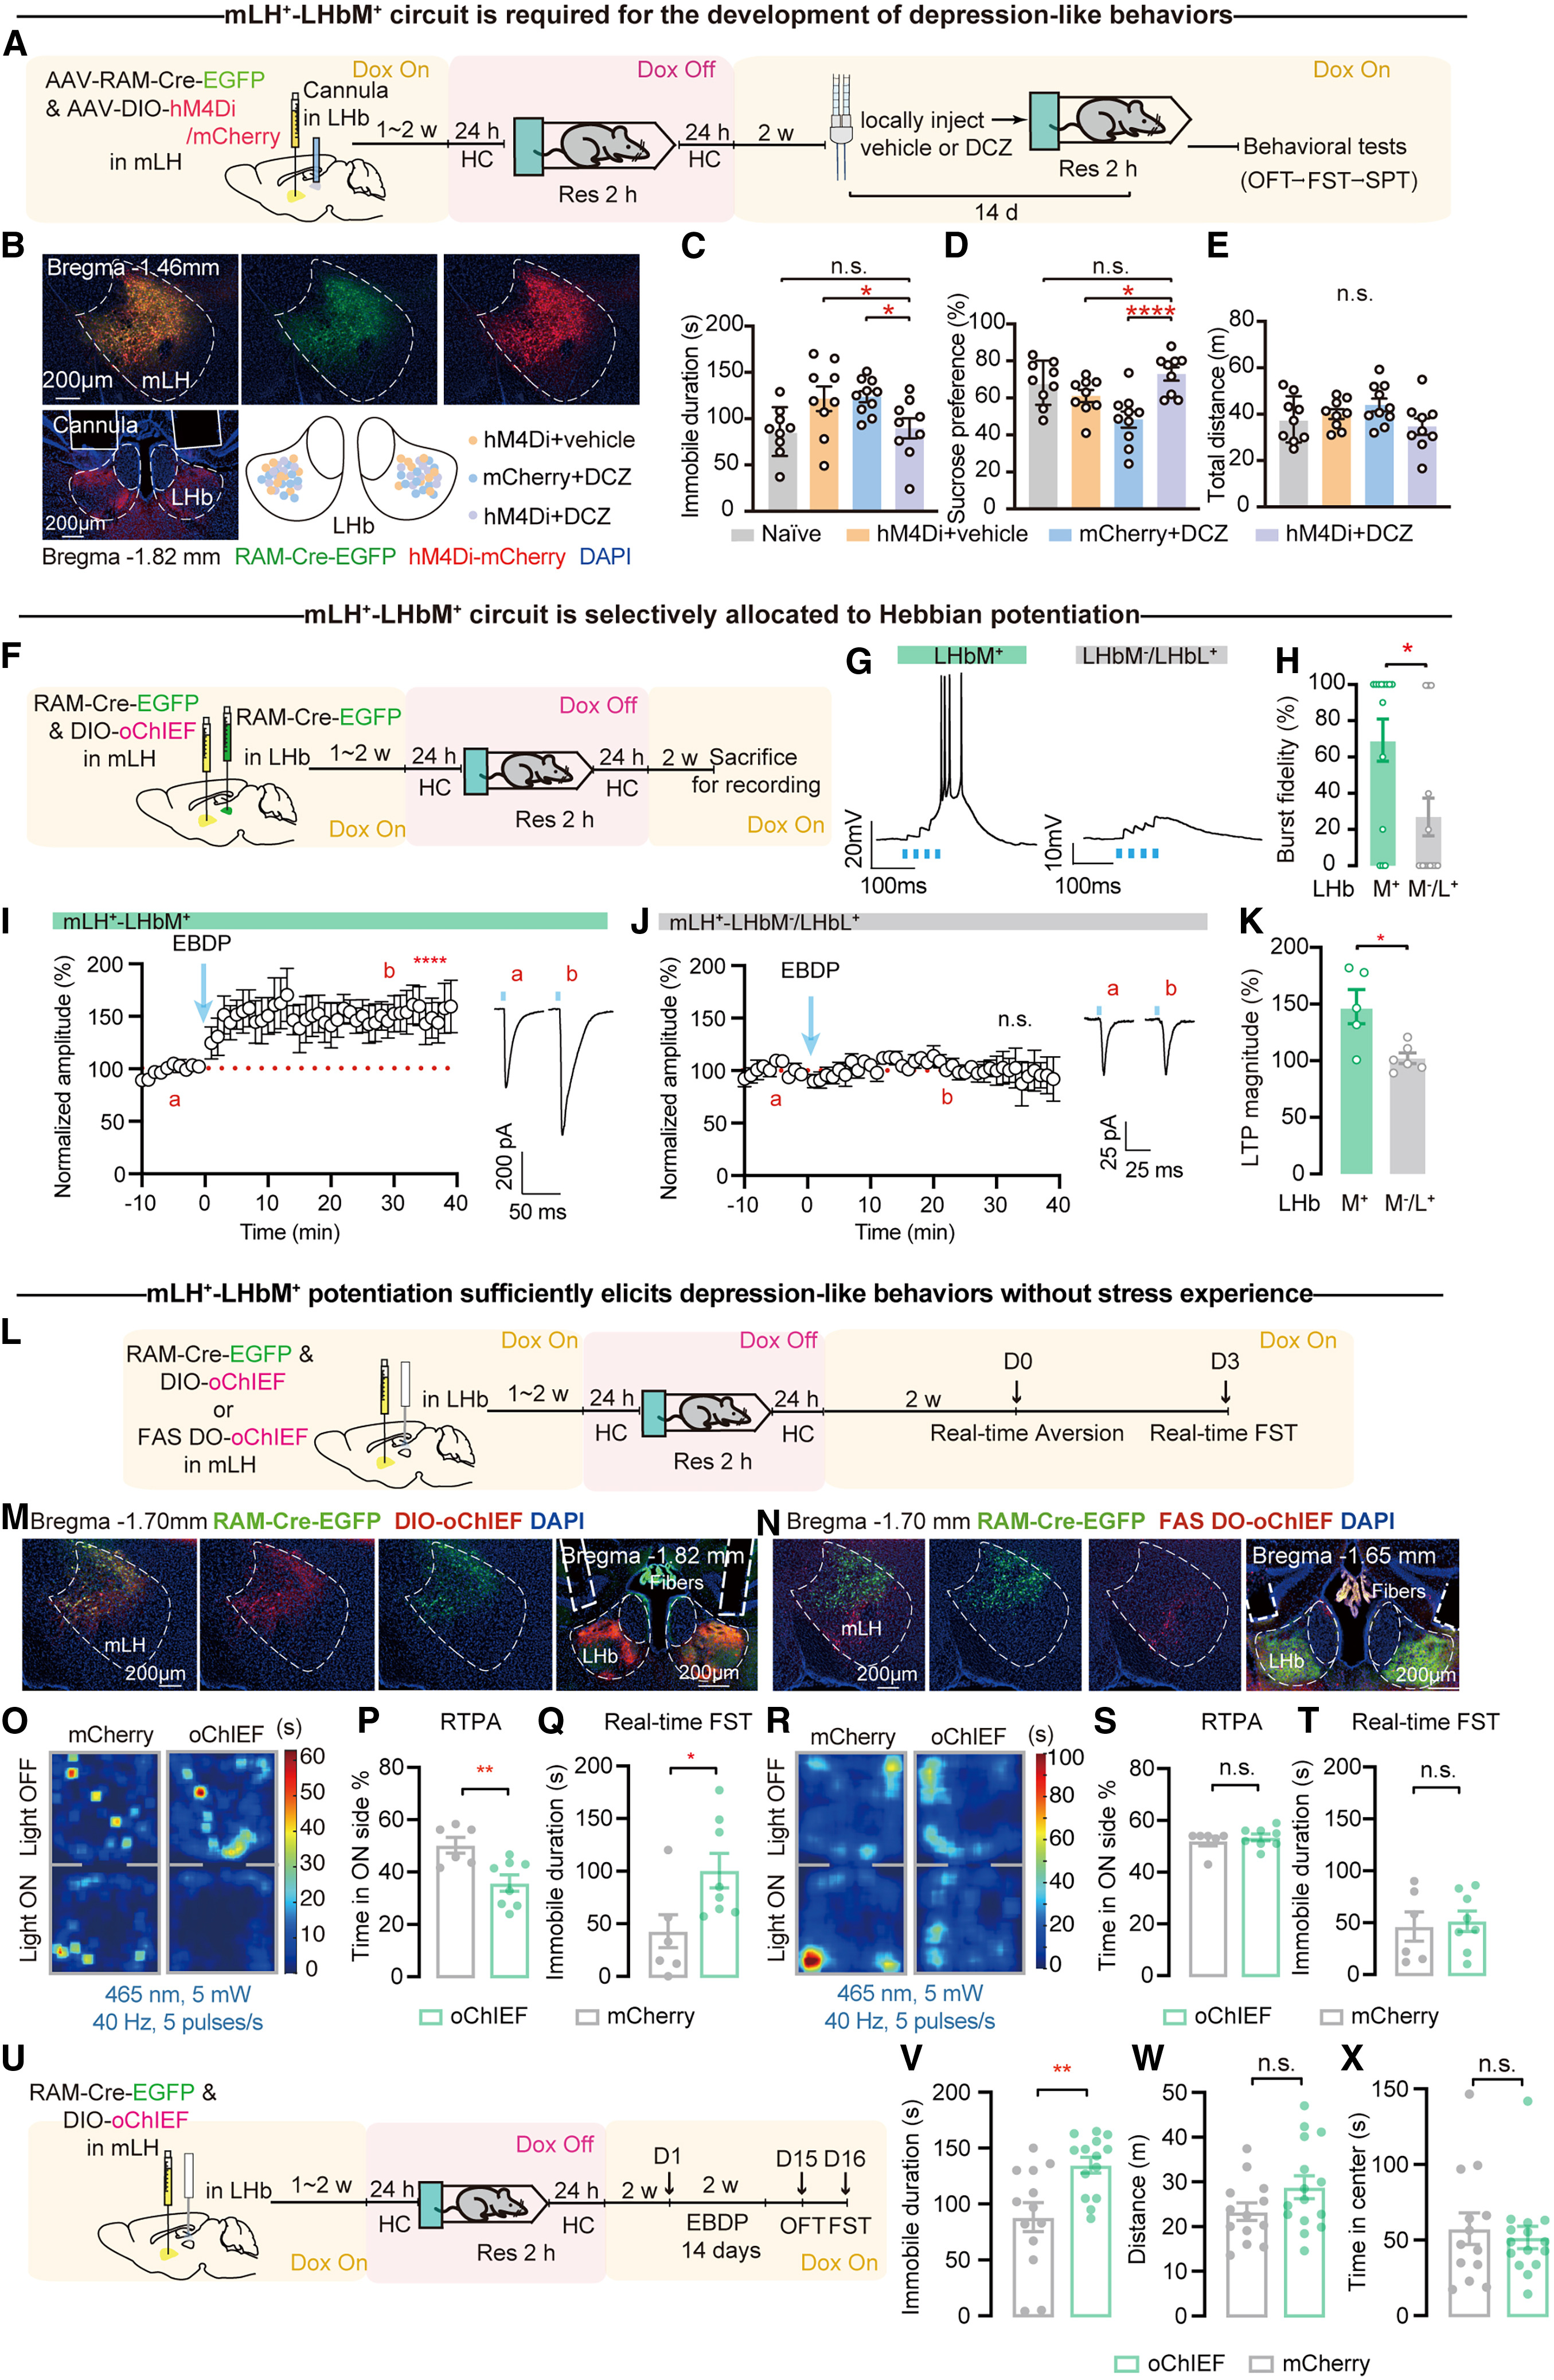
通过在LHb内局部微注射DCZ,在14天CRS每天束缚期间特异性化学遗传学沉默mLH+→LHb轴突终末,即可阻断CRS诱导的FST不动时间增加与SPT糖水偏好下降(而不影响旷场运动,且沉默mLH-终末无此保护效应,Figure S3)。为解析mLH+→LHbM+突触在应激中强化的可塑性机制,作者在离体脑片上对mLH+终末施加模拟应激放电的40 Hz相位性光刺激(4脉冲/秒,持续10秒,重复20次)。记录显示,该刺激在LHbM+神经元中高频诱发“兴奋性突触后电位-突触后簇状放电”配对事件(EPSP-burst pairings),进而选择性在mLH+→LHbM+突触上诱导出持久的EPSP-簇状放电依赖性长时程增强(EBDP,一种赫布型LTP),而在LHbM-或LHbL+神经元中均未能诱导出EBDP。
在体行为学实验进一步证实,在无应激小鼠中对mLH+→LHb通路施加40 Hz相位性光刺激(而非刺激mLH-→LHb通路),不仅可在刺激当下即时诱发实时位置厌恶(RTPA)及实时强迫游泳测试中的不动行为增加,而且连续14天进行慢性EBDP光刺激诱导后,在停止光刺激2天后的测试中仍能使小鼠表现出持久的FST绝望不动时间延长。
来源:Zhiwei Zheng et al. · Neuron · © Elsevier Inc.
查看原图与英文图注 ↗
LHbM+起始神经元通过核内局部兴奋性突触驱动非起始神经元(LHbM-与LHbL-)在CRS后广泛超兴奋
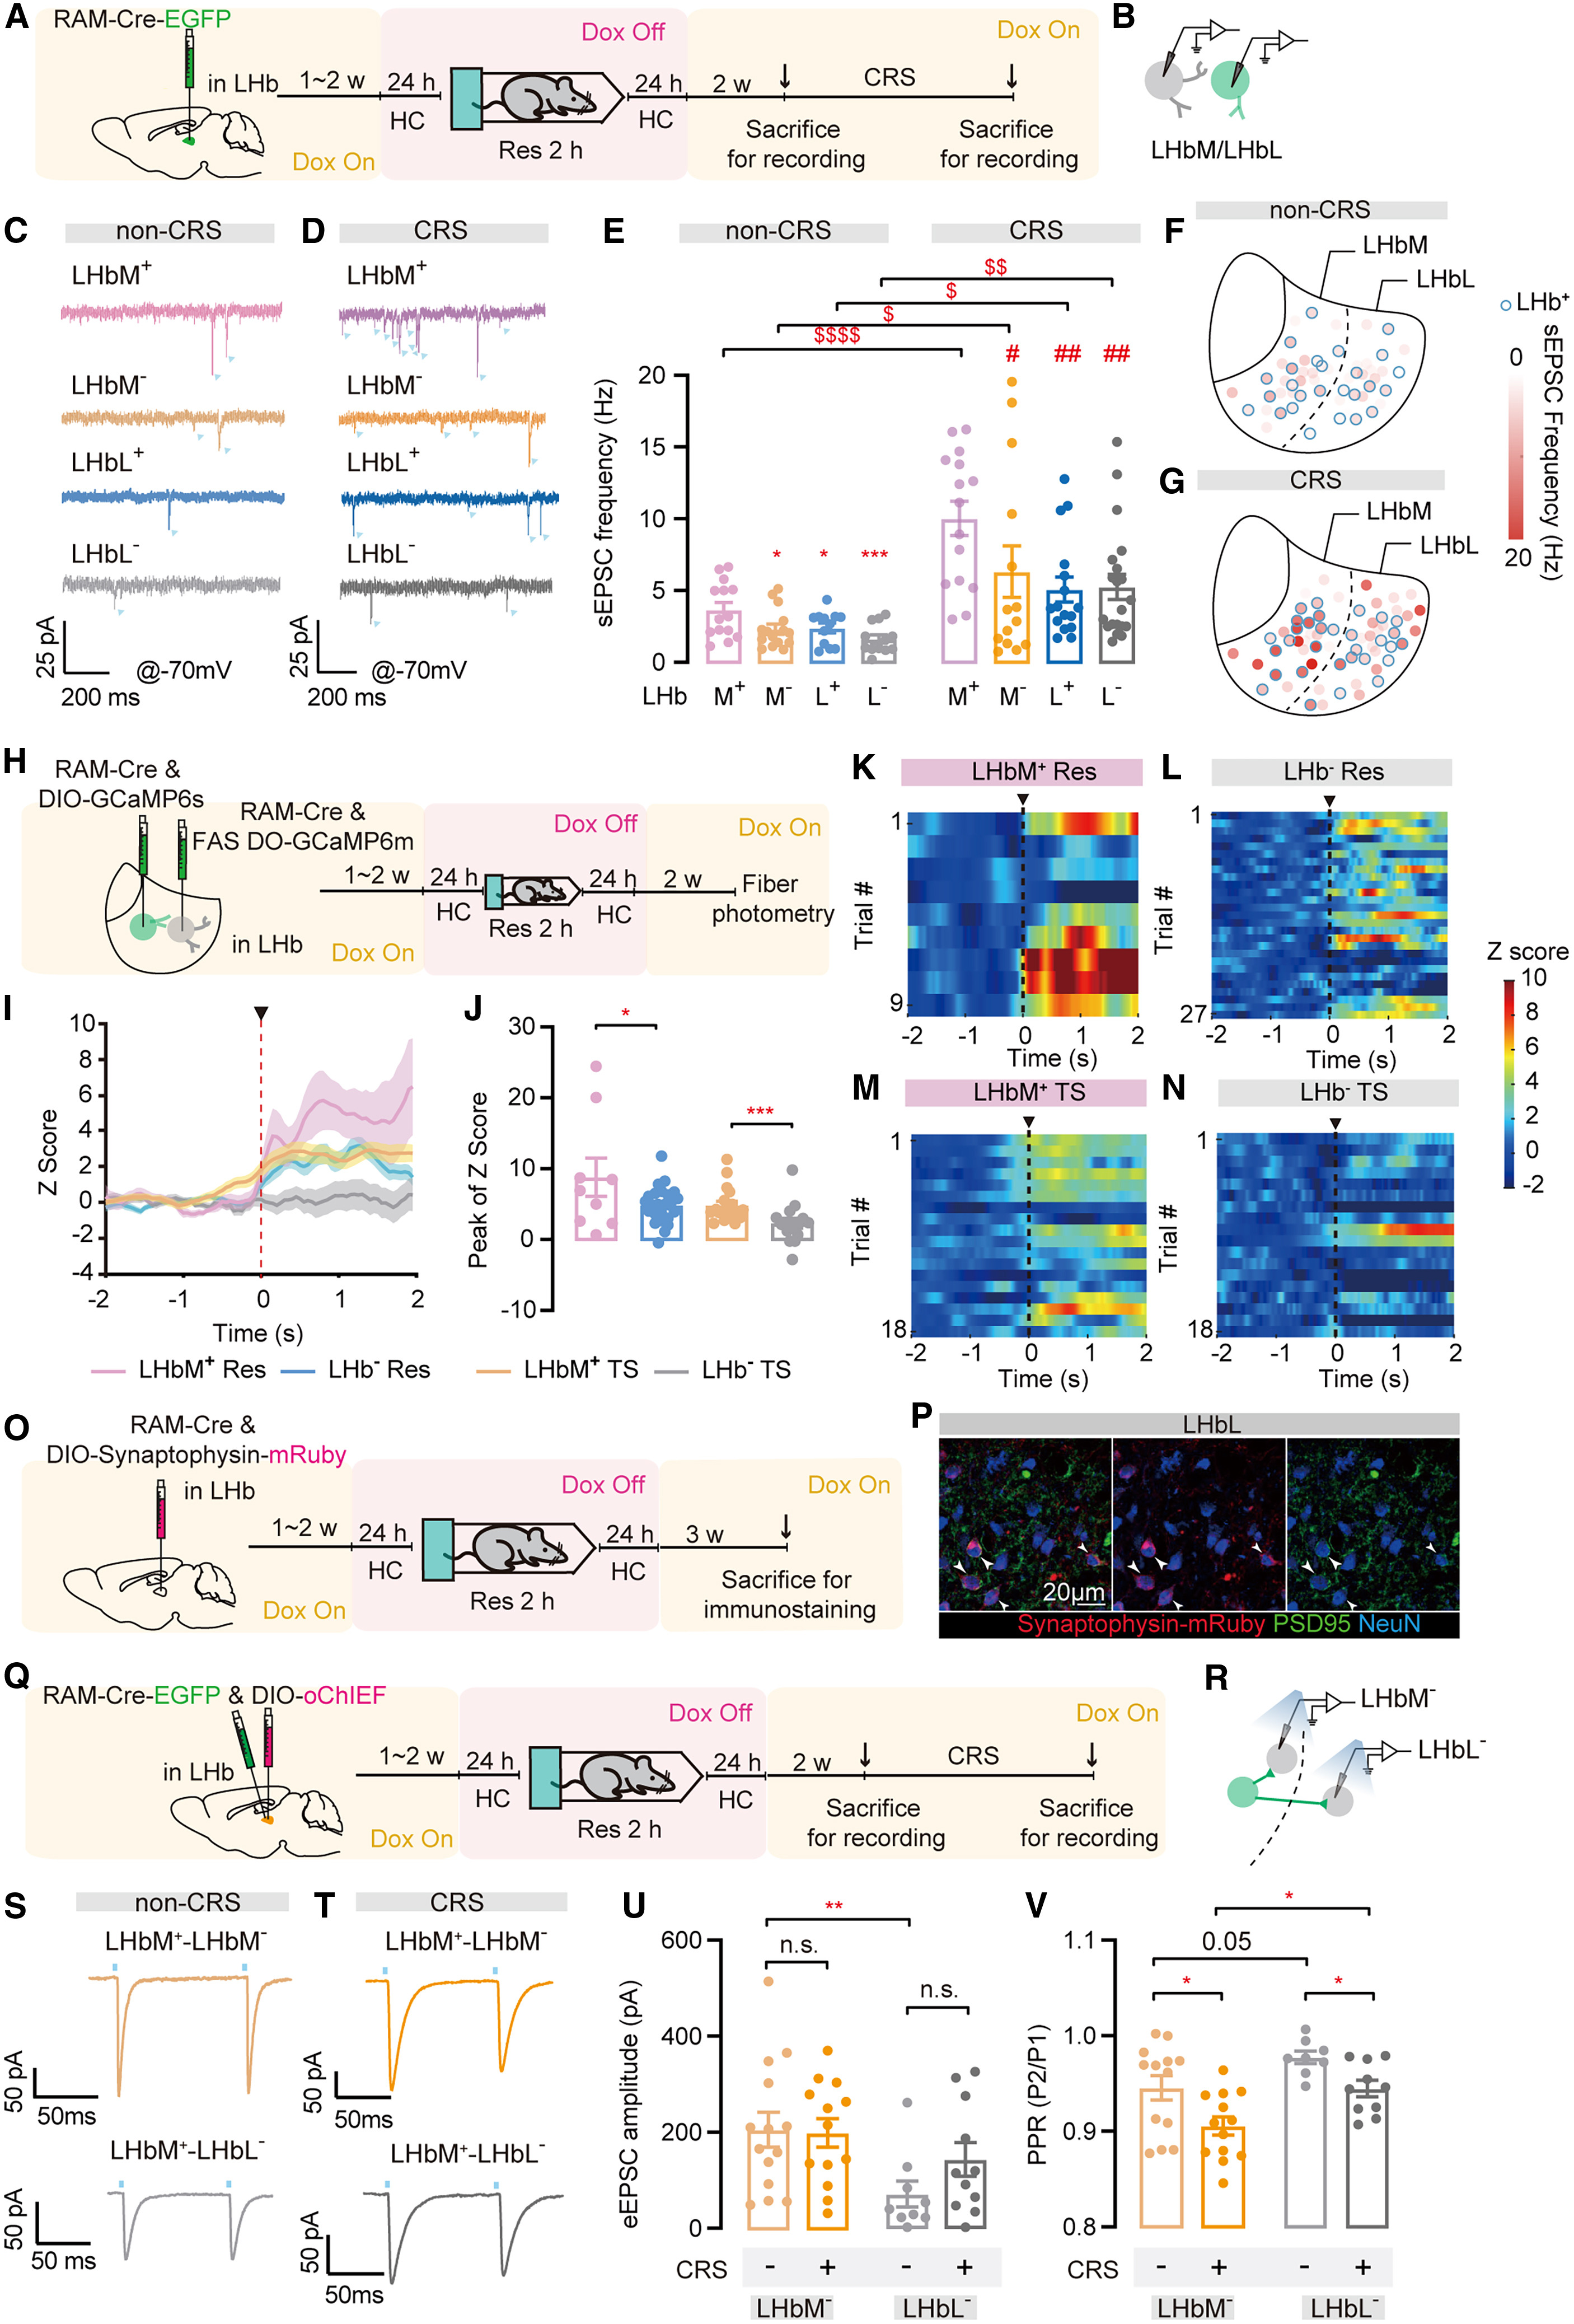
既然mLH+输入主要集中在LHbM+起始神经元,慢性应激为何能使整个LHb过度活跃?脑片记录与在体GCaMP6s光纤钙成像显示,在非CRS对照状态下,LHbM+起始神经元的自发兴奋性突触后电流(sEPSC)频率显著高于其他三个亚群,且在束缚(Res)与悬尾(TS)应激中表现出比非起始神经元(LHb-)更强的在体钙信号反应;而在经历14天CRS后,LHb全部四个神经元亚群(LHbM+、LHbM-、LHbL+、LHbL-)的sEPSC频率均出现了2至3倍的剧烈升高,且LHb-神经元在应激中的在体钙反应也大幅增强。
为揭示这一核内扩散的解剖与生理基础,作者在LHbM+神经元中Cre依赖性表达突触前标志物synaptophysin-mRuby,发现其轴突终末在LHbL内与突触后致密蛋白PSD95及神经元标志物NeuN紧密共定位。此外,在LHbM+神经元中表达oChIEF并对周围非起始神经元进行膜片钳记录证实:LHbM+起始神经元与LHbM-及LHbL-神经元之间存在直接的核内局部单突触谷氨酸能连接(基础状态下LHbM+→LHbM-的eEPSC幅值约为LHbM+→LHbL-的3.5倍),且经历14天CRS后,LHbM+→LHbM-与LHbM+→LHbL-两条核内局部通路的配对脉冲比(PPR)均显著下降(突触释放增强)。
来源:Zhiwei Zheng et al. · Neuron · © Elsevier Inc.
查看原图与英文图注 ↗
分阶段RAM标记直观揭示慢性束缚应激进程中LHb激活集群由内侧部(LHbM)向外侧部(LHbL)渐进扩张
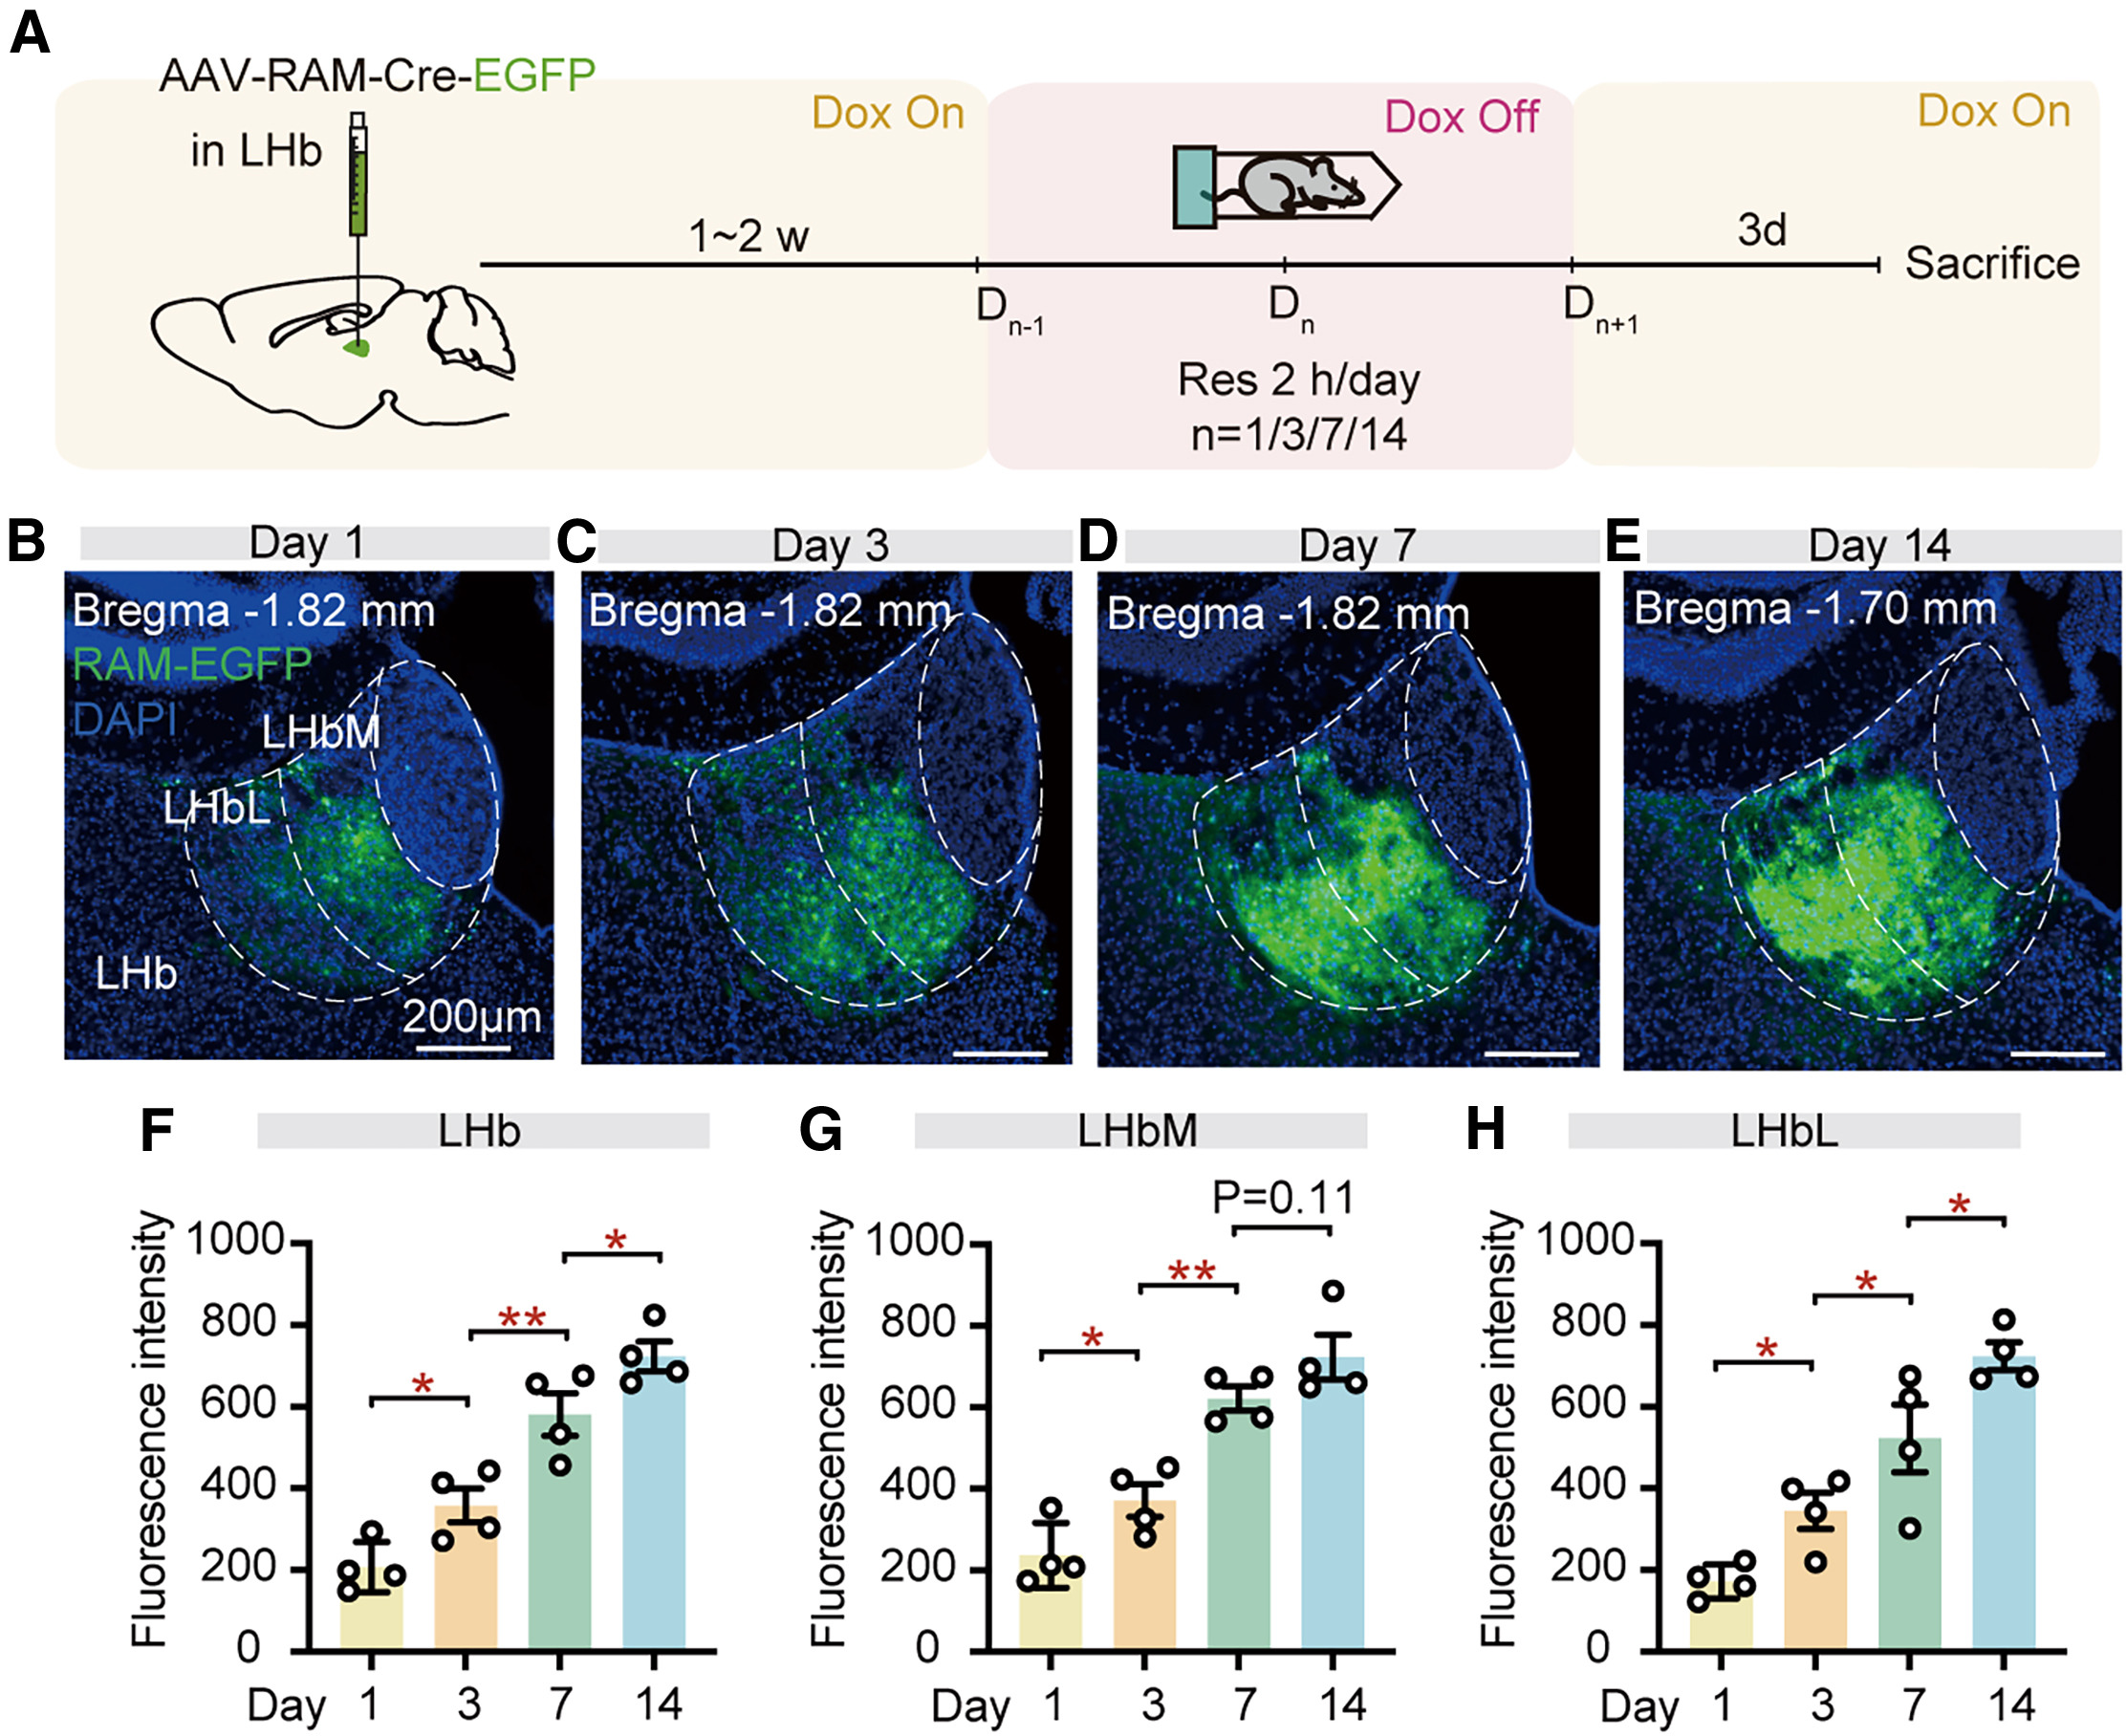
最后,研究团队利用分阶段RAM标记策略(在LHb注射AAV-RAM-Cre-EGFP),分别在慢性束缚应激(CRS)的第1天、第3天、第7天或第14天撤除多西环素以捕获各时间点被应激招募的LHb+神经元,直观追踪了激活集群在慢性应激全周期中的空间演化轨迹。
全核团荧光分布定量显示,随着应激天数的增加,被招募的LHb+神经元总数显著递增并呈现出清晰的“由内向外”两阶段扩张模式:在CRS第1天至第7天,新增招募的应激神经元主要在外侧缰核内侧部(LHbM)内快速累积;而从第1天至第14天(尤其是第7天至第14天抑郁样行为形成期),激活集群进一步向外侧缰核外侧部(LHbL)显著扩展。综上,该研究完整揭示了“mLH+→LHbM+优先连接与EBDP可塑性→LHbM+经核内兴奋性微环路逐步招募LHbM-与LHbL-神经元”的抑郁形成环路机制。
来源:Zhiwei Zheng et al. · Neuron · © Elsevier Inc.
查看原图与英文图注 ↗