海马CA3的双重信号:CCK如何参与空间学习?
快速兴奋性传递之外,CA3细胞还提供肽信号。小鼠研究沿着CA3–CA1连接,将CCK释放、空间探索和突触增强联系起来。
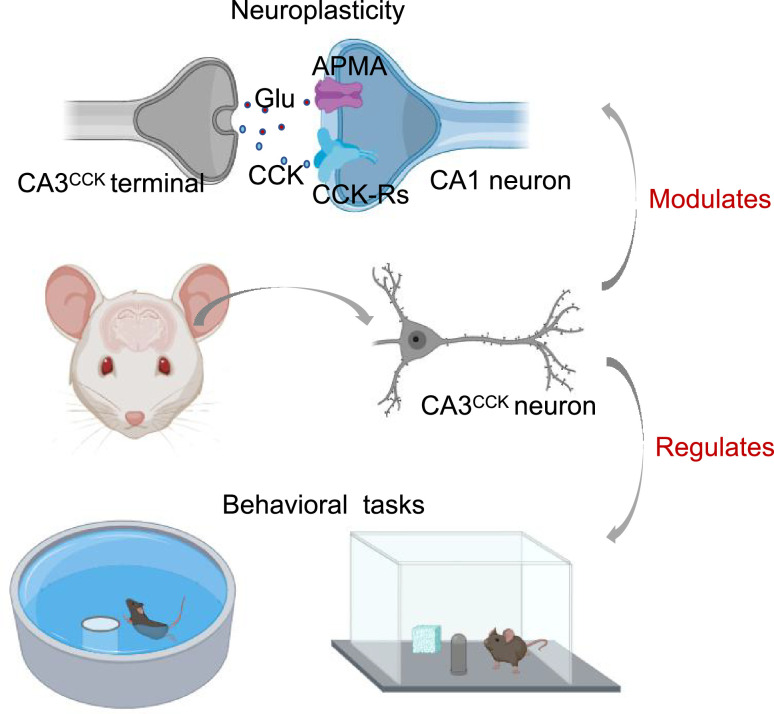
找到平台,认出换过位置的物体,这些空间任务背后需要海马不断处理信息。快速突触传递之外,肽信号又扮演什么角色?研究者将目光投向背侧海马CA3的一群兴奋性CCK细胞:它们向CA1输出,受到刺激时释放胆囊收缩素,在学习中呈现活动变化,也影响后续的任务表现和突触增强。
抑制CA3 CCK输出或降低其Cck表达,都会削弱空间任务表现和长时程突触增强;CCK为这条兴奋性连接增加了一层肽调节。
阅读目录 · 6个部分
熟悉的CCK标签,指向另一类细胞
胆囊收缩素(CCK)既是一种肽信号,也常用于描述特定神经元群。海马研究中,CCK 最常与抑制性中间神经元联系在一起,这些细胞调节兴奋性输入输出。但表达同一种肽的细胞不一定使用同一种快速递质。研究转向背侧海马 CA3 中的兴奋性 CCK 细胞,追问它们是否参与 CA3 到 CA1 的信息传递和可塑性。
报告小鼠的共标记显示,CA3包含与兴奋性标记相关的CCK阳性细胞,从CA1逆行追踪也能找到相应CA3细胞。一个常与抑制性中间神经元相联系的肽标签,由此引出了兴奋性输出。研究的问题进一步收束:这群细胞怎样把信号送到CA1,又怎样参与空间学习?
一条连接,同时传递兴奋与肽信号
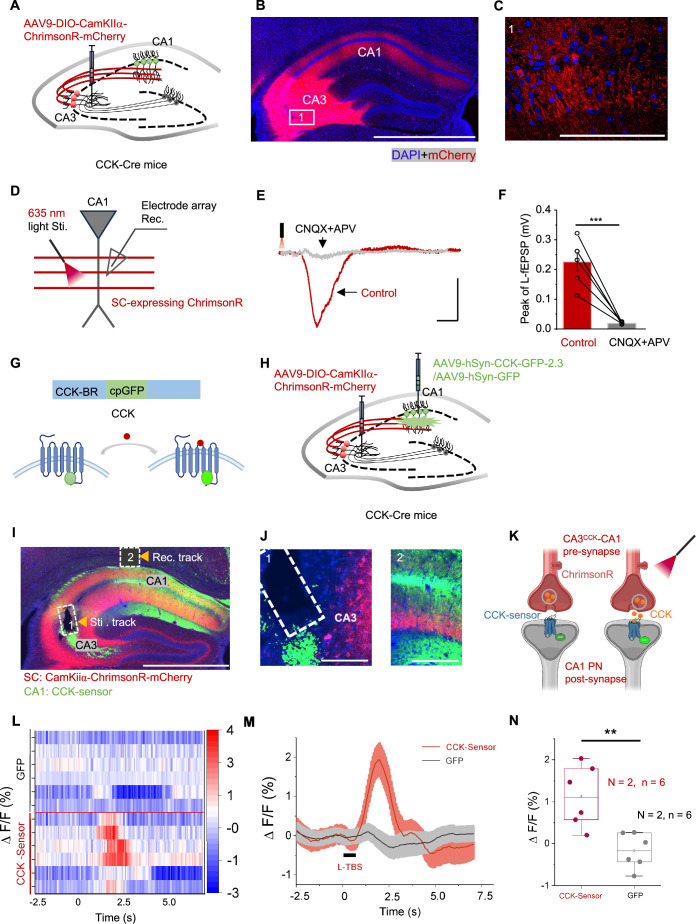
刺激标记的 CA3 CCK 投射,在 CA1 可记录到场兴奋性突触电位;谷氨酸受体拮抗剂几乎阻断这一响应,支持该连接的兴奋性性质。与此同时,团队把 CCK 传感器放在 CA1,在 CA3 施加高频 theta 爆发式光刺激,观察到短暂的传感信号升高,而 GFP 对照没有同样增加。连接不仅能传递快速兴奋信号,也可伴随肽信号释放。
短暂的肽传感信号为这条连接增加了一个慢速调节维度:CA3细胞除了提供谷氨酸能输出,还能把CCK送到CA1。海马同时接收多个CCK来源,接下来要理解自然学习中的肽作用,就需要把这个具体来源放回行为情境中继续追踪。
来源:Huang F et al. · eLife · CC BY
查看原图与英文图注 ↗
初次学习与熟练导航,活动节奏改变
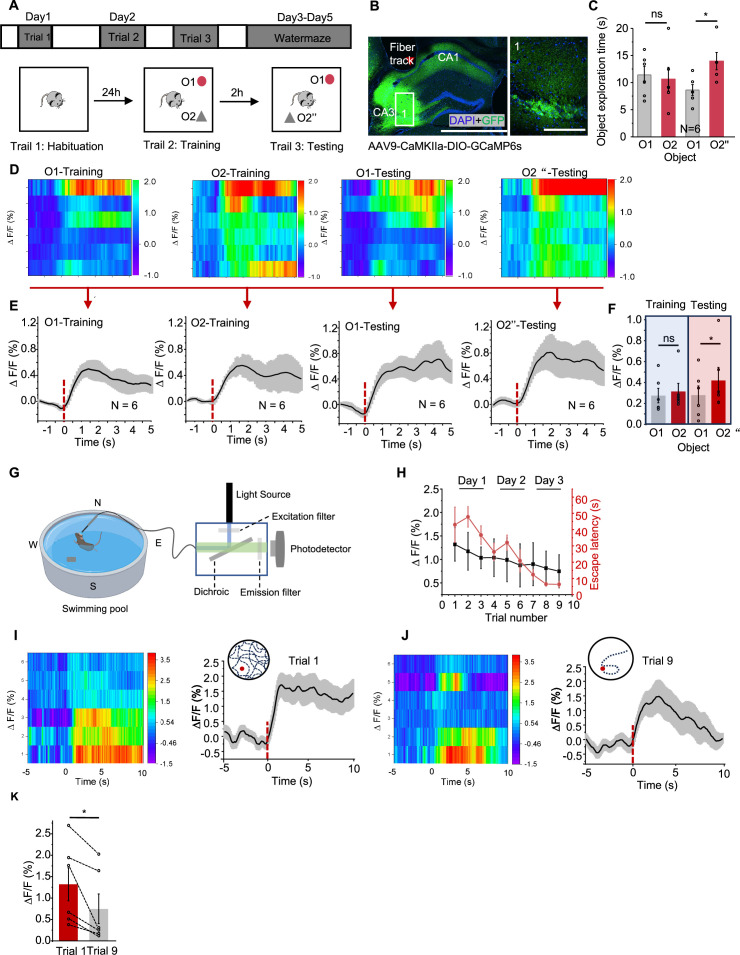
新物体位置任务让小鼠识别一个物体是否换了位置。探索物体时,CA3 兴奋性 CCK 群体的钙信号升高;测试阶段,对新位置的响应大于熟悉位置。在水迷宫中,初次寻找隐藏平台伴随较强、较持续的活动,经过训练、寻找平台更快后,平均钙响应降低。活动与学习阶段和空间探索情境相联系。
初次探索和熟练寻找平台,对动物提出不同要求,也伴随不同的新奇性与运动路线。这些群体记录展示了CA3 CCK细胞与学习情境的联系。研究者由此转向功能检验:当这条输出减弱,小鼠是否还能像以前一样辨别位置、学会平台所在?
来源:Huang F et al. · eLife · CC BY
查看原图与英文图注 ↗
输出减弱后,两种空间任务出现相似变化
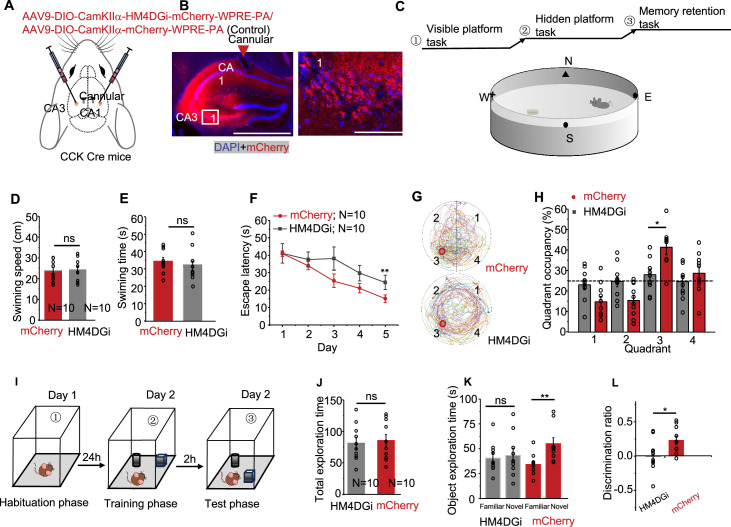
研究者在 CA3 的相应细胞中表达抑制性工具,再向 CA1 局部给药以干预投射末梢。小鼠寻找隐藏平台的表现变差,探测试验中的目标象限偏好降低;在新物体位置任务中,也不再像对照那样偏好移动后的物体。两种空间任务给出了方向一致的变化,支持这条输出对正常任务表现的贡献。
泳速、可见平台寻找和总物体探索时间仍与对照相近,空间表现的变化因此没有伴随这些基本行为的下降。脑片中抑制同一群体也降低基础场电位,让theta爆发刺激引起的长时程增强幅度变小。增强仍可出现,但较弱的幅度提示这条输出帮助连接获得充分的可塑性。
来源:Huang F et al. · eLife · CC BY
查看原图与英文图注 ↗
再追问一步:变化是否与CCK本身有关?
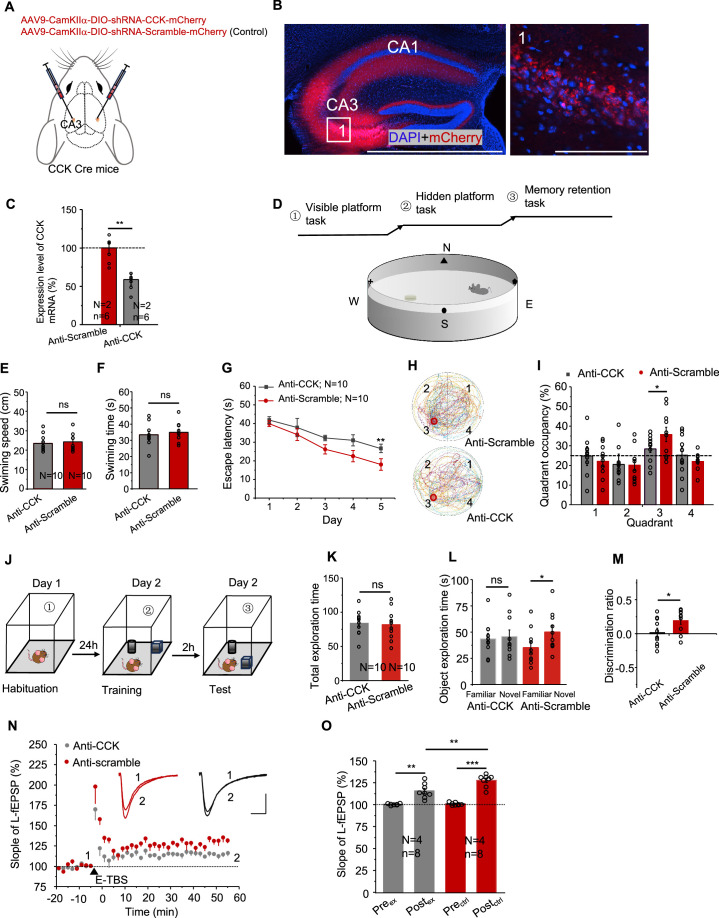
抑制神经元输出会同时改变多种信号,因此团队进一步降低这群 CA3 细胞中的 Cck 表达。验证显示 mRNA 减少,随后小鼠在隐藏平台学习和位置辨别上受损;泳速、可见平台和总探索时间仍无显著变化。与整体输出抑制相似的行为方向,将功能解释进一步指向肽本身,而不只是这些细胞的快速突触传递。
降低Cck后,普通电刺激引起的场电位幅度仍相近,长时程增强却变小。基本传递与充分增强之间出现的分离,使CCK的调节作用更清晰:它参与连接随活动而增强的过程。空间任务与突触记录的相似方向,也让这群细胞中的肽信号成为理解学习机制的具体入口。
来源:Huang F et al. · eLife · CC BY
查看原图与英文图注 ↗
空间学习中,快速传递还有肽信号相伴
从CA3细胞到CA1连接,从诱发CCK释放到空间探索与长时程增强,研究将几个尺度串成了一条线。它扩展了海马CCK的细胞图景:同一种肽既存在于抑制性细胞,也能伴随兴奋性输出,为信息处理增加调节层次。正常空间表现和充分突触增强,都与这一群体及其CCK贡献相联系。
行为证据来自雄性小鼠。自然任务中CA1肽信号的来源、受体作用和更精细的细胞特异性仍有待展开;全细胞记录和遗传交叉策略将帮助回答这些问题。下一步,也值得检验这层肽调节如何与快速传递配合,在不同学习阶段改变突触和行为。